RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
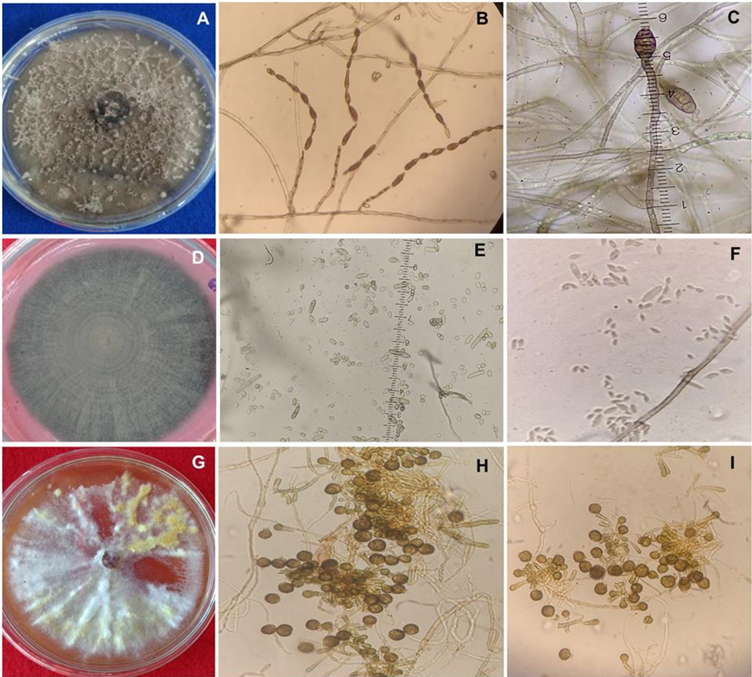
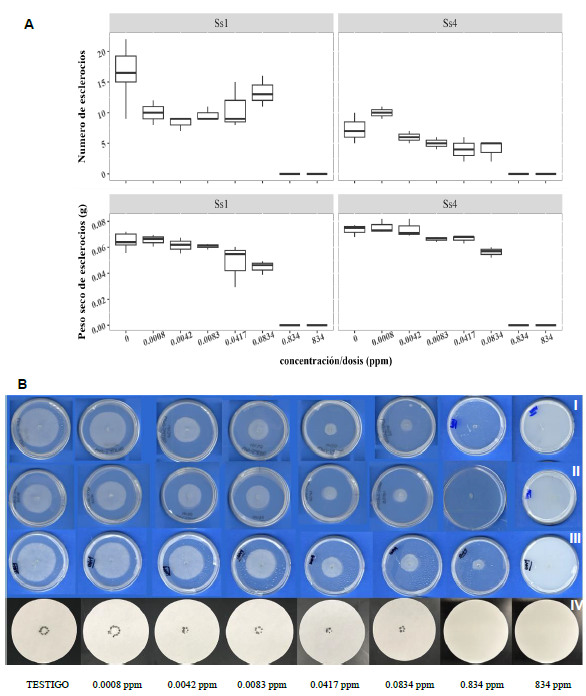
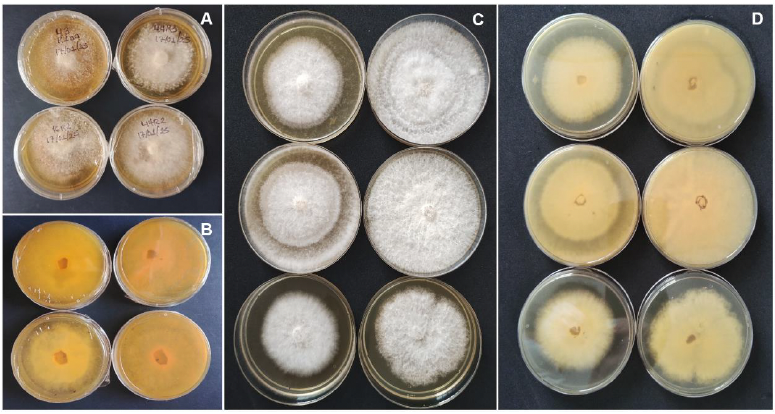
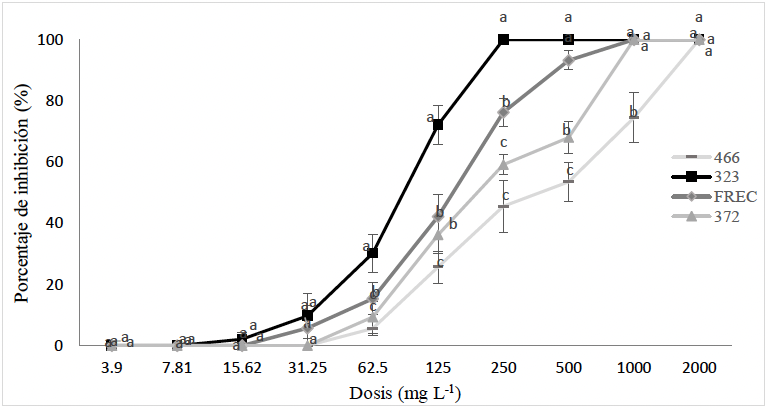
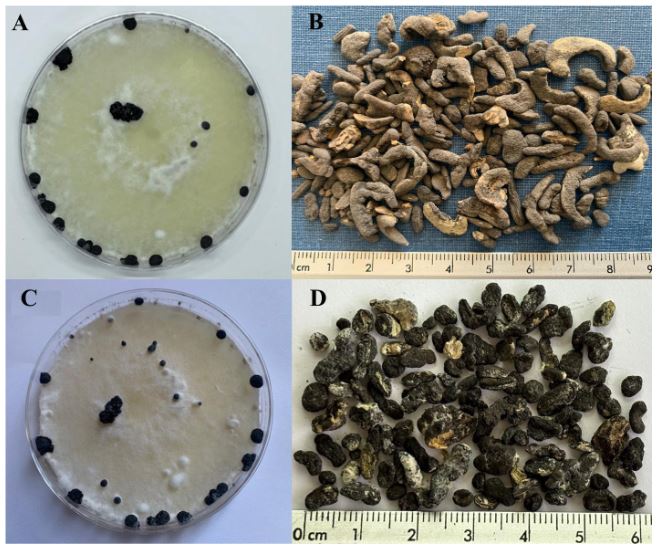
Efecto del fungicida pidiflumetofeno <em>in vitro</em> contra aislados de <em>Fusarium virguliforme</em> y <em>Sclerotinia sclerotiorum</em> de Iowa, USA. Figura 2 - Crecimiento micelial y producción de esclerocios en placas Petri de <em>Sclerotinia sclerotiorum</em> incubados en oscuridad a 25 °C. Placas Petri suplementadas con el fungicida pidiflumetofeno en dilución seriada. A) Diagrama de caja. B) Imagen en la cual un mismo aislado se encuentra en la misma fila con diferentes concentraciones que se incrementan de izquierda a derecha. Paneles B-I to B-III: Crecimiento micelial a las 48 horas después de la inoculación (HDI); B-I) Aislado <em>Sclerotinia sclerotiorum</em> Ss1 – etiquetado WM1 (WM-2024); Aislado <em>Sclerotinia sclerotiorum</em> Ss2 – etiquetado WM2 (#630); B-III) Aislado <em>Sclerotinia sclerotiorum</em> Ss4 – etiquetado WM4 (WM-CO-0024); Panel B-IV: Producción de esclerocios a los 21 días de incubación (DDI); B-IV) Aislado <em>Sclerotinia sclerotiorum</em> Ss4 (WM-CO-0024).

Últimas Contribuciones

  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Evaluación de genotipos de quinua (Chenopodium quinoa) en respuesta a mildiú (Peronospora variabilis) en los valles altos del centro de México

PorPatricia Rivas Valencia, Eduardo Espitia Rangel, Adriana Zamudio Colunga*, Mariana N Chavarria Galicia, Elisa Gómez Gracida, Miriam G Valverde Ramos, Erandi Vargas Ortiz, Eliel Martínez Cruz

Recibido: 03/agosto/2026 – Publicado: 12/noviembre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-13

Resumen Antecedentes/Objetivo. La quinua (Chenopodium quinoa) destaca por su excepcional valor nutricional y su tolerancia a condiciones adversas como sequía, salinidad y bajas temperaturas. Frente a su reciente introducción en México, se requiere generar conocimiento técnico que garantice un cultivo rentable y sustentable. Dado que el mildiú (Peronospora variabilis) constituye una de sus principales limitantes fitosanitarias, el objetivo de este estudio fue evaluar la respuesta de seis genotipos de quinua a la infección natural de esta enfermedad, con y sin aplicación de fungicida, en tres localidades de los valles altos del centro de México, para identificar posibles fuentes de resistencia al patógeno.

Materiales y Métodos. Se evaluaron seis genotipos de quinua (Suyana, Tarpuna, Choclo, Roja ku, Maranganí y Pata de venado) en tres localidades de los valles altos del centro de México, bajo un diseño experimental de bloques completos al azar con cuatro repeticiones. Se registró la severidad de mildiú, rendimiento, días transcurridos a partir de la siembra hasta la emergencia de panoja y floración, altura de la planta, longitud de panoja, diámetro de tallo, rendimiento de grano, peso de 1 000 semillas y peso hectolítrico. Los datos se analizaron mediante el procedimiento GLM del SAS y las medias se compararon mediante la prueba de t (p ≤ 0.05) y de Tukey (p ≤ 0.05). Los genotipos se clasificaron en grupos de resistentes y susceptibles. El análisis de correlación simple entre variables se efectuó mediante el procedimiento CORR de SAS.

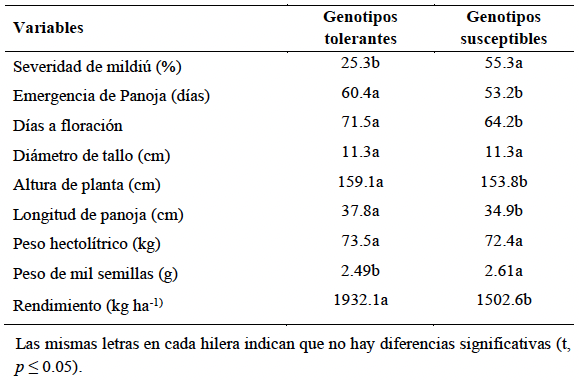
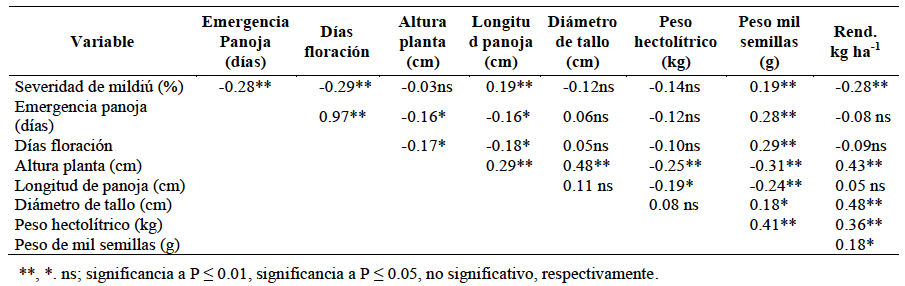
Resultados. En Cuapiaxtla, Tlaxcala, se presentó una mayor severidad de mildiú (44.21 %) y el menor fue para Santa Lucía de Prías (37.08 %). La severidad de mildiú con el uso de fungicidas fue de 33.38 % y sin aplicación de 47.25 %, por genotipos: Pata de venado 23.8 %, Tarpuna 25.3 %, Suyana 26.7 %; los cuales se consideraron genotipos resistentes. En la comparación de genotipos, los resistentes presentaron una severidad 25.3 %, con un rendimiento de 1 932.1 kg ha-1; mientras que los susceptibles presentaron una severidad de 55.3 % con un rendimiento 1 502.6 kg ha-1. La severidad de mildiú resultó asociada significativamente de manera negativa con el rendimiento, emergencia de panoja y días a floración.

Conclusión. Los genotipos de quinua Pata de venado, Tarpuna y Suyana presentaron mayor resistencia, presentando una severidad de mildiu promedio de 25.2 % que se reflejó en un mayor rendimiento (1 932.1 kg ha-1). Este estudio ofrece los primeros datos en el recién introducido cultivo de quinua a México, bases que pueden apoyar para la generación de un programa de mejoramiento genético para el país.

Mostrar Figuras y/o Cuadros
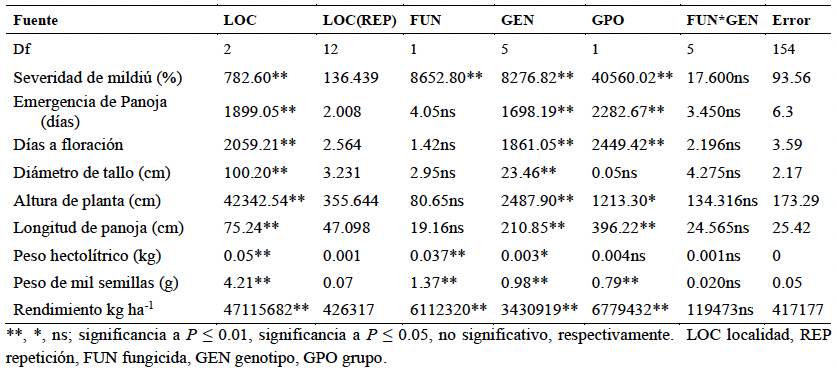
Cuadro 1. Cuadrados medios y nivel de significancia de las variables evaluadas en seis variedades de quinua en tres localidades de los valles altos del centro de México.
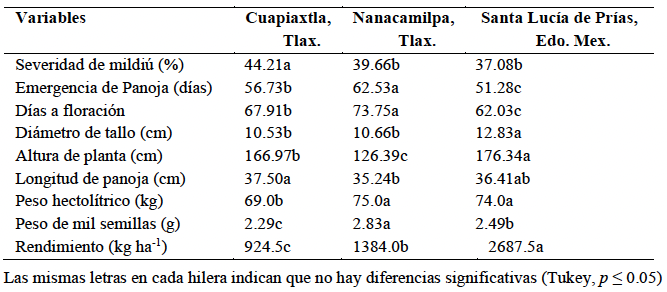
Cuadro 2. Comparación de medias por localidad evaluadas para seis variedades de quinua.
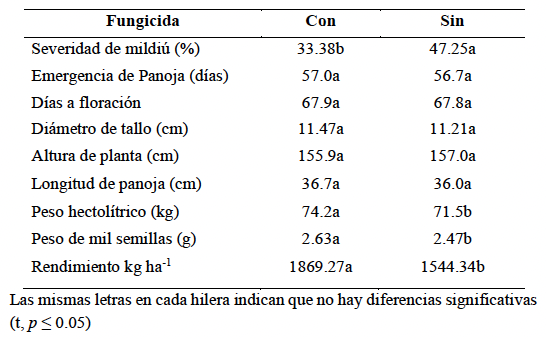
Cuadro 3. Comparación de medias por control (con y sin fungicida) para seis variedades genotipos de quinua evaluados en tres localidades de los valles altos del centro de México.
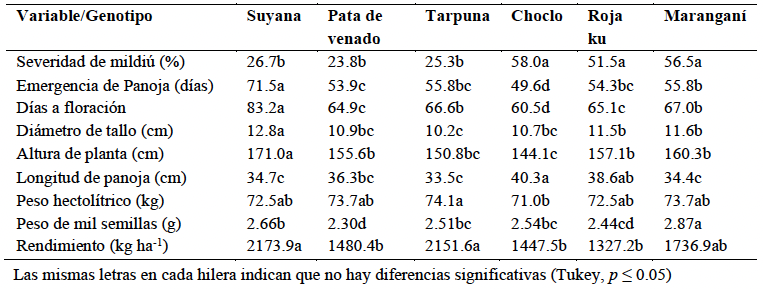
Cuadro 4. Comparación de medias por genotipo, evaluadas en seis genotipos en tres localidades de los valles altos del centro de México.
Cuadro 5. Comparación de medias por genotipos tolerantes y susceptibles, evaluadas en tres localidades de los valles altos del centro de México.
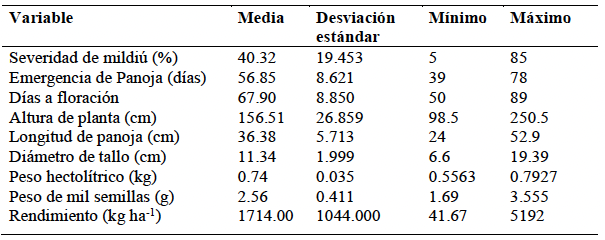
Cuadro 6. Estadísticos básicos de las variables estudiadas para seis genotipos de quinua evaluados en tres localidades de valles altos del centro de México.
Cuadro 7. Correlaciones de Pearson entre variedades de seis genotipos de quinua evaluadas en tres localidades de los valles altos del centro de México.
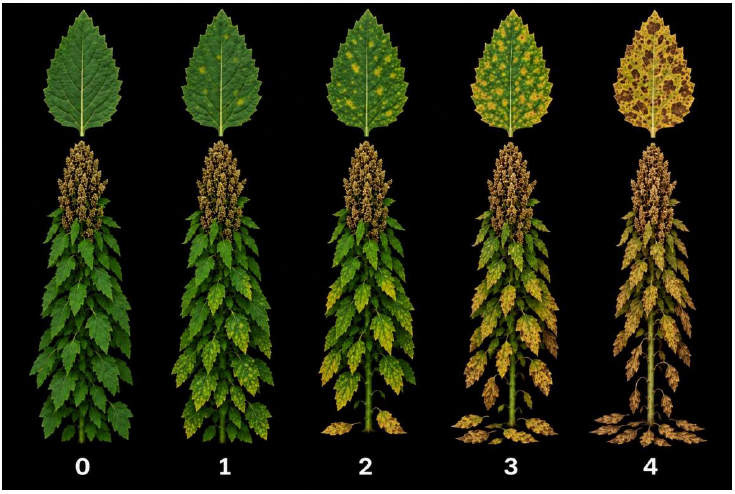
Figura 1. Escala visual de severidad del daño de mildiú en quinua (<em>P. variabilis</em>). 0= sano, 1= 1-25 %, 2= 26-50 %, 3=51-75 %, 4=76-100 %
Figura 1. Escala visual de severidad del daño de mildiú en quinua (P. variabilis). 0= sano, 1= 1-25 %, 2= 26-50 %, 3=51-75 %, 4=76-100 %
  • Vol. 2026, 44(4)
  • Nota Fitopatológica
  • Número Especial

Evaluación in vitro de productos orgánicos y biológicos para el control de patógenos foliares asociados a cebada (Hordeum vulgare)

PorMaría Florencia Rodríguez García*, Miguel González González, Patricia Rivas Valencia

Recibido: 02/julio/2026 – Publicado: 09/noviembre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-8

Resumen Antecedentes/Objetivo. La mancha marrón, mancha en red y la fusariosis de la espiga son enfermedades emergentes importantes en cebada (Hordeum vulgare), y los extractos derivados de plantas y organismos biológicos, ofrecen alternativas para su control. El objetivo de este estudio fue evaluar in vitro la efectividad de productos comerciales orgánicos y biológicos para el control de tres hongos asociados con enfermedades en cebada.

Desarrollo experimental. El experimento se estableció en 2023 en el laboratorio de fitopatología de INIFAP-CEVAMEX, bajo un diseño experimental completamente al azar con cuatro repeticiones; la unidad experimental fue una caja de Petri conteniendo medio PDA + producto a evaluar y testigo de cada hongo. Se utilizaron los aislamientos de Bipolaris sorokiniana, Drechslera teres y Fusarium graminearum para evaluar mediante la técnica de medio de cultivo envenenado, ocho productos comerciales orgánicos y tres biológicos. Se midió diámetro (mm) del Crecimiento Micelial (CM) y se calculó Porcentaje de Inhibición del Crecimiento Micelial (PICM). Se realizó análisis de varianza y comparaciones de medias (Tukey p≤0.05).

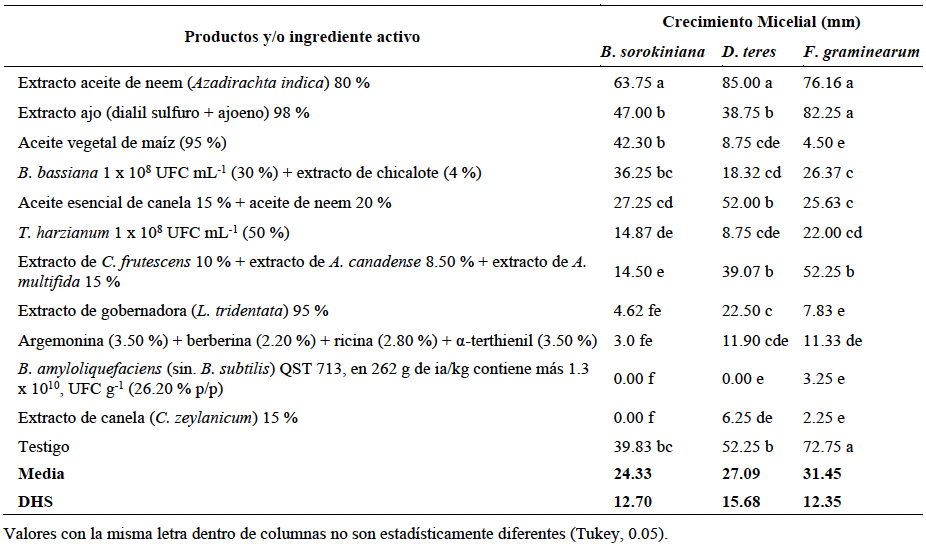
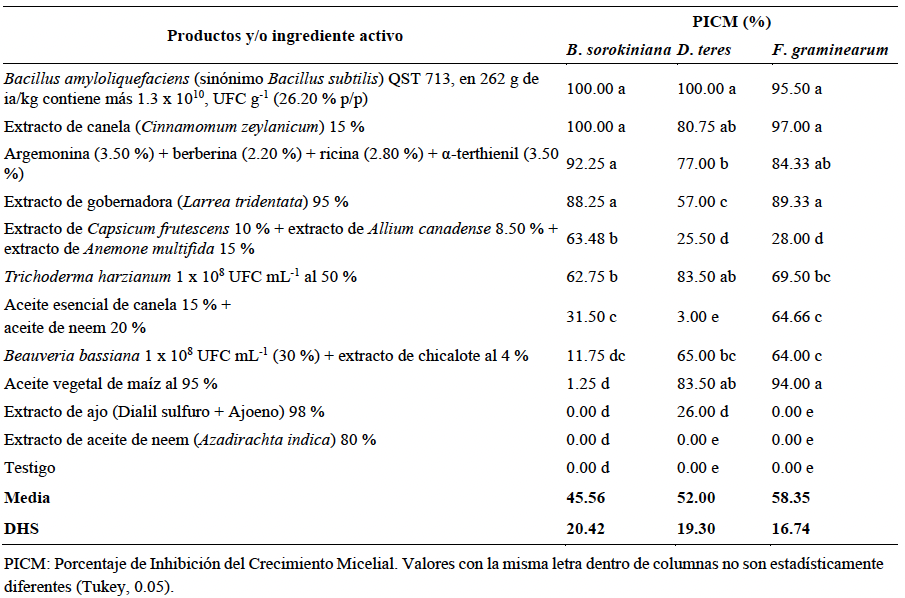
Resultados. Los productos (ia) con CM menor a 5 mm fueron en B. sorokiniana: Bacillus amyloliquefaciens, extracto de canela, argemonia + berberina + ricina + α-terthienil y extracto de gobernadora; para D. teres: B. amyloliquefaciens; en F. graminearum: extracto de canela, B. amyloliquefaciens y aceite vegetal de maíz. El mayor CM para B. sorokiniana (63.75 mm) y D. teres (85 mm) se observaron en extracto de aceite de neem; en F. graminearum fue extracto de ajo (82.25 mm). En PICM los productos orgánicos obtuvieron porcentajes sobresalientes: B. amyloliquefaciens (100, 100, 95.5 %), extracto de canela (100, 80.75, 97 %) para B. sorokiniana, D. teres y F. graminearum, respectivamente.

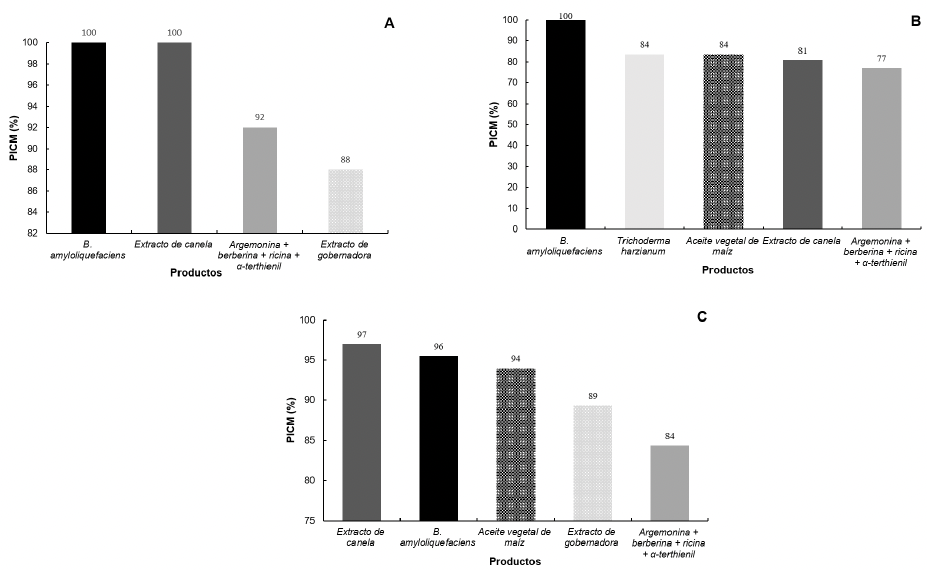
Conclusión. Los productos con eficacia sobresaliente con base en PICM fueron B. amyloliquefaciens (100 %), extracto de canela (100 %) para B. sorokiniana; B. amyloliquefaciens (100 %) y Trichoderma Sub (83.50 %) en D. teres; y para F. graminearum: extracto de canela (97 %) y B. amyloliquefaciens (95.50 %). Es necesario realizar pruebas en campo para determinar la efectividad in vivo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Comparación de medias de productos orgánicos y biológicos para la variable Crecimiento Micelial (CM), para el control <em>in vitro</em> de tres hongos aislados de síntomas en cebada.
Cuadro 1. Comparación de medias de productos orgánicos y biológicos para la variable Crecimiento Micelial (CM), para el control in vitro de tres hongos aislados de síntomas en cebada.
Cuadro 2. Comparación de medias de productos orgánicos y biológicos para el Porcentaje de Inhibición del Crecimiento Micelial (PICM), en el control <em>in vitro</em> de tres hongos fitopatógenos de cebada.
Cuadro 2. Comparación de medias de productos orgánicos y biológicos para el Porcentaje de Inhibición del Crecimiento Micelial (PICM), en el control in vitro de tres hongos fitopatógenos de cebada.
Figura 1. Productos con efectividad mayor al 75 % en la Inhibición del Crecimiento Micelial (PICM) de tres hongos asociados a enfermedades emergentes en cebada. A) <em>B. sorokiniana</em>; B) <em>D. teres</em>; C) <em>F. graminearum</em>.
Figura 1. Productos con efectividad mayor al 75 % en la Inhibición del Crecimiento Micelial (PICM) de tres hongos asociados a enfermedades emergentes en cebada. A) B. sorokiniana; B) D. teres; C) F. graminearum.
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Respuesta de genotipos de garbanzo Desi y Kabuli a aislados de Ascochyta rabiei y su asociación con marcadores moleculares en Guanajuato, México

PorMario M González Chavira, Jorge A Acosta Gallego, Pedro F Ortega Murrieta, Isidoro Padilla Valenzuela, Milagros Ramírez Soto, Claudia M Melgoza Villagomez, Brenda Z Guerrero Aguilar*

Recibido: 03/agosto/2026 – Publicado: 09/noviembre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-12

Resumen Antecedentes/Objetivo. El tizón foliar del garbanzo (Cicer arietinum), causado por Ascochyta rabiei, puede provocar pérdidas de hasta un 100 % en condiciones ambientales favorables. En México, particularmente en Guanajuato, se han observado síntomas compatibles con esta enfermedad, sin embargo, existen pocos reportes científicos documentados sobre la presencia del patógeno y el nivel de resistencia en el germoplasma nacional. Considerando que la resistencia genética constituye una alternativa viable y económica para el control de la enfermedad, resulta relevante identificar germoplasma con respuesta favorable y evaluar herramientas que contribuyan a su selección. En este contexto, el objetivo del presente estudio fue determinar la respuesta de 68 genotipos de garbanzo tipo Desi y Kabuli a aislados de A. rabiei y evaluar su asociación con marcadores moleculares en Guanajuato, México

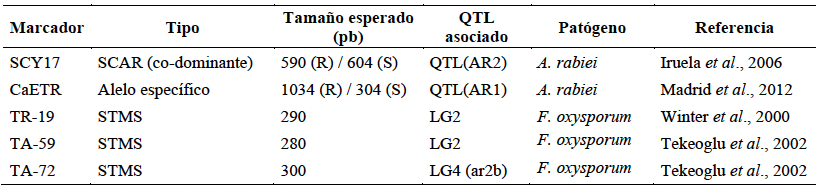
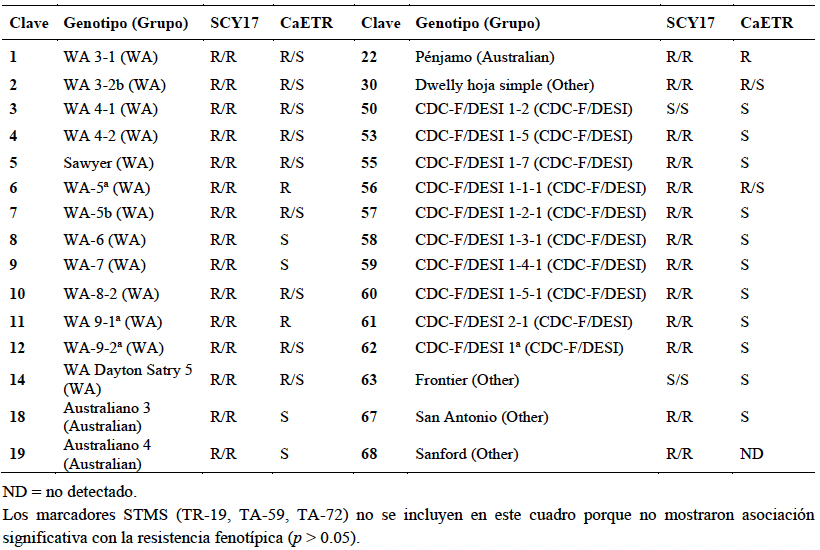
Materiales y Métodos. En 2015-2016, se colectaron plantas con síntomas típicos de tizón foliar, como lesiones necróticas con picnidios en cinco municipios de Guanajuato. Los aislados se purificaron por conidio único y con base en sus características culturales y morfológicas, se identificaron como A. rabiei. La virulencia se evaluó mediante la técnica de hoja desprendida y el aislado más virulento se utilizó para inocular los 68 genotipos en invernadero. El ADN se analizó con los marcadores SCY17, CaETR, TR-19, TA-59 y TA-72, y la asociación entre marcadores y resistencia fenotípica se evaluó mediante la prueba de chi-cuadrada, calculando además sensibilidad, especificidad, valor predictivo positivo y coeficiente de correlación de Matthews.

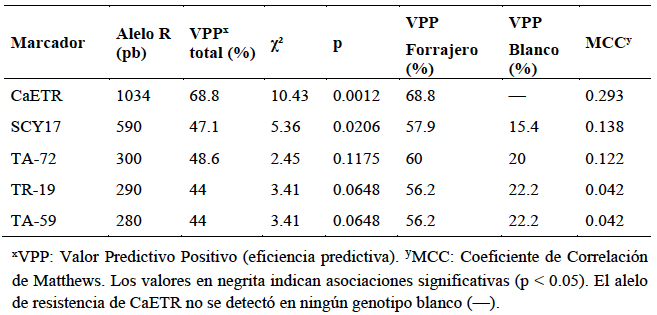
Resultados. Se obtuvieron cinco aislados de A. rabiei. Los aislados de Celaya y Salvatierra presentaron mayor virulencia. De 68 genotipos evaluados, 29 fueron resistentes, todos del tipo forrajero (Desi); ningún genotipo blanco (Kabuli) presentó resistencia. El marcador CaETR presentó el mayor valor predictivo positivo (VPP = 68.8 %) y una asociación significativa con la resistencia (p = 0.0012), mientras que SCY17 mostró un menor VPP (47.1 %), aunque también presentó una asociación significativa (p = 0.0206). Los marcadores STMS (TR-19, TA-59, TA-72) no mostraron asociación significativa (p > 0.05).

Conclusión. Este estudio aporta evidencia fitopatológica de la presencia de al menos cinco aislados de A. rabiei en Guanajuato, México. De los 68 genotipos evaluados, 29 fueron resistentes al tipo forrajero (grano café) (severidad ≤3), 5 intermedios (severidad 4-6) y 34 susceptibles (severidad ≥7). El marcador CaETR (alelo de 1034 pb) mostró el mejor desempeño relativo entre los marcadores evaluados, por lo que representa un candidato para su validación posterior y posible aplicación en selección asistida en germoplasma forrajero (Desi).

Mostrar Figuras y/o Cuadros
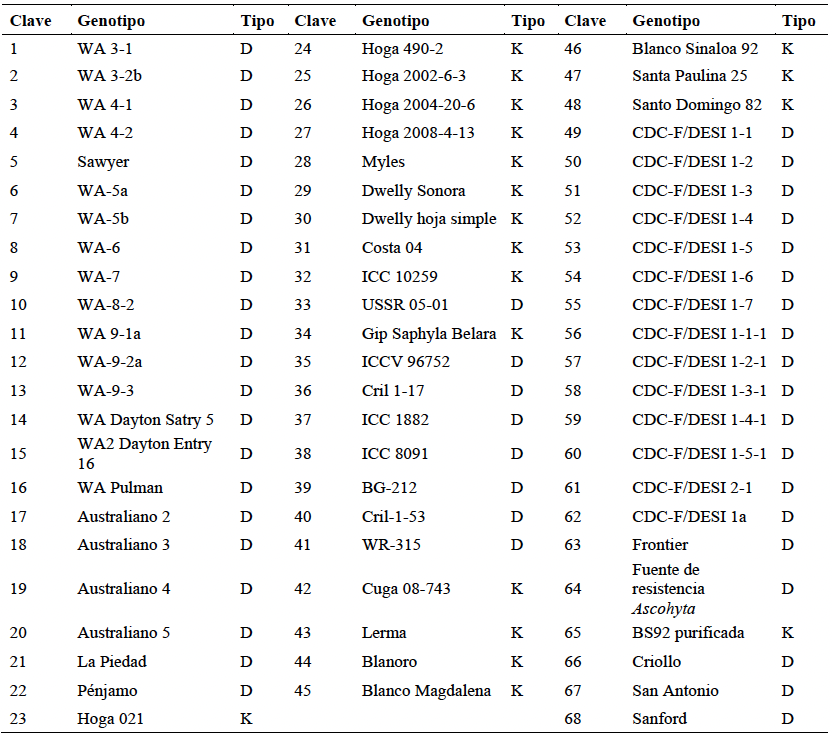
Cuadro 1. Genotipos de garbanzo tipo Kabuli (K) y Desi (D) empleados en este estudio.
Cuadro 2. Iniciadores seleccionados para la identificación de QTLs (múltiples loci de caracteres cuantitativos) de resistencia en <em>C. arietinum</em>.
Cuadro 2. Iniciadores seleccionados para la identificación de QTLs (múltiples loci de caracteres cuantitativos) de resistencia en C. arietinum.
Cuadro 3. Genotipos de garbanzo con resistencia a <em>A. rabiei</em> en pruebas de patogenicidad y marcadores moleculares.
Cuadro 3. Genotipos de garbanzo con resistencia a A. rabiei en pruebas de patogenicidad y marcadores moleculares.
Cuadro 4. Eficiencia predictiva de los marcadores moleculares en la población y por el tipo de germoplasma forrajero (Desi) y blancos (Kabuli).
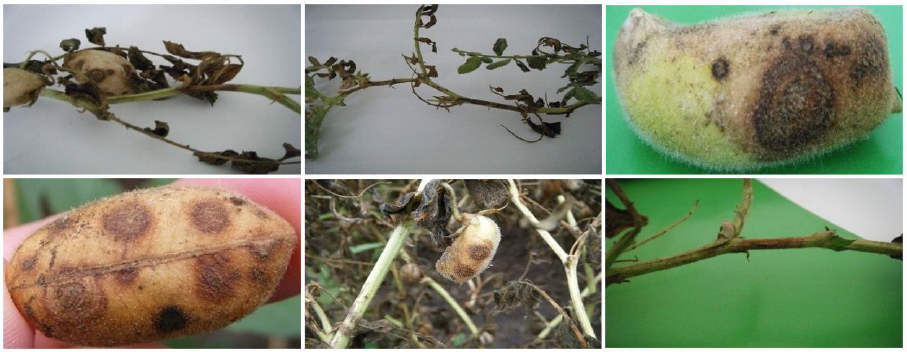
Figura 1. Síntomas de tizón foliar en planta de garbanzo (<em>C. arietinum</em>). Se observan lesiones necróticas circulares con anillos concéntricos y picnidios presentes en hojas y tallos.
Figura 1. Síntomas de tizón foliar en planta de garbanzo (C. arietinum). Se observan lesiones necróticas circulares con anillos concéntricos y picnidios presentes en hojas y tallos.
Figura 2. Ubicación de los sitios de colecta en las zonas productoras de Guanajuato (2015-2016).
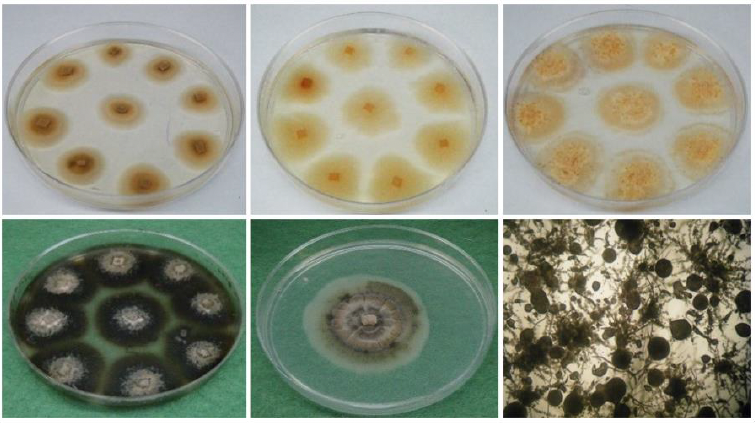
Figura 3. Crecimiento de los aislados de <em>A. rabiei </em>en medio papa dextrosa agar (PDA) después de 10 días de incubación a 25 °C. Se observa variación en la coloración de las colonias, desde tonos color salmón hasta grisáceos y gris oscuro, y formación de picnidios.
Figura 3. Crecimiento de los aislados de A. rabiei en medio papa dextrosa agar (PDA) después de 10 días de incubación a 25 °C. Se observa variación en la coloración de las colonias, desde tonos color salmón hasta grisáceos y gris oscuro, y formación de picnidios.
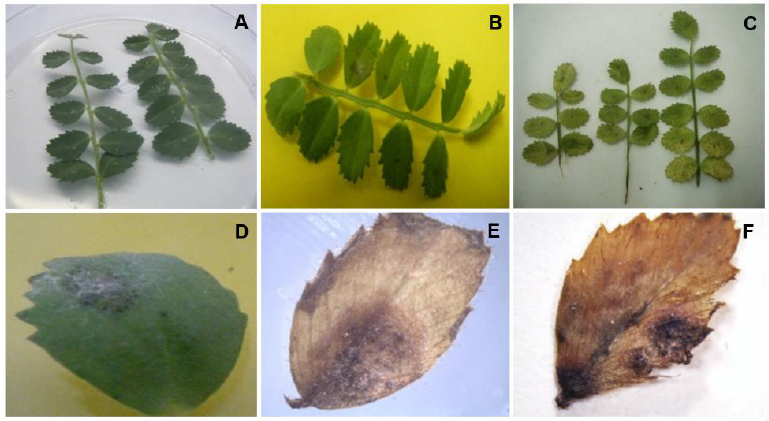
Figura 4. Pruebas de patogenicidad de aislados de <em>A. rabiei</em> sobre hojas desprendidas de garbanzo (<em>C. arietinum</em>) variedad susceptible Blanco Sinaloa 92. A) Hoja sin síntomas (control negativo); B) Inicio de síntomas; C) Desarrollo de lesiones típicas de tizón foliar; D y E) Lesiones avanzadas con presencia de picnidios; F) Hoja completamente necrosada.
Figura 4. Pruebas de patogenicidad de aislados de A. rabiei sobre hojas desprendidas de garbanzo (C. arietinum) variedad susceptible Blanco Sinaloa 92. A) Hoja sin síntomas (control negativo); B) Inicio de síntomas; C) Desarrollo de lesiones típicas de tizón foliar; D y E) Lesiones avanzadas con presencia de picnidios; F) Hoja completamente necrosada.
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Diversidad, identificación filogenética y patogenicidad de especies de Lasiodiplodia asociadas con la muerte descendente de naranja dulce (Citrus sinensis) en Veracruz, México

PorFelipe R Flores de la Rosa, Ernesto Rodríguez Andrade, Humberto J Estrella Maldonado, Gerardo Rodríguez Alvarado, Sylvia P Fernández Pavía, Ricardo Santillán Mendoza*

Recibido: 30/junio/2026 – Publicado: 30/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-6

Resumen Antecedentes/Objetivo. La muerte descendente en cítricos causada por especies del género Lasiodiplodia constituye una enfermedad emergente que limita la productividad y longevidad de los huertos de naranja dulce (Citrus sinensis), debido a que ocasiona gomosis, cancros, necrosis de corteza y madera, y muerte regresiva de ramas. Veracruz concentra más de la mitad de la producción nacional de naranja, sin embargo, la información sobre los agentes etiológicos asociados con esta enfermedad es limitada. Por lo cual, el objetivo de este estudio fue determinar las especies de Lasiodiplodia asociadas con la muerte descendente de naranja dulce en seis municipios de la región centro-norte de Veracruz mediante filogenia multilocus, confirmar su patogenicidad y comparar su virulencia.

Materiales y Métodos. En el periodo mayo - agosto de 2023, se colectaron 18 ramas con síntomas de muerte descendente en nueve huertos comerciales de naranja dulce distribuidos en seis municipios del centro-norte de Veracruz, de las cuales se obtuvieron 36 aislados fúngicos. Todos fueron identificados preliminarmente mediante la secuenciación de la región ITS y, de los 30 aislados asignados al género Lasiodiplodia, se seleccionaron 12 aislados representativos considerando los agrupamientos obtenidos mediante ITS, la variabilidad cultural y morfológica, así como su procedencia geográfica para la caracterización filogenética multilocus. La identificación se realizó mediante análisis filogenéticos de cuatro loci (ITS, tef1-α, tub2 y rpb2) utilizando inferencia bayesiana y máxima verosimilitud. La distribución geográfica de las especies se documentó y la patogenicidad se comprobó en ramas desprendidas de naranja dulce mediante la inoculación de los 12 aislados, confirmándose la patogenicidad de las especies evaluadas.

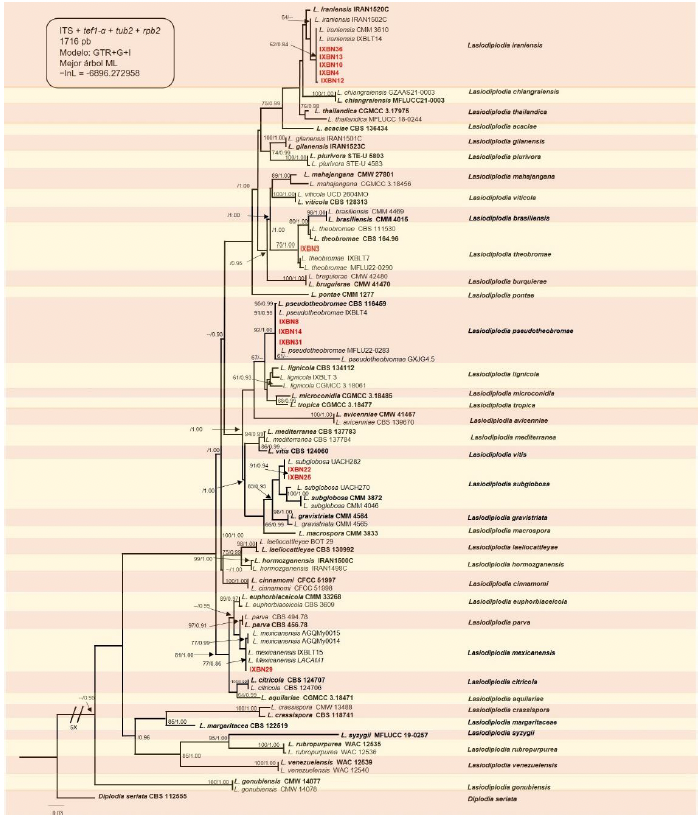
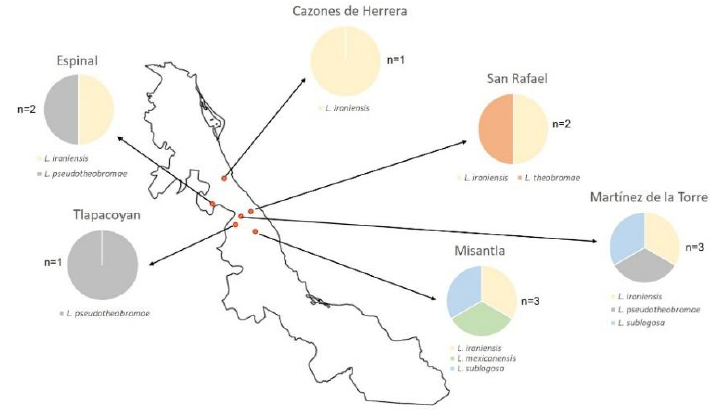
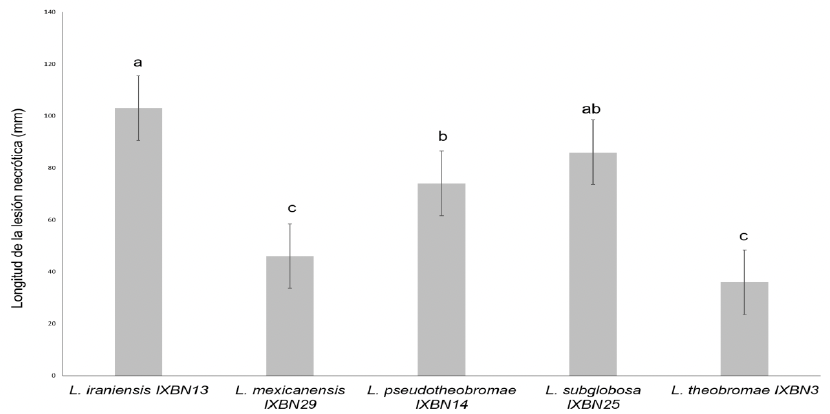
Resultados. Los análisis filogenéticos permitieron identificar cinco especies de Lasiodiplodia: L. iraniensis (41.7 %), L. pseudotheobromae (25 %), L. subglobosa (16.7 %), L. theobromae (8.3 %) y L. mexicanensis (8.3 %). L. iraniensis presentó la distribución geográfica más amplia, al detectarse en cinco de los seis municipios evaluados. Todos los aislados fueron patogénicos e indujeron síntomas característicos de la enfermedad en ramas desprendidas, confirmándose la patogenicidad de las especies evaluadas. La comparación de la virulencia mostró diferencias significativas entre especies (p ≤ 0.05), siendo L. iraniensis la que indujo las lesiones necróticas de mayor longitud, y L. mexicanensis y L. theobromae causaron las de menor longitud.

Conclusión. La muerte descendente de naranja dulce en la región centro-norte de Veracruz está asociada con un complejo de especies de Lasiodiplodia con diferente distribución geográfica y virulencia. Se identificaron cinco especies Lasiodiplodia con predominancia geográfica de L. iraniensis (42 %) y con mayores lesiones necróticas (>100 mm). La utilización de un enfoque filogenético multilocus permitió una delimitación taxonómica robusta de las especies presentes y constituye una base para la vigilancia fitosanitaria, el desarrollo de estrategias de manejo integrado y futuras investigaciones sobre la epidemiología y diversidad de Lasiodiplodia en cítricos de México.

Mostrar Figuras y/o Cuadros
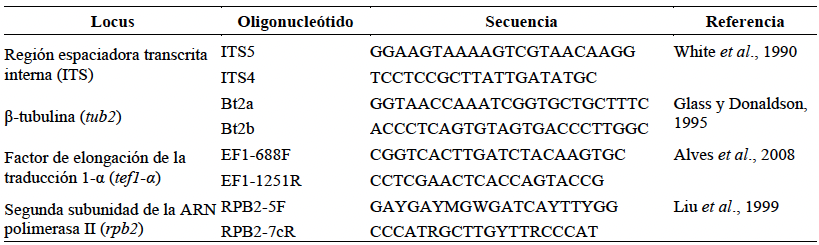
Cuadro 1. Secuencias de oligonucleótidos utilizados en los análisis multilocus en cepas de <em>Lasiodiplodia</em> aisladas de árboles de cítricos.
Cuadro 1. Secuencias de oligonucleótidos utilizados en los análisis multilocus en cepas de Lasiodiplodia aisladas de árboles de cítricos.
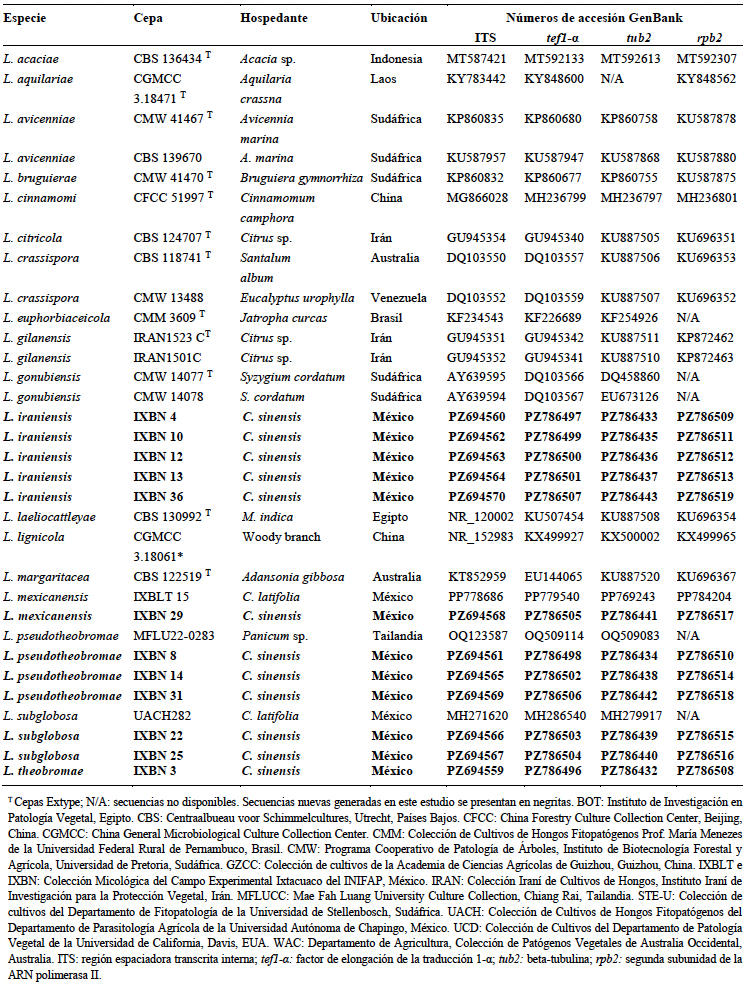
Cuadro 2. Códigos de accesión de las cepas, hospedante, ubicación y números de accesión de GenBank de los aislados de <em>Lasiodiplodia</em> utilizados en el análisis filogenético (Cuadro completo en Material suplementario).
Cuadro 2. Códigos de accesión de las cepas, hospedante, ubicación y números de accesión de GenBank de los aislados de Lasiodiplodia utilizados en el análisis filogenético (Cuadro completo en Material suplementario).
Figura 1. Aislados de <em>Lasiodiplodia</em> obtenidos de ramas de naranja dulce de seis municipios de la región centro-norte de Veracruz. Crecimientos de <em>Lasiodiplodia</em> en medio PDA a 25 °C por 7 días. IXBN más el número indica el código de almacenamiento de los aislados en la colección micológica del CEIXTA-INIFAP.
Figura 1. Aislados de Lasiodiplodia obtenidos de ramas de naranja dulce de seis municipios de la región centro-norte de Veracruz. Crecimientos de Lasiodiplodia en medio PDA a 25 °C por 7 días. IXBN más el número indica el código de almacenamiento de los aislados en la colección micológica del CEIXTA-INIFAP.
Figura 2. Árbol filogenético obtenido mediante Máxima Verosimilitud (ML) a partir del análisis concatenado de ITS, <em>tef1-α</em>, <em>tub2</em> y <em>rpb2</em> de 12 aislados de <em>Lasiodiplodia</em> obtenidos de ramas de naranja dulce con síntomas de muerte descendente en la región centro-norte del estado de Veracruz, México. El análisis incluyó 73 secuencias representativas correspondientes a 35 especies aceptadas de <em>Lasiodiplodia</em>, incluyendo cepas ex-type recuperadas de GenBank, y a <em>Diplodia seriata</em> CBS 112 555 como grupo externo. El árbol mostrado corresponde al de mayor verosimilitud (−lnL = 6896.272958), inferido bajo el modelo de sustitución GTR+G+I. Los valores de soporte de ML (bootstrap ≥ 60 %) y las probabilidades posteriores de BI (PP ≥ 0.90) se indican sobre las ramas. Los aislados de <em>C. sinensis</em> obtenidos en el presente estudio se muestran en color rojo y las cepas ex-type en negritas.
Figura 2. Árbol filogenético obtenido mediante Máxima Verosimilitud (ML) a partir del análisis concatenado de ITS, tef1-α, tub2 y rpb2 de 12 aislados de Lasiodiplodia obtenidos de ramas de naranja dulce con síntomas de muerte descendente en la región centro-norte del estado de Veracruz, México. El análisis incluyó 73 secuencias representativas correspondientes a 35 especies aceptadas de Lasiodiplodia, incluyendo cepas ex-type recuperadas de GenBank, y a Diplodia seriata CBS 112 555 como grupo externo. El árbol mostrado corresponde al de mayor verosimilitud (−lnL = 6896.272958), inferido bajo el modelo de sustitución GTR+G+I. Los valores de soporte de ML (bootstrap ≥ 60 %) y las probabilidades posteriores de BI (PP ≥ 0.90) se indican sobre las ramas. Los aislados de C. sinensis obtenidos en el presente estudio se muestran en color rojo y las cepas ex-type en negritas.
Figura 3. Distribución geográfica de las especies de <em>Lasiodiplodia</em> aisladas de ramas de naranja dulce con síntomas de muerte descendente en seis municipios de la región centro-norte de Veracruz, México. Los gráficos circulares representan la proporción de aislados pertenecientes a cada especie recuperados en cada municipio. n = número de aislados caracterizados mediante análisis filogenético multilocus.
Figura 3. Distribución geográfica de las especies de Lasiodiplodia aisladas de ramas de naranja dulce con síntomas de muerte descendente en seis municipios de la región centro-norte de Veracruz, México. Los gráficos circulares representan la proporción de aislados pertenecientes a cada especie recuperados en cada municipio. n = número de aislados caracterizados mediante análisis filogenético multilocus.
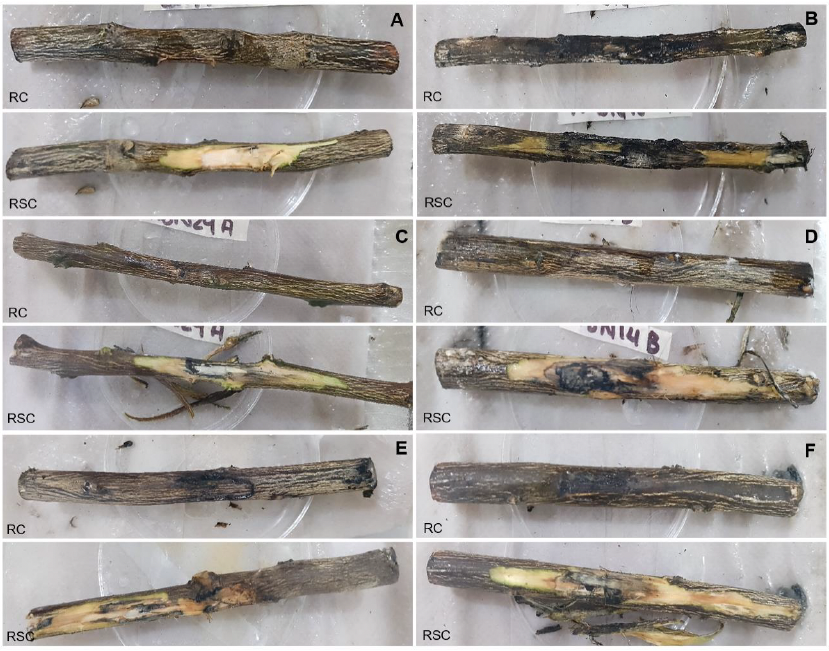
Figura 4. Pruebas de patogenicidad en ramas desprendidas de naranja dulce (<em>C. sinensis</em>), mostrando los síntomas inducidos por aislados representativos de cinco especies de <em>Lasiodiplodia</em> 15 días después de la inoculación. A) control inoculado con discos estériles de PDA; B) <em>L. iraniensis</em> IXBN13; C) <em>L. mexicanensis</em> IXBN29; D) <em>L. pseudotheobromae</em> IXBN14; E) <em>L. subglobosa</em> IXBN25; F) <em>L. theobromae</em> IXBN3. RC: rama con corteza intacta; y RSC: rama sin corteza, mostrando la lesión necrótica en la madera.
Figura 4. Pruebas de patogenicidad en ramas desprendidas de naranja dulce (C. sinensis), mostrando los síntomas inducidos por aislados representativos de cinco especies de Lasiodiplodia 15 días después de la inoculación. A) control inoculado con discos estériles de PDA; B) L. iraniensis IXBN13; C) L. mexicanensis IXBN29; D) L. pseudotheobromae IXBN14; E) L. subglobosa IXBN25; F) L. theobromae IXBN3. RC: rama con corteza intacta; y RSC: rama sin corteza, mostrando la lesión necrótica en la madera.
Figura 5. Lesiones necróticas inducidas por un aislado representativo de cada especie de <em>Lasiodiplodia</em> en ramas desprendidas de naranja dulce (<em>C. sinensis</em>) 15 días después de la inoculación. Las barras representan la media ± error estándar. Medias con letras distintas indican diferencias significativas de acuerdo con la prueba de Diferencia Mínima Significativa (LSD; p ≤ 0.05).
Figura 5. Lesiones necróticas inducidas por un aislado representativo de cada especie de Lasiodiplodia en ramas desprendidas de naranja dulce (C. sinensis) 15 días después de la inoculación. Las barras representan la media ± error estándar. Medias con letras distintas indican diferencias significativas de acuerdo con la prueba de Diferencia Mínima Significativa (LSD; p ≤ 0.05).
  • Vol. 2026, 44(4)
  • Nota Fitopatológica
  • Número Especial

Coinfección por Lasiodiplodia pseudotheobromae y Pestalotiopsis mangiferae suprime los genes de defensa de Mangifera indica

PorJuan C Noa Carrazana, Liliana E Saucedo Picazo*, Felipe R Flores de la Rosa, Norma Flores Estévez

Recibido: 03/julio/2026 – Publicado: 28/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-10

Resumen Antecedentes/Objetivo. La muerte descendente es una enfermedad fúngica importante en árboles de mango (Mangifera indica) a nivel mundial, asociada con varias especies de hongos. En México, Lasiodiplodia pseudotheobromae y Pestalotiopsis mangiferae están asociadas con síntomas de muerte descendente de ramas, presentándose frecuentemente como coinfecciones. Sin embargo, la respuesta específica de los genes del mango a la infección única y a la coinfección por estos patógenos sigue siendo desconocida. Por lo tanto, el objetivo de este estudio fue analizar los patrones de expresión de genes de defensa seleccionados en mango Manila durante la infección única y la coinfección con L. pseudotheobromae and P. mangiferae.

Desarrollo experimental. Ramas de mango de la variedad Manila fueron inoculadas con aislamientos de L. pseudotheobromae S10, y P. mangiferae en tratamientos independientes y de coinfección. El experimento se estableció bajo un diseño completamente al azar con cuatro repeticiones por tratamiento. La expresión génica se evaluó a los 1, 3, 5 y 7 días después de la inoculación (DDI). Se extrajo ARN total de los tejidos infectados y se determinaron los niveles de expresión relativa de los Genes relacionados con la Patogenicidad 1 (PR1), Factor de Respuesta al Etileno 61 (ERF61), NBS-LRR, y Chalcona Sintasa (CHS) mediante PCR cuantitativa en tiempo real utilizando el método 2-ΔΔCT. Los datos de expresión se analizaron mediante análisis de varianza de una vía, y las comparaciones de medias se realizaron utilizando la prueba de Tukey (p ≤ 0.05).

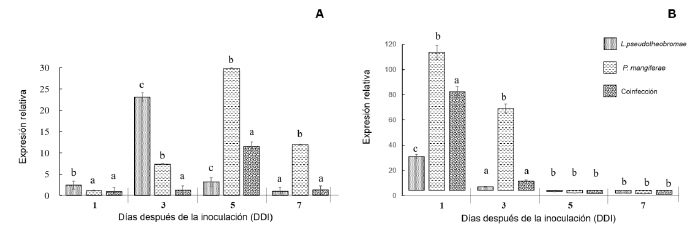
Resultados. El tratamiento de coinfección mostró una menor acumulación de transcritos de los genes de defensa evaluados que los tratamientos de infección individual (p = 0.05). La mayor expresión de PR1 se detectó durante la infección con L. pseudotheobromae S10, con valores aproximadamente 10 veces superiores a los observados en la infección con P. mangiferae MN2 y en la coinfección a los 7 días posinoculación (DPI). Por el contrario, ERF61 mostró una mayor inducción temprana durante la infección con P. mangiferae MN2, con un nivel de expresión 9 veces superior al inducido por L. pseudotheobromae S10 a 1 DPI. El gen NBS-LRR se expresó durante las infecciones individuales, mientras que no se detectó acumulación de sus transcritos en los tejidos coinfectados. Asimismo, la expresión de CHS fue mayor durante la infección con L. pseudotheobromae S10, con niveles 2.5 veces superiores a los detectados durante la coinfección a 1 DDI.

Conclusión. La coinfección de L. pseudotheobromae y P. mangiferae redujo la expresión de PR1, NBS-LRR y CHS en comparación con las infecciones individuales, lo que sugiere una mayor supresión de genes específicos de defensa de la planta, que podría traducirse en un aumento de la severidad de la muerte regresiva. Se requiere más investigación para profundizar en el conocimiento de los mecanismos moleculares y de los efectos de la coinfección sobre las respuestas de defensa del hospedante y la progresión de la enfermedad.

Mostrar Figuras y/o Cuadros
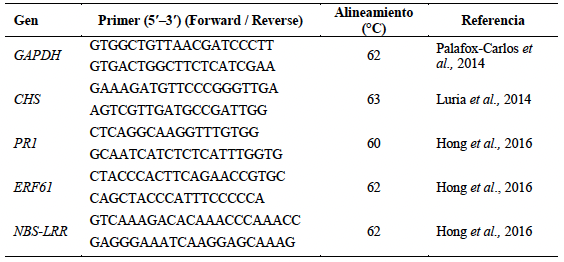
Cuadro 1. Cebadores utilizados para medir la expresión de transcritos de cinco genes en <em>M. indica</em>.
Cuadro 1. Cebadores utilizados para medir la expresión de transcritos de cinco genes en M. indica.
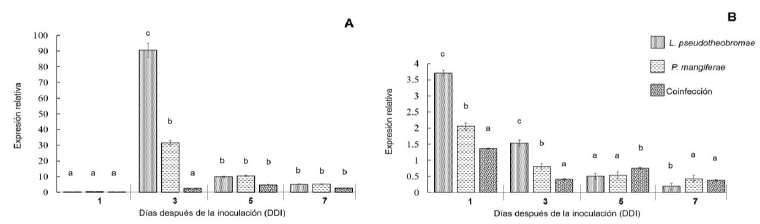
Figura 1. Expresión relativa de los genes A) PR1 y B) ERF61 en respuesta a la infección individual y a la coinfección de <em>L. pseudotheobromae</em> y <em>P. mangiferae</em>. Letras diferentes representan diferencias significativas según la prueba de Tukey (p < 0.05).
Figura 1. Expresión relativa de los genes A) PR1 y B) ERF61 en respuesta a la infección individual y a la coinfección de L. pseudotheobromae y P. mangiferae. Letras diferentes representan diferencias significativas según la prueba de Tukey (p < 0.05).
Figura 2. Expresión relativa de los genes A) NBS-LRR y B) CHS en respuesta a la infección individual y a la coinfección de <em>L. pseudotheobromae</em> y <em>P. mangiferae.</em> Letras diferentes representan diferencias significativas según la prueba de Tukey (p < 0.05).
Figura 2. Expresión relativa de los genes A) NBS-LRR y B) CHS en respuesta a la infección individual y a la coinfección de L. pseudotheobromae y P. mangiferae. Letras diferentes representan diferencias significativas según la prueba de Tukey (p < 0.05).
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Streptomyces spp. como agente antagonista de Fusarium spp. en el cultivo de chile poblano (Capsicum annuum)

PorBertha María Sánchez García, María Alejandra Mora Avilés*

Recibido: 02/junio/2026 – Publicado: 28/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-7

Resumen Antecedentes/Objetivo. Una de las enfermedades que afectan la producción y calidad del cultivo de chile (Capsicum annuum) es la marchitez del chile, la cual ocasiona pérdidas de más del 60 % a nivel mundial. El control con fungicidas sintéticos tiene limitaciones en su efectividad. Cepas de Streptomyces antagonistas de hongos fitopatógenos representan una opción. El objetivo fue analizar el desempeño de Streptomyces spp. en la reducción de incidencia de la enfermedad en plantas de chile poblano en campo.

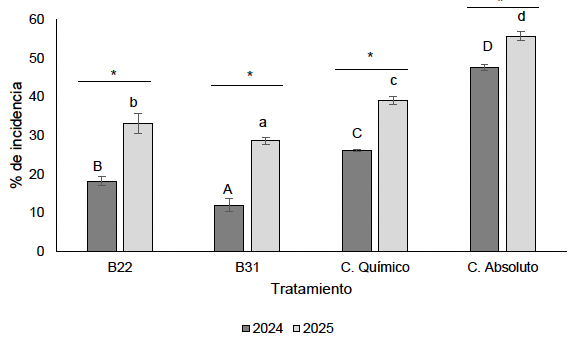
Materiales y Métodos. Plántulas de chile tipo poblano variedad AP-VR fueron trasplantadas a suelo naturalmente infestado con Fusarium spp. Cuatro tratamientos consistieron en la aplicación de 30 mL de Streptomyces lasiicapitis (B22) y S. neyagawaensis (B31) (1 × 10⁸ UFC mL-1 de cada cepa), control químico [TCMTB (1.75 mL L-1), dimetomorf (3.5 mL L-1) y tiofanato metílico (1.75 g L-1)] y control absoluto (agua) fueron aplicados vía drench, en un diseño de bloques completos al azar, con tres repeticiones, de 60 plantas cada una. Las variables evaluadas fueron la incidencia de marchitez y unidades formadoras de colonias (UFC) del hongo en el suelo realizado en cuatro muestreos. El experimento se realizó en 2024 y 2025.

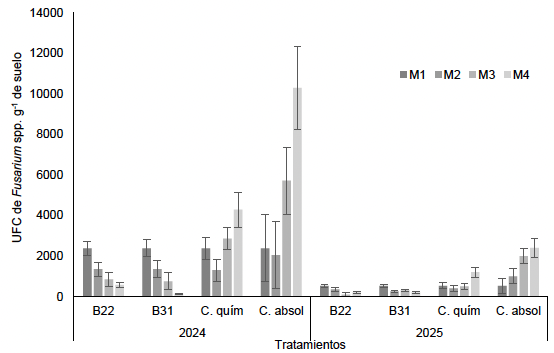
Resultados. La diferencia en la incidencia de marchitez causada por Fusarium spp. respecto al control absoluto, en plantas de chile inoculadas con S. lasiicapitis (B22) fue 22.6 y 29.3 % menor; mientras que en plantas inoculadas con S. neyagawaensis (B31) fue de 27 y 35.6 % menor, en 2024 y 2025, respectivamente. Por otra parte, las plantas inoculadas con B22 mostraron una incidencia entre 6 y 8 %, y la incidencia de las plantas inoculadas con B31 fue de 10.5 y 14.2 % menor que el control químico, en los años 2024 y 2025, respectivamente. La tasa de reducción de UFC de Fusarium spp. fue mayor con B31 que con B22 en 2024, aunque no se observó diferencia estadísticamente significativa entre ambas cepas en los dos años evaluados. La diferencia en el contenido de UFC de Fusarium spp. en suelo entre los tratamientos con Streptomyces spp. (B22 y B31) y el control absoluto, en 2024, fue de 98.6 y de 91% en 2025.

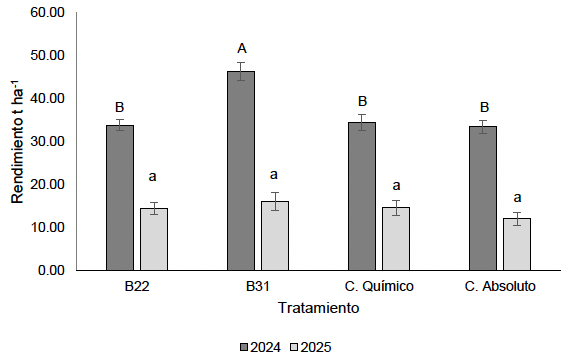
Conclusión. Streptomyces spp. exhibió en contenido de UFC Fusarium spp. en suelo (91-98 %) en comparación con el tratamiento químico (58.33-50 %), así como una menor incidencia (22.6-35.6 %). El experimento en campo durante dos años agroclimáticamente diferentes demostró que S. neyagawaensis redujo la incidencia de la enfermedad, aún en condiciones que favorecieron la proliferación de Fusarium spp. Basado en los resultados obtenidos S. neyagawaensis se perfila como un importante agente de biocontrol que, además, abonó en el incremento en precocidad y rendimiento (34 - 36 t ha-1) de chile poblano.

Mostrar Figuras y/o Cuadros
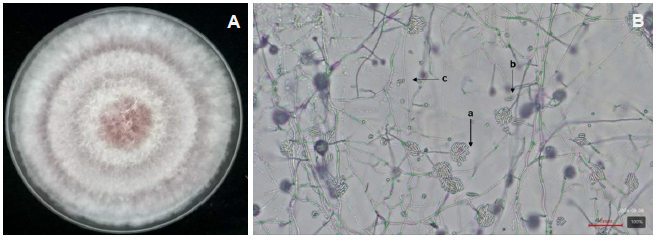
Figura 1. A. Desarrollo micelial de <em>Fusarium</em> spp. en PDA. B. Estructuras correspondientes a <em>Fusarium</em> spp. a) esporodoquios, b) macroconidios en forma de canoa y c) microconidios.
Figura 1. A. Desarrollo micelial de Fusarium spp. en PDA. B. Estructuras correspondientes a Fusarium spp. a) esporodoquios, b) macroconidios en forma de canoa y c) microconidios.
Figura 2. Promedio de unidades formadoras de colonias (UFC) de <em>Fusarium</em> spp. en suelo cultivado con chile poblano. Tratamientos: inoculado con B22 (S. lasiicapitis), B31 (<em>S. neyagawaensis</em>), control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua), a lo largo del cultivo y hasta la etapa comercial. M1, M2, M3 y M4, indican número de muestreo. Las barras de error indican el intervalo de confianza de la media, p ≤ 0.05.
Figura 2. Promedio de unidades formadoras de colonias (UFC) de Fusarium spp. en suelo cultivado con chile poblano. Tratamientos: inoculado con B22 (S. lasiicapitis), B31 (S. neyagawaensis), control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua), a lo largo del cultivo y hasta la etapa comercial. M1, M2, M3 y M4, indican número de muestreo. Las barras de error indican el intervalo de confianza de la media, p ≤ 0.05.
Figura 3. Porcentaje de incidencia de marchitez en plantas de chile poblano variedad AP-VR, inoculado con <em>S. lasiicapitis</em> (B22), <em>S. neyagawaensis</em> (B31), control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua), en dos años de evaluación en campo. Letras mayúsculas y minúsculas se refieren a diferencias estadísticamente significativas para 2024 y 2025, respectivamente. *Diferencia estadística significativa entre años. Las barras de error indican el intervalo de confianza de la media p ≤ 0.05.
Figura 3. Porcentaje de incidencia de marchitez en plantas de chile poblano variedad AP-VR, inoculado con S. lasiicapitis (B22), S. neyagawaensis (B31), control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua), en dos años de evaluación en campo. Letras mayúsculas y minúsculas se refieren a diferencias estadísticamente significativas para 2024 y 2025, respectivamente. *Diferencia estadística significativa entre años. Las barras de error indican el intervalo de confianza de la media p ≤ 0.05.
Figura 4. Rendimiento de chile poblano AP-VR, inoculado con B22 (<em>S. lasiicapitis</em>); B31 (<em>S. neyagawaensis</em>); Control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua). Las letras mayúsculas y minúsculas se refieren a diferencias estadísticamente significativas para 2024 y 2025, respectivamente. Las barras de error indican el intervalo de confianza de la media, p ≤ 0.05.
Figura 4. Rendimiento de chile poblano AP-VR, inoculado con B22 (S. lasiicapitis); B31 (S. neyagawaensis); Control químico (TCMTB, dimetomorf y tiofanato metílico) y control absoluto (agua). Las letras mayúsculas y minúsculas se refieren a diferencias estadísticamente significativas para 2024 y 2025, respectivamente. Las barras de error indican el intervalo de confianza de la media, p ≤ 0.05.
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Patogenicidad y virulencia de aislamientos de Alternaria alternata y Fusarium oxysporum de girasol silvestre (Helianthus annuus) en girasol cultivado en el norte de Tamaulipas

PorMa Eugenia Cisneros López*, Miguel Ángel Valdez Hernández, María Genoveva Álvarez Ojeda, Flor Elena Ortiz Chairez, Javier González Quintero

Recibido: 12/junio/2026 – Publicado: 27/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-4

Resumen Antecedentes/Objetivo. El girasol silvestre o polocote (Helianthus annuus) es una maleza ampliamente distribuida en el norte de Tamaulipas, México, donde coexiste con sistemas agrícolas de temporal y riego basados en gramíneas (o cereales). Debido a su estrecha relación genética con el girasol cultivado, puede funcionar como una fuente potencial de inóculo de microorganismos fitopatógenos de importancia epidemiológica. El objetivo de este estudio fue determinar la capacidad patogénica de aislamientos de Alternaria alternata y Fusarium oxysporum obtenidos de polocote y evaluar el efecto del estado fenológico al momento de la infección sobre el desarrollo del girasol.

Materiales y Métodos. El experimento se llevó a cabo en macetas bajo condiciones de vivero a cielo abierto en el Campo Experimental Río Bravo, Tamaulipas, México (INIFAP). Se utilizaron aislamientos previamente caracterizados de A. alternata y F. oxysporum obtenidos de poblaciones de semilla de polocote. La inoculación se realizó en plantas del híbrido de girasol RRC 2205 en los estados fenológicos V4 y V6, utilizando suspensiones ajustadas a 1 × 10⁶ conidia mL⁻'. Se evaluaron la altura de planta, el diámetro de capítulo, el peso seco total, el peso seco del capítulo, así como la incidencia y la severidad de la enfermedad. Los datos se analizaron mediante análisis de varianza (ANOVA) y la prueba de comparación de medias de Tukey (α = 0.05).

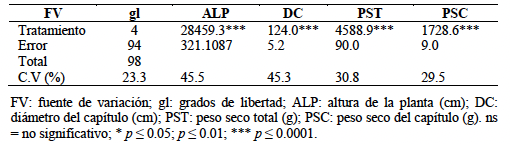
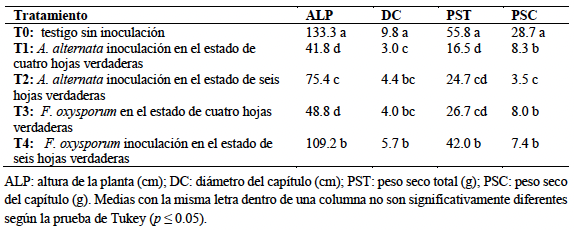
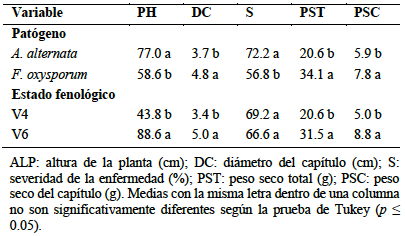
Resultados. Ambos patógenos infectaron con éxito el girasol cultivado y produjeron síntomas característicos de marchitez foliar, necrosis y pudrición del tallo. La incidencia de la enfermedad osciló entre el 92 y el 100 % entre los tratamientos inoculados. Los análisis estadísticos revelaron efectos de tratamiento altamente significativos para todas las variables evaluada (p ≤ 0.0001). Las inoculaciones realizadas en el estado V4 causaron mayores reducciones en la altura de planta (43.8 cm frente a 88.6 cm en V6), el diámetro de capítulo (3.4 cm frente a 5.0 cm) y la acumulación de biomasa que aquellas realizadas en el estado V6. A. alternata produjo los niveles más altos de severidad de la enfermedad foliar (72.2 %), mientras que F. oxysporum tuvo mayor impacto en el crecimiento vegetativo y reproductivo. El reaislamiento confirmó los postulados de Koch.

Conclusión. A. alternata y F. oxysporum asociados con el polocote poseen la capacidad de infectar el girasol cultivado (incidencia del 92 al 100 %) y reducir significativamente el desarrollo de la planta (75–109 cm). Estos resultados indican que las poblaciones silvestres de H. annuus presentes en el norte de Tamaulipas constituyen una fuente importante de inóculo; como hospedero alternativo con implicaciones directas para la producción comercial de girasol.

Mostrar Figuras y/o Cuadros
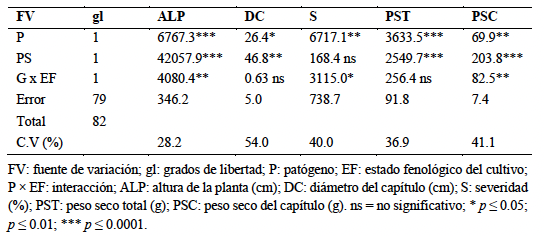
Cuadro 1. Cuadrados medios de la varianza en un diseño completamente al azar para el cultivo de girasol bajo condiciones de vivero a cielo abierto.
Cuadro 2. Efecto de la inoculación con <em>Alternaria alternata</em> y <em>Fusarium oxysporum</em> en diferentes estados fenológicos sobre el crecimiento y la biomasa del girasol.
Cuadro 2. Efecto de la inoculación con Alternaria alternata y Fusarium oxysporum en diferentes estados fenológicos sobre el crecimiento y la biomasa del girasol.
Cuadro 3. Cuadrados medios del análisis de varianza para las variables de crecimiento y biomasa de plantas de girasol bajo un diseño factorial completamente al azar en condiciones de vivero a cielo abierto.
Cuadro 4. Comparación de medias de las variables de crecimiento, severidad de la enfermedad y biomasa en plantas de girasol bajo un modelo factorial.
Cuadro 5. Incidencia y severidad de la enfermedad en plantas de girasol cultivado inoculadas con patógenos recuperados de girasol silvestre (polocote).
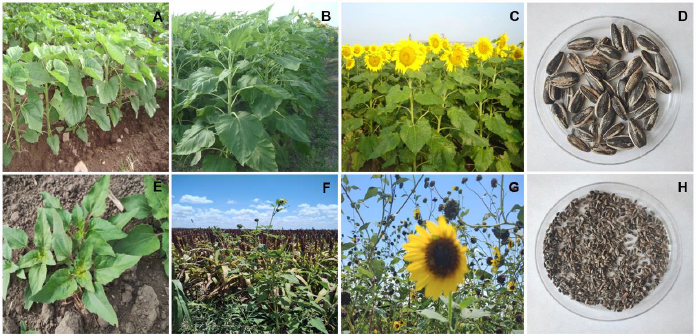
Figura 1. Comparación morfológica de <em>H. annuus</em>. Los rasgos distintivos dentro de esta especie incluyen el diámetro del capítulo, la arquitectura del tallo (tallos únicos o ramificados), la morfología foliar y el tamaño del aquenio. A–C) Cultivar mejorado de girasol en diferentes estados fenológicos; D) Semillas maduras con un tamaño aproximado de 12 x 8 mm; E–G) Girasol silvestre (polocote) y poblaciones de malezas asociadas a campos de sorgo, mostrando el estado vegetativo con cuatro a cinco hojas totalmente expandidas (E), el estado de floración/antesis (F), capítulos maduros (G) y semillas maduras pequeñas con un tamaño aproximado de 4 x 2 mm (H).
Figura 1. Comparación morfológica de H. annuus. Los rasgos distintivos dentro de esta especie incluyen el diámetro del capítulo, la arquitectura del tallo (tallos únicos o ramificados), la morfología foliar y el tamaño del aquenio. A–C) Cultivar mejorado de girasol en diferentes estados fenológicos; D) Semillas maduras con un tamaño aproximado de 12 x 8 mm; E–G) Girasol silvestre (polocote) y poblaciones de malezas asociadas a campos de sorgo, mostrando el estado vegetativo con cuatro a cinco hojas totalmente expandidas (E), el estado de floración/antesis (F), capítulos maduros (G) y semillas maduras pequeñas con un tamaño aproximado de 4 x 2 mm (H).
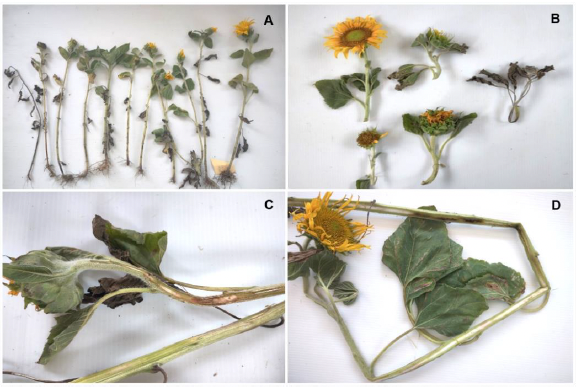
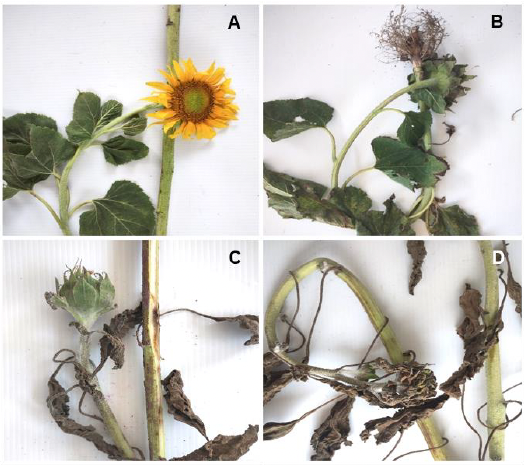
Figura 2. Progreso de los síntomas de la infección por <em>A. alternata</em> en girasol confitero bajo condiciones de vivero a cielo abierto. A) Planta testigo sin inoculación en antesis; B) marchitez progresiva y necrosis de hojas, pecíolos y tallo asociados con el desarrollo de la enfermedad; C) colapso apical y deshidratación severa del capítulo; y D) degradación necrótica del tallo principal caracterizada por lesiones de elípticas alargadas a lineales.
Figura 2. Progreso de los síntomas de la infección por A. alternata en girasol confitero bajo condiciones de vivero a cielo abierto. A) Planta testigo sin inoculación en antesis; B) marchitez progresiva y necrosis de hojas, pecíolos y tallo asociados con el desarrollo de la enfermedad; C) colapso apical y deshidratación severa del capítulo; y D) degradación necrótica del tallo principal caracterizada por lesiones de elípticas alargadas a lineales.
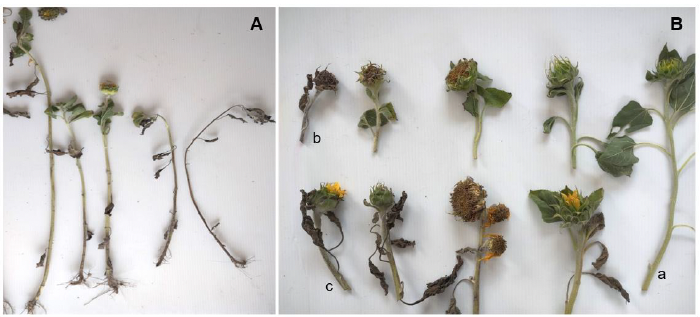
Figura 3. Respuesta diferencial de plantas de girasol confitero a la inoculación con <em>A. alternata</em> en diferentes estados fenológicos. A) Plantas inoculadas en el estado V4 (cuatro hojas verdaderas), que muestran alta susceptibilidad caracterizada por una severa inhibición del crecimiento, necrosis extensa y muerte prematura; y B) Plantas inoculadas en el estado V6 (seis hojas verdaderas): (a) planta testigo sin inoculación; (b–c) variación en la respuesta fenotípica de las plantas inoculadas, que exhiben diferentes niveles de expresión de síntomas que van desde daños severos hasta síntomas leves. La evaluación final se realizó 72 días después de la siembra.
Figura 3. Respuesta diferencial de plantas de girasol confitero a la inoculación con A. alternata en diferentes estados fenológicos. A) Plantas inoculadas en el estado V4 (cuatro hojas verdaderas), que muestran alta susceptibilidad caracterizada por una severa inhibición del crecimiento, necrosis extensa y muerte prematura; y B) Plantas inoculadas en el estado V6 (seis hojas verdaderas): (a) planta testigo sin inoculación; (b–c) variación en la respuesta fenotípica de las plantas inoculadas, que exhiben diferentes niveles de expresión de síntomas que van desde daños severos hasta síntomas leves. La evaluación final se realizó 72 días después de la siembra.
Figura 4. Respuesta de plantas de girasol confitero a la inoculación con <em>F. oxysporum</em> en dos estados fenológicos bajo condiciones de vivero a cielo abierto. (A–B) Plantas inoculadas en el estado de cuatro hojas verdaderas (V4), que muestran reducción del crecimiento, marchitez, muerte prematura, floración temprana y deformación o pudrición del capítulo en comparación con el testigo sin inoculación (a); y (C–D) Plantas inoculadas en el estado de seis hojas verdaderas (V6), que exhiben necrosis vascular que se extiende hasta la base del pedúnculo, sin alteraciones visibles en el capítulo durante la antesis.
Figura 4. Respuesta de plantas de girasol confitero a la inoculación con F. oxysporum en dos estados fenológicos bajo condiciones de vivero a cielo abierto. (A–B) Plantas inoculadas en el estado de cuatro hojas verdaderas (V4), que muestran reducción del crecimiento, marchitez, muerte prematura, floración temprana y deformación o pudrición del capítulo en comparación con el testigo sin inoculación (a); y (C–D) Plantas inoculadas en el estado de seis hojas verdaderas (V6), que exhiben necrosis vascular que se extiende hasta la base del pedúnculo, sin alteraciones visibles en el capítulo durante la antesis.
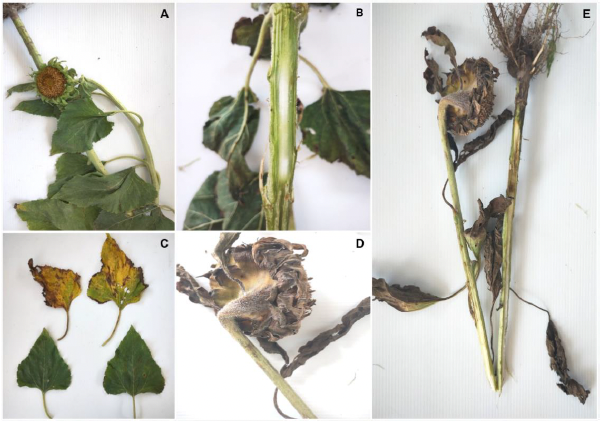
Figura 5. Síntomas de la pudrición del tallo causada por <em>F. oxysporum</em> en girasol confitero durante estados fenológicos avanzados. A) Plantas testigo con desarrollo normal y arquitectura intacta; B) sección longitudinal del tallo que muestra tejidos internos sanos sin necrosis visible. Plantas infectadas; C) hojas que exhiben clorosis, necrosis y pérdida de turgencia; D) marchitez severa, deshidratación del capítulo y lesiones en el pedúnculo y receptáculo floral; y E) necrosis y deterioro de los tejidos internos del tallo.
Figura 5. Síntomas de la pudrición del tallo causada por F. oxysporum en girasol confitero durante estados fenológicos avanzados. A) Plantas testigo con desarrollo normal y arquitectura intacta; B) sección longitudinal del tallo que muestra tejidos internos sanos sin necrosis visible. Plantas infectadas; C) hojas que exhiben clorosis, necrosis y pérdida de turgencia; D) marchitez severa, deshidratación del capítulo y lesiones en el pedúnculo y receptáculo floral; y E) necrosis y deterioro de los tejidos internos del tallo.
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Girasol silvestre (Helianthus annuus) como fuente potencial de hongos fitopatógenos asociados a enfermedades del sorgo

PorMa Eugenia Cisneros López*, Miguel Ángel Valdez Hernández, María Genoveva Álvarez Ojeda, Flor Elena Ortiz Chairez

Recibido: 12/junio/2026 – Publicado: 27/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-3

Resumen Antecedentes/Objetivo. Las malezas pueden actuar como hospederos alternos de patógenos y favorecer su persistencia en los cultivos. En el norte de Tamaulipas, Helianthus annuus es una maleza anual de importancia agronómica que coexiste con el sorgo y podría favorecer el intercambio de microorganismos fitopatógenos entre ambos hospederos. El objetivo fue identificar y evaluar la patogenicidad de la microbiota fúngica asociada con sus semillas.

Materiales y Métodos. Se recolectaron semillas de H. annuus en 19 sitios del norte de Tamaulipas durante 2023. Las semillas se desinfectaron y sembraron en PDA para aislar hongos, que se purificaron mediante cultivos monospóricos e identificaron por morfología y análisis molecular. La patogenicidad de Fusarium y Alternaria se evaluaron en semillas y plántulas bajo condiciones de laboratorio, así como en plantas de sorgo del híbrido Pioneer® 83G19 en vivero, mediante un diseño completamente al azar. Se registró la germinación, la severidad del daño mediante una escala visual, la altura, la longitud de la panoja y la biomasa. Los datos se analizaron mediante análisis de varianza.

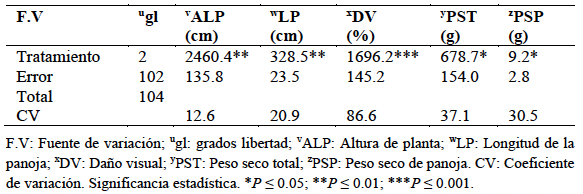
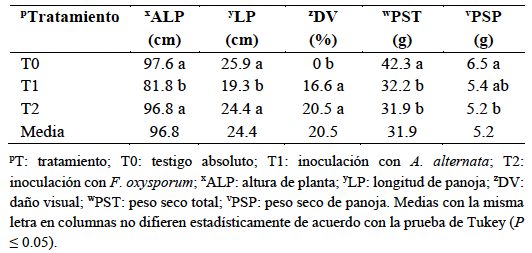
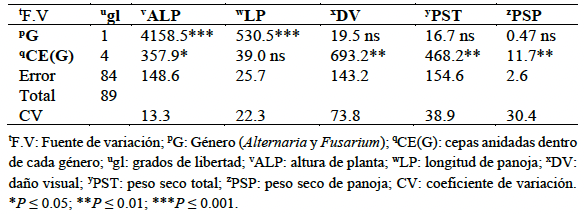
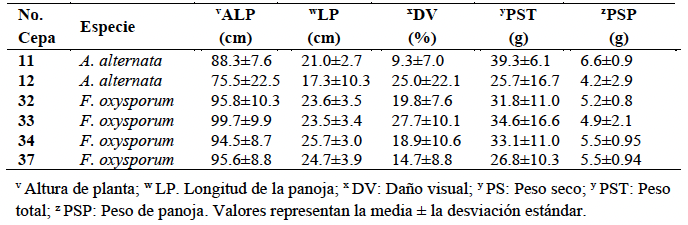
Resultados. Se obtuvieron 25 aislamientos puros; correspondieron a Fusarium (92 %) y Alternaria (8 %). La identificación molecular confirmó F. oxysporum (98.35 % de identidad) y A. alternata (99.30 %). No tuvieron efecto significativo en la germinación (88–97 % en inoculados vs. 98 % testigo); sin embargo, en plántulas se registraron lesiones radiculares con incidencia de hasta 90 % en aislamientos con F. oxysporum. En vivero, ambos hongos redujeron el crecimiento y la biomasa del sorgo respecto al testigo: A. alternata disminuyó la altura de planta en 16.2 %, mientras que F. oxysporum redujo el peso seco total y de panoja hasta en 24.6 y 20.0 %, respectivamente. Asimismo, A. alternata (16.6 %) y la cepa 33 de F. oxysporum (27.7 %) registraron los mayores niveles de daño visual.

Conclusión. Se identificaron morfológica y molecularmente a Fusarium oxysporum (92 %) y Alternaria alternata (8 %) en semillas de H. annuus silvestre. Los aislamientos mostraron capacidad patogénica en sorgo bajo condiciones controladas. La variabilidad patogénica dependió del aislamiento, con implicaciones epidemiológicas de la maleza en la dinámica del inóculo en el cultivo de sorgo. El manejo integrado de la maleza puede reducir riesgos fitosanitarios en sistemas de producción de sorgo del norte de México.

Mostrar Figuras y/o Cuadros
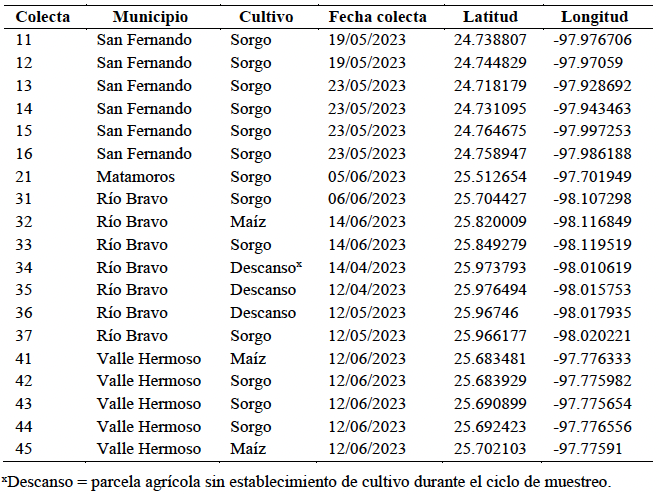
Cuadro 1. Sitios de colecta de semillas de girasol silvestre (<em>H. annuus</em>) en el norte de Tamaulipas, México.
Cuadro 1. Sitios de colecta de semillas de girasol silvestre (H. annuus) en el norte de Tamaulipas, México.
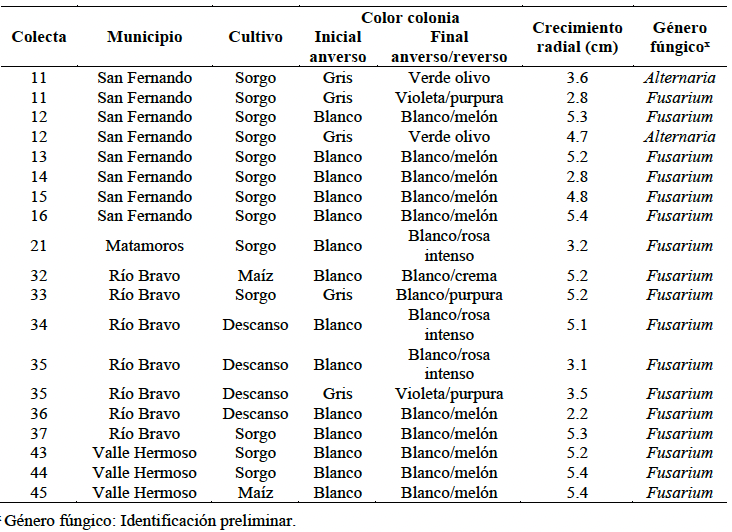
Cuadro 2. Características culturales de aislamientos fúngicos obtenidos de semillas de girasol silvestre (<em>H. annuus</em>).
Cuadro 2. Características culturales de aislamientos fúngicos obtenidos de semillas de girasol silvestre (H. annuus).
Cuadro 3. Cuadrados medios del análisis de varianza para variables agronómicas y daño visual en sorgo inoculado en condiciones de vivero.
Cuadro 4. Comparación de medias de variables agronómicas y daño visual en plantas de sorgo inoculadas con <em>A. alternata</em> y <em>F. oxysporum</em> bajo un diseño completamente al azar.
Cuadro 4. Comparación de medias de variables agronómicas y daño visual en plantas de sorgo inoculadas con A. alternata y F. oxysporum bajo un diseño completamente al azar.
Cuadro 5. Cuadrados medios del análisis de varianza para variables agronómicas y daño visual en sorgo bajo un modelo anidado de cepas dentro de género.
Cuadro 6. Comparación de medias entre géneros y cepas causantes de las manchas foliares y pudrición del tallo y panoja, en sorgo.
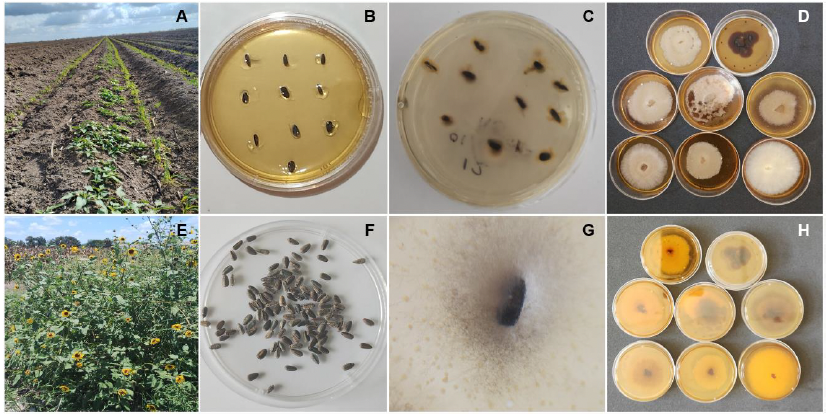
Figura 1. Girasol silvestre o polocote (<em>H. annuus</em>) en el norte de México. A) Planta en estado vegetativo asociado con el cultivo de maíz; B-C) Semillas incubadas en medio papa dextrosa agar (PDA); D) Aislamientos fúngicos purificados con variación de crecimiento micelial colonial; E) Planta madura con ramificaciones y capítulos florales; F) Aquenios maduros; G) Colonización y desarrollo de micelio sobre semillas; H) Vista del reverso de los aislamientos fúngicos purificados en medio PDA.
Figura 1. Girasol silvestre o polocote (H. annuus) en el norte de México. A) Planta en estado vegetativo asociado con el cultivo de maíz; B-C) Semillas incubadas en medio papa dextrosa agar (PDA); D) Aislamientos fúngicos purificados con variación de crecimiento micelial colonial; E) Planta madura con ramificaciones y capítulos florales; F) Aquenios maduros; G) Colonización y desarrollo de micelio sobre semillas; H) Vista del reverso de los aislamientos fúngicos purificados en medio PDA.
Figura 2. Aislamientos monospóricos de <em>F. oxysporum</em> provenientes de la semilla de girasol o silvestre o polocote maleza asociada al cultivo de maíz y sorgo, en el Norte de Tamaulipas. Crecimiento de cinco días en medio PDA a 25 oC. Agrupados según la pigmentación de la colonia. A y B) Color morado-gris claro anverso y purpura el reverso; C) y D) Color blanco anverso y melón el reverso.
Figura 2. Aislamientos monospóricos de F. oxysporum provenientes de la semilla de girasol o silvestre o polocote maleza asociada al cultivo de maíz y sorgo, en el Norte de Tamaulipas. Crecimiento de cinco días en medio PDA a 25 oC. Agrupados según la pigmentación de la colonia. A y B) Color morado-gris claro anverso y purpura el reverso; C) y D) Color blanco anverso y melón el reverso.
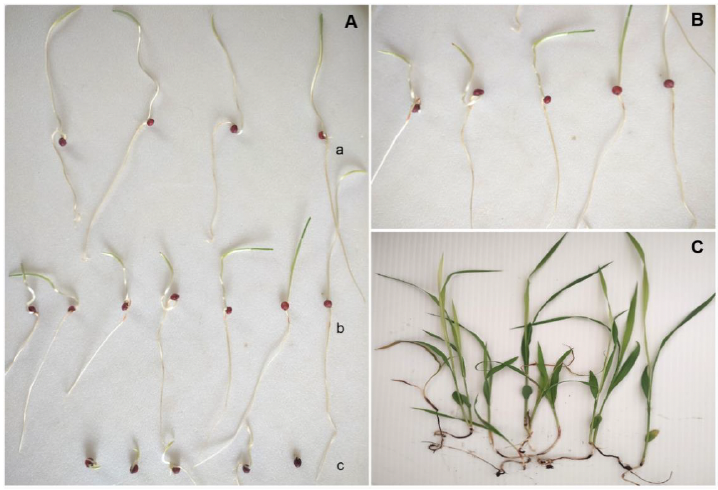
Figura 3. Respuesta patogénica a <em>F. oxysporum</em> en estadios tempranos del desarrollo de sorgo. A) Prueba de germinación estándar: a) Plántulas normales asintomáticas (testigo); b) Plántulas normales con síntomas iniciales de infección; y c) Plántulas anormales con inhibición severa del desarrollo radicular y de la plúmula; B) Acercamiento de lesiones necróticas con pigmentación rojiza característica en la radícula; C) Evaluación de la severidad del daño y porte de las plántulas a los 20 días después del trasplante en macetas con suelo estéril.
Figura 3. Respuesta patogénica a F. oxysporum en estadios tempranos del desarrollo de sorgo. A) Prueba de germinación estándar: a) Plántulas normales asintomáticas (testigo); b) Plántulas normales con síntomas iniciales de infección; y c) Plántulas anormales con inhibición severa del desarrollo radicular y de la plúmula; B) Acercamiento de lesiones necróticas con pigmentación rojiza característica en la radícula; C) Evaluación de la severidad del daño y porte de las plántulas a los 20 días después del trasplante en macetas con suelo estéril.
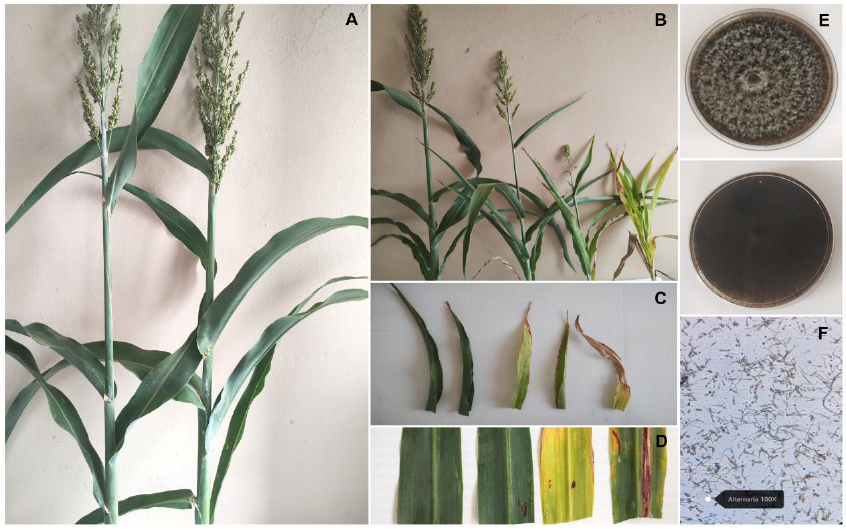
Figura 4. Sintomatología externa, alteración del desarrollo y progresión del daño foliar en plantas de sorgo infectadas por <em>A. alternata</em>. A) Plantas en etapa de emergencia de la panoja (control); B) Efecto de la severidad de la enfermedad sobre el porte y desarrollo general de las plantas, mostrando enanismo, clorosis severa y senescencia prematura (de izquierda a derecha); C) Progresión del daño en hojas completas, desde tejido sano hasta necrosis apical y desecación total de la lámina foliar; D) Acercamiento de la lámina foliar que muestra el contraste entre el tejido sano y las lesiones necróticas circulares típicas con halos cloróticos concéntricos causadas por el patógeno. E) Aspecto macroscópico de las colonias fúngicas en medio de cultivo (PDA), al anverso y reverso con el característico crecimiento miceliar denso de color verde oliva oscuro a negro con margen blanquecino después de 15 días. F) Micrografía óptica (100×) que muestra conidios maduros obclaviformes a elipsoides con septación mural mixta, dispuestos en cadenas largas y ramificadas con picos cortos y cónicos. Dimensiones conidiales de referencia para el complejo: 20 a 40 μm de longitud y 8 a 12 μm de ancho (Simmons, 2007).
Figura 4. Sintomatología externa, alteración del desarrollo y progresión del daño foliar en plantas de sorgo infectadas por A. alternata. A) Plantas en etapa de emergencia de la panoja (control); B) Efecto de la severidad de la enfermedad sobre el porte y desarrollo general de las plantas, mostrando enanismo, clorosis severa y senescencia prematura (de izquierda a derecha); C) Progresión del daño en hojas completas, desde tejido sano hasta necrosis apical y desecación total de la lámina foliar; D) Acercamiento de la lámina foliar que muestra el contraste entre el tejido sano y las lesiones necróticas circulares típicas con halos cloróticos concéntricos causadas por el patógeno. E) Aspecto macroscópico de las colonias fúngicas en medio de cultivo (PDA), al anverso y reverso con el característico crecimiento miceliar denso de color verde oliva oscuro a negro con margen blanquecino después de 15 días. F) Micrografía óptica (100×) que muestra conidios maduros obclaviformes a elipsoides con septación mural mixta, dispuestos en cadenas largas y ramificadas con picos cortos y cónicos. Dimensiones conidiales de referencia para el complejo: 20 a 40 μm de longitud y 8 a 12 μm de ancho (Simmons, 2007).
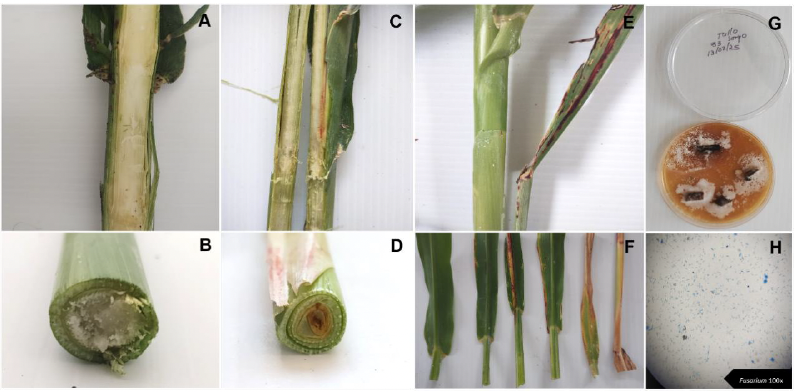
Figura 5. Sintomatología macroscópica en plantas de sorgo con marchitez vascular y re-aislamiento <em>in vitro</em> del agente causal. A) Sección longitudinal de tallo asintomático con médula sana; B) Corte transversal de tallo libre de daño vascular; C) Necrosis y decoloración rojiza característica en los haces vasculares internos de un tallo afectado; D) Obstrucción y coloración marrón en la base de la vaina y haces vasculares en sección transversal; E) Aspecto externo del entrenudo con síntomas iniciales; F) Progresión del daño, clorosis y desecación en hojas y vainas (sana a severa de izquierda a derecha); G) Re-aislamiento y crecimiento micelial algodonoso característico de <em>F. oxysporum</em> obtenido a partir de tejido de tallo inoculado, tras 8 días de incubación en medio Papa Dextrosa Agar (PDA) a 25 °C; H) Morfología microscópica de los macroconidios de la cepa de <em>Fusarium</em> spp. obtenida a partir de semillas de polocote e inoculada en sorgo. Se observan macroconidios libres, de forma fusiforme a falcada, con septación transversal evidente (3–5 septos) y extremos, teñidos con azul de lactofenol (40× de aumento).
Figura 5. Sintomatología macroscópica en plantas de sorgo con marchitez vascular y re-aislamiento in vitro del agente causal. A) Sección longitudinal de tallo asintomático con médula sana; B) Corte transversal de tallo libre de daño vascular; C) Necrosis y decoloración rojiza característica en los haces vasculares internos de un tallo afectado; D) Obstrucción y coloración marrón en la base de la vaina y haces vasculares en sección transversal; E) Aspecto externo del entrenudo con síntomas iniciales; F) Progresión del daño, clorosis y desecación en hojas y vainas (sana a severa de izquierda a derecha); G) Re-aislamiento y crecimiento micelial algodonoso característico de F. oxysporum obtenido a partir de tejido de tallo inoculado, tras 8 días de incubación en medio Papa Dextrosa Agar (PDA) a 25 °C; H) Morfología microscópica de los macroconidios de la cepa de Fusarium spp. obtenida a partir de semillas de polocote e inoculada en sorgo. Se observan macroconidios libres, de forma fusiforme a falcada, con septación transversal evidente (3–5 septos) y extremos, teñidos con azul de lactofenol (40× de aumento).
  • Vol. 2026, 44(4)
  • Artículo Científico
  • Número Especial

Productividad y resistencia a enfermedades en líneas de cebada (Hordeum vulgare)

PorMiguel González González, María Florencia Rodríguez García*

Recibido: 19/mayo/2026 – Publicado: 05/octubre/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2026-1

Resumen Antecedentes/Objetivo. Actualmente el cultivo de cebada en México se realiza utilizando variedades susceptibles a enfermedades y no aptas para las distintas regiones agrícolas. Las siembras con genotipos con características idóneas incrementaran la productividad del cultivo. El objetivo fue evaluar el comportamiento agronómico y fitopatológico de genotipos de cebada bajo condiciones de temporal.

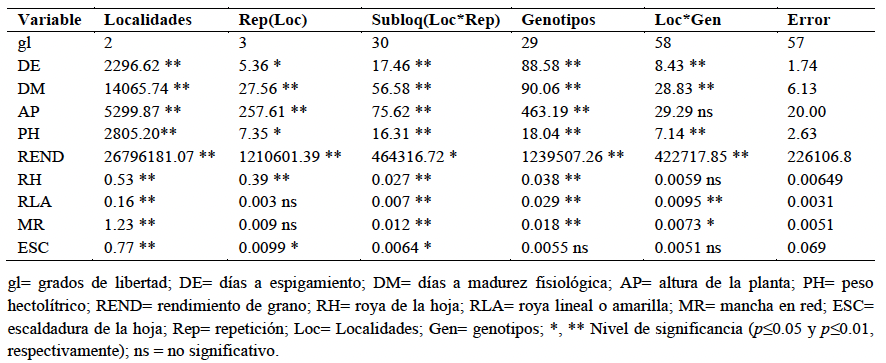
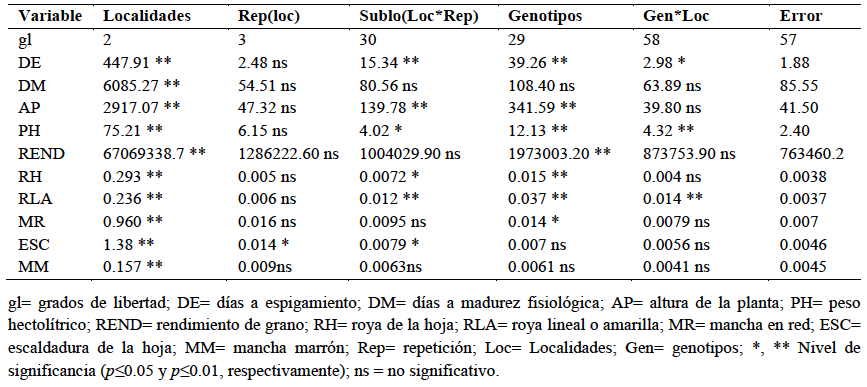
Materiales y Métodos. Durante los ciclos primavera-verano 2018 y 2019, se evaluaron 28 líneas avanzadas y dos variedades testigo (Maravilla y Doña Josefa), en tres localidades de los estados de Tlaxcala, Puebla y Estado de México. El diseño experimental fue Alfa Latice 5 x 6 con dos repeticiones. La unidad experimental constó de cuatros surcos con longitud de 2.0 m y espaciado a 0.3 m. Se registraron las variables: días a espigamiento (DE), días a madurez fisiológica (DM), altura de la planta (AP), rendimiento de grano (REND), peso hectolítrico (PH); severidad final de las enfermedades: roya de la hoja (RH), roya lineal o amarilla (RLA), mancha reticular (MR), mancha marrón (MM) y escaldadura de la hoja (ESC). Los datos fueron analizados estadísticamente y se realizaron comparaciones de medias mediante la prueba de Tukey (p≤0.05).

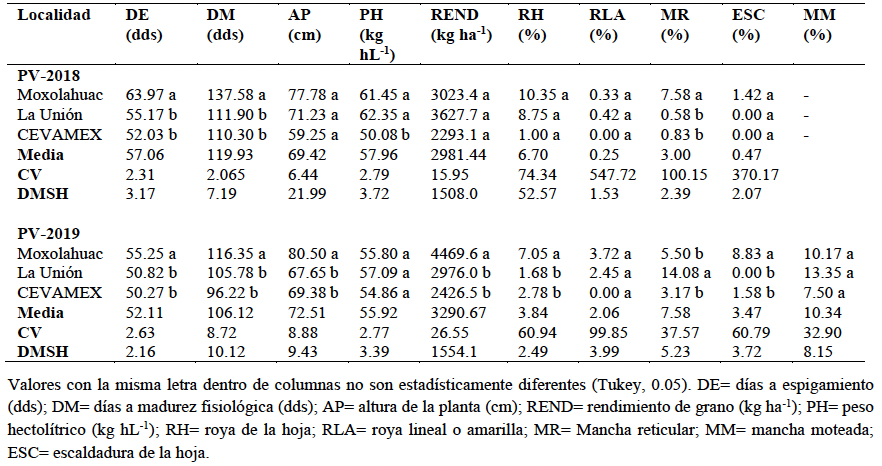
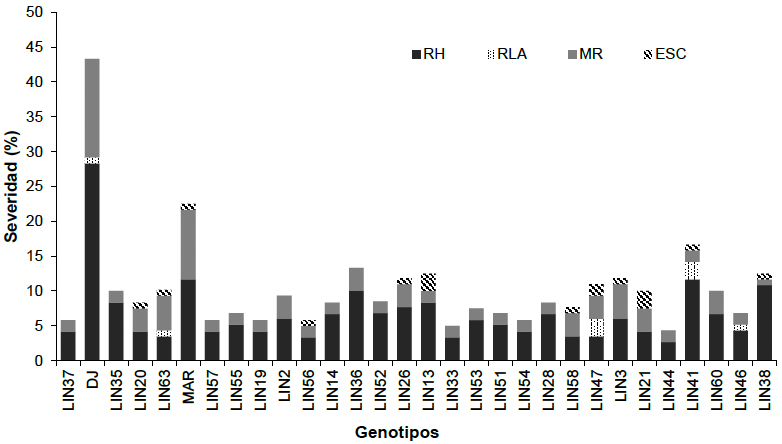
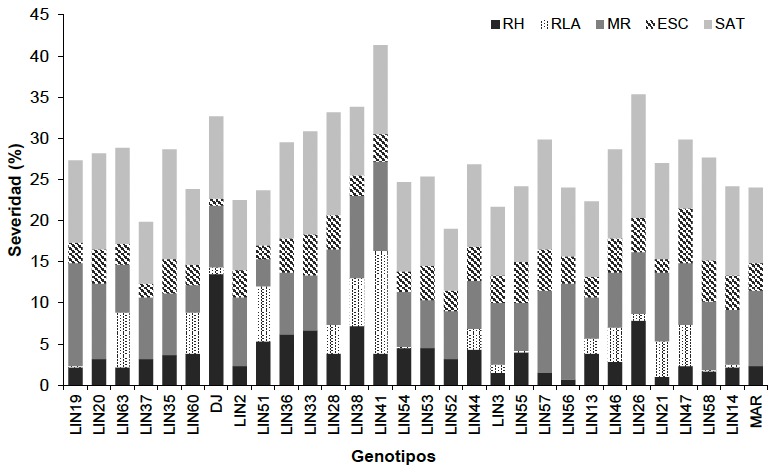
Resultados. La respuesta en la mayoría de las variables estuvo condicionada por el genotipo, la localidad y por la interacción genotipos*localidades. Los mayores rendimientos promedio de los años de evaluación se obtuvieron en las líneas LIN37 (4 183 kg ha-1), LIN19 (3 917 kg ha-1), LIN20 (3 909 kg ha-1) y LIN63 (3 857 kg ha-1) y superaron al testigo comercial Doña Josefa hasta en 12.6 %. En 2018 las enfermedades predominantes fueron las royas, mientras que el complejo de foliares lo fueron en 2019. Por su resistencia a RLA, destacaron LIN37, LIN20, LIN35, LIN36, LIN55, LIN56 y LIN57 quienes mostraron respuesta de inmunidad. Para RH fueron moderadamente resistentes LIN21, LIN37, LIN56, LIN19 y LIN3. Para MR, MM y ESC la mayoría de las líneas fueron resistentes sobresaliendo LIN51 y LIN60.

Conclusión. Las líneas LIN37, LIN19, LIN20 y LIN63 fueron las de mayor rendimiento y superaron en 12.6, 5.5, 5.3 y 3.8 % al testigo comercial (Doña Josefa). LIN37, LIN20, LIN35, LIN36, LIN55, LIN56 y LIN57 mostraron inmunidad a Puccinia striiformis f. sp. hordei. La respuesta a las enfermedades observada en las líneas sugiere que poseen genes de resistencia que les permiten resistir el ataque de las enfermedades comunes en comparación con los testigos comerciales.

Mostrar Figuras y/o Cuadros
Cuadro 1. Cuadrados medios del análisis de varianza conjunto a través de localidades para variables agronómicas y de enfermedades en genotipos de cebada, ciclo P-V 2018.
Cuadro 2. Cuadrados medios del análisis de varianza combinado a través de localidades para variables agronómicas y de enfermedades en genotipos de cebada, ciclo P-V 2019.
Cuadro 3. Comportamiento promedio entre localidades para 30 genotipos de cebada evaluados en tres ambientes de temporal, ciclos P-V 2018 y P-V 2019.
Cuadro 4. Comportamiento promedio en genotipos de cebada evaluados en tres ambientes de temporal, ciclos Primavera-Verano 2018 y 2019.
Figura 1. Respuesta a las enfermedades en 30 genotipos de cebada evaluadas en tres ambientes de temporal. Ciclo P-V 2018. MAR= Maravilla, DJ= Doña Josefa. RH= Roya de la hoja; RLA= Roya lineal o amarilla; MR= Mancha reticular; ESC= Escaldadura de la hoja.
Figura 2. Respuesta a las enfermedades en 30 genotipos de cebada evaluadas en tres ambientes de temporal. Ciclo P-V 2019. Testigos (MAR= Maravilla y DJ= Doña Josefa). RH= Roya de la hoja; RLA= Roya lineal o amarilla; MR= Mancha reticular; ESC= Escaldadura de la hoja; MM= Mancha marrón.
  • Vol. 2026, 44(3)
  • Nota Fitopatológica

Uso de Purpureocillium lilacinum MTL01 y Bacillus velezensis 83 para reducir el agallamiento por Meloidogyne enterolobii y mejorar la floración en tomate

PorElena Lugo García, Alejandro Salinas Castro, Gandhi Landa Cadena, Claudia Martínez Anaya, Irán Tapia Vázquez*

Recibido: 07/mayo/2026 – Publicado: 25/agosto/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2505-3

Resumen Antecedentes/Objetivo. El objetivo de este estudio fue determinar el efecto combinado de una cepa ambiental de Purpureocillium lilacinum (MTL01) junto con esporas de Bacillus velezensis 83, promotor del crecimiento en tomate, ante la infección del nematodo agallador Meloidogyne enterolobii.

Desarrollo Experimental. El estudio se realizó con un diseño completamente al azar, con tres réplicas experimentales (julio–octubre 2022, febrero–junio 2023 y septiembre 2024–enero 2025). Los tratamientos incluyeron controles sin inocular, plantas inoculadas con P. lilacinum MTL01, con B. velezensis 83 o con ambos, con y sin infección por nematodos. Las semillas se esterilizaron y se incubaron con esporas de MTL01 o con solución control, luego se germinaron y trasplantaron. B. velezensis 83 se aplicó una semana después seguido de dos aplicaciones adicionales posteriores. Los nematodos se inocularon tres semanas posteriores al trasplante. Las plantas crecieron bajo distintas condiciones de invernadero según el experimento durante ocho semanas después de la inoculación. En la cosecha se registraron parámetros de crecimiento e infección (biomasa, longitud, número de flores, peso radicular, número de agallas e índice de agallamiento).

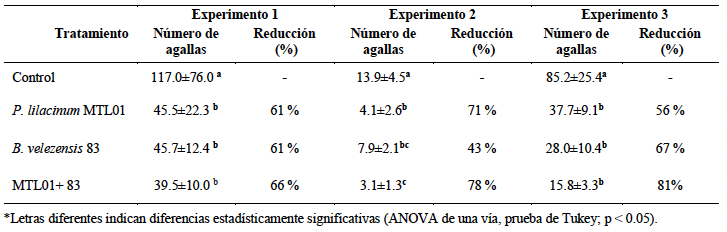
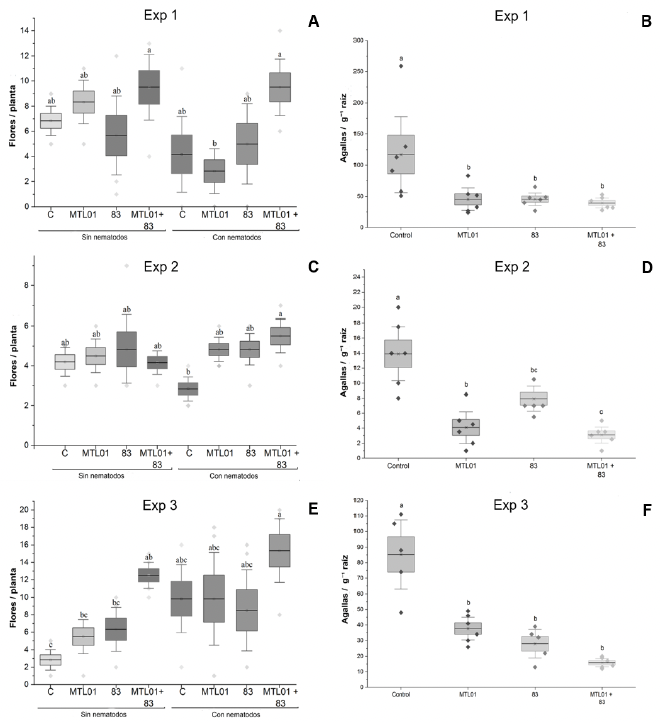
Resultados. Los datos de crecimiento vegetativo variaron entre los experimentos, sin clara evidencia de efectos asociados a la inoculación de los microorganismos. Pero la combinación de P. lilacinum MTL01 y B. velezensis 83 mostró resultados reproducibles reduciendo en más del 60 % la formación de agallas causadas por M. enterolobii y promoviendo una tendencia consistente hacia el aumento de la floración respecto a las plantas control infestadas con el nematodo. Estos resultados muestran el potencial del uso combinado de microorganismos para mejorar el rendimiento de tomate en condiciones de invernadero.

Conclusión. Los resultados resaltan la importancia de mitigar la infección por M. enterolobii en tomate con la combinación de microorganismos, no solo para controlar la población del nematodo, sino también para incrementar el rendimiento de flores en 4.3 veces (Experimento 3) de plantas sin nematodos, y 1.6 veces en presencia de M. enterolobii. Esto representa una estrategia prometedora, aunque se requiere investigación adicional para confirmar su seguridad y optimizar su aplicación en condiciones agrícolas reales.

Mostrar Figuras y/o Cuadros
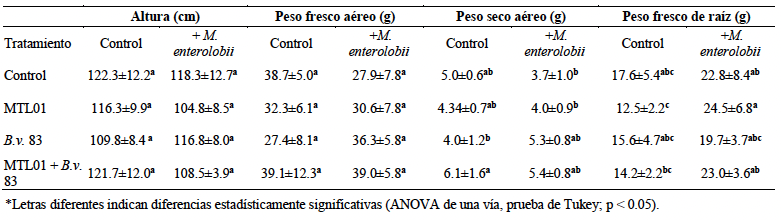
Cuadro 1. Variables de respuesta fenológicas ante la presencia y ausencia de <em>M. enterolobii</em> con diferentes tratamientos Experimento 1 (julio a octubre 2022).
Cuadro 1. Variables de respuesta fenológicas ante la presencia y ausencia de M. enterolobii con diferentes tratamientos Experimento 1 (julio a octubre 2022).
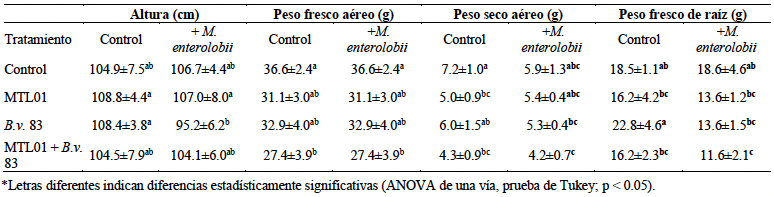
Cuadro 2. Variables de respuesta fenológicas ante la presencia y ausencia de <em>M. enterolobii</em> con diferentes tratamientos Experimento 2 (febrero a junio 2023).
Cuadro 2. Variables de respuesta fenológicas ante la presencia y ausencia de M. enterolobii con diferentes tratamientos Experimento 2 (febrero a junio 2023).
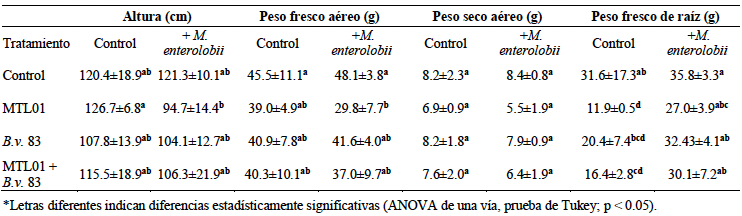
Cuadro 3. Variables de respuesta fenológicas ante la presencia y ausencia de <em>M. enterolobii</em> con diferentes tratamientos Experimento 3 (septiembre 2024 – enero 2025).
Cuadro 3. Variables de respuesta fenológicas ante la presencia y ausencia de M. enterolobii con diferentes tratamientos Experimento 3 (septiembre 2024 – enero 2025).
Cuadro 4. Número y porcentaje de reducción de agallas por tratamiento en tres experimentos independientes.
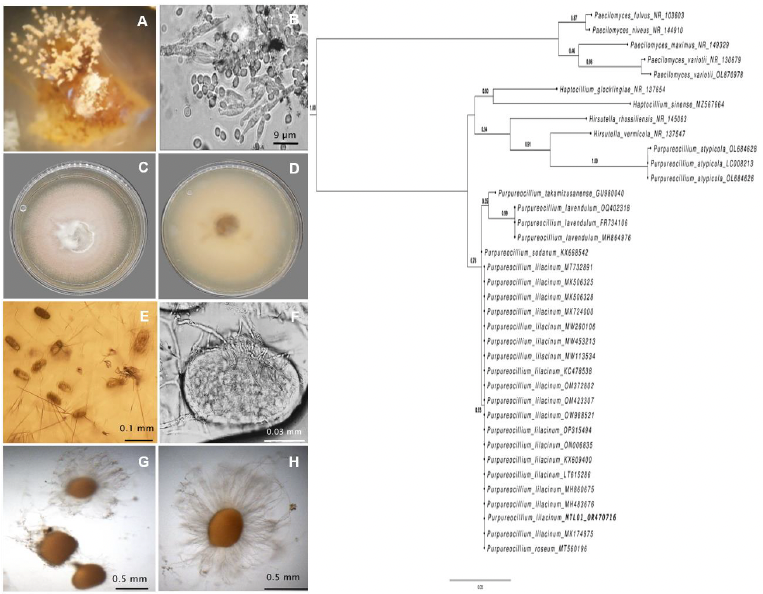
Figura 1. Aislamiento y caracterización de <em>P. lilacinum</em> MTL01. <strong>A</strong>) Micelio de MTL01 creciendo sobre una masa de huevos de <em>M. paranaensis</em>. B) Estructuras reproductivas de MTL01: conidióforos, fiálides y conidios. <strong>C</strong> y <strong>D</strong>) Apariencia de MTL01 sobre medio PDA: vista superior y vista inferior. <strong>E</strong>) Huevos de <em>M. enterolobii</em> parasitados por MTL01 en medio PDA. <strong>F</strong>) Huevo parasitado proveniente de raíces del Experimento 1. <strong>G</strong> y <strong>H</strong>) Hembras adultas parasitadas provenientes de raíces del Experimento 1. <strong>I</strong>) Filogenia de MTL01 comparada con otras cepas y especies relacionadas.
Figura 1. Aislamiento y caracterización de P. lilacinum MTL01. A) Micelio de MTL01 creciendo sobre una masa de huevos de M. paranaensis. B) Estructuras reproductivas de MTL01: conidióforos, fiálides y conidios. C y D) Apariencia de MTL01 sobre medio PDA: vista superior y vista inferior. E) Huevos de M. enterolobii parasitados por MTL01 en medio PDA. F) Huevo parasitado proveniente de raíces del Experimento 1. G y H) Hembras adultas parasitadas provenientes de raíces del Experimento 1. I) Filogenia de MTL01 comparada con otras cepas y especies relacionadas.
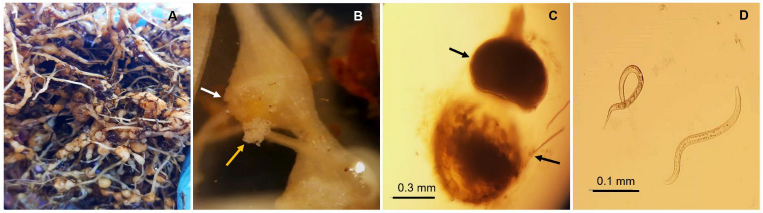
Figura 2. Población de <em>M. enterolobii</em> establecida en el laboratorio. <strong>A</strong>) Raíces agalladas después de la propagación de <em>M. enterolobii</em> a los 90 días posteriores a la inoculación con J2s, en una planta de tomate de 4 meses de edad. <strong>B</strong>) Agalla con una masa de huevos expuesta (flecha blanca) y huevos (flecha amarilla). <strong>C</strong>) Cuerpo de hembra con forma de pera (flecha superior) y masa de huevos (flecha inferior). <strong>D</strong>) Nematodos de estadio J2 eclosionados en agua.
Figura 2. Población de M. enterolobii establecida en el laboratorio. A) Raíces agalladas después de la propagación de M. enterolobii a los 90 días posteriores a la inoculación con J2s, en una planta de tomate de 4 meses de edad. B) Agalla con una masa de huevos expuesta (flecha blanca) y huevos (flecha amarilla). C) Cuerpo de hembra con forma de pera (flecha superior) y masa de huevos (flecha inferior). D) Nematodos de estadio J2 eclosionados en agua.
Figura 3. La combinación de <em>P. lilacinum</em> MTL01 y<em> B. velezensis</em> 83 promueve la floración y reduce el agallamiento en plantas de tomate infectadas con <em>M. enterolobii</em>. <strong>A</strong>), <strong>C</strong>) y <strong>E</strong>): Conteo de flores a lo largo del ciclo de vida antes de finalizar cada experimento.<strong> B</strong>), <strong>D</strong>) y <strong>F</strong>): Agallamiento de raíces por experimento. Letras diferentes indican diferencias estadísticamente significativas (ANOVA, prueba de Tukey; p < 0.05).
Figura 3. La combinación de P. lilacinum MTL01 y B. velezensis 83 promueve la floración y reduce el agallamiento en plantas de tomate infectadas con M. enterolobii. A), C) y E): Conteo de flores a lo largo del ciclo de vida antes de finalizar cada experimento. B), D) y F): Agallamiento de raíces por experimento. Letras diferentes indican diferencias estadísticamente significativas (ANOVA, prueba de Tukey; p < 0.05).
Más Contribuciones…

Inicia Sesión