El cultivo de jitomate (Solanum lycopersicum) es uno de los más rentables y consumido por sus diversos productos, durante el 2021 se cosecharon 256 770 679.92 toneladas (FAO, 2023). Sin embargo, su producción se ha visto amenazada por el Tomato brown rugose fruit virus (ToBRFV), el cual fue reportado en 2014 en Israel y en 2015 en Jordania en plantas de jitomate (
El ToBRFV es un Tobamovirus con partículas de varilla rígida, genoma de ARN de cadena sencilla (+ssRNA) y se compone de cuatro marcos de lectura abiertos (ORFs) (
La resistencia sistémica inducida en plantas es potenciada por microorganismo endófitos, epífitos y rizosféricos. Estos forman relaciones mutuas con las plantas, mejoran la asimilación de nutrientes, promueven el crecimiento, aumentan la tolerancia al estrés e induce las defensas contra microorganismos fitopatógenos (
Los tratamientos evaluados fueron: 1) Beauveria peruviencis en plantas enfermas, 2) Trichoderma longibrachiatum en plantas enfermas, 3) Pseudomonas sp. en plantas enfermas, 4) Agua en plantas sanas y 5) Agua en plantas enfermas. Las cepas de microorganismos utilizados fueron obtenidas de la colección del laboratorio de control biológico de la maestría en Protección Vegetal, de la Universidad Autónoma Chapingo. Se utilizaron cepas de 15 días de crecimiento en medio Agar Dextrosa Papa para T. longibrachiatum y Agar Dextrosa Saboraud para B. peruviencis. Las cajas Petri de ambos hongos se incubaron a 27 °C. La bacteria (Pseudomonas sp.) se sembró en Agar Nutritivo, incubado a 27 °C por 24 horas y para obtener una concentración más alta, se reaisló en medio líquido (Caldo Nutritivo) en agitación a 140 rpm, a temperatura ambiente. Posteriormente, los microorganismos se suspendieron en líquido para realizar conteos celulares con la cámara de Neubauer, usando diluciones seriadas. Las concentraciones utilizadas para los tratamientos fueron de 1X10⁸ para los hongos y en el caso de la bacteria 1X10⁹.
Los experimentos se realizaron de febrero a junio de 2023 en el invernadero del departamento de parasitología agrícola de la Universidad Autónoma Chapingo. En contenedores de 1 L, se sembraron plantas de jitomate saladette utilizando como sustrato peatmost previamente esterilizado. Cuando las plantas tuvieron dos foliolos verdaderos se les aplicaron 20 mL de los diversos tratamientos al suelo y dos días después se inocularon mecánicamente con el virus, para lo cual se provocó un daño subletal en las hojas con ayuda de carborundum 400 mallas e inmediatamente después se frotaron con un macerado de la fuente de inóculo en tampón de fosfatos pH 7.5. La fuente de inóculo del ToBRFV se obtuvo de la colección biológica del laboratorio de virus fitopatógenos del Colegio de Postgraduados. A los 41 días después de la inoculación mecánica (ddim), se volvió a aplicar 20 mL de la suspensión de los microorganismos al suelo de cada planta.
Se utilizó un diseño completamente al azar, la unidad experimental fue una planta de jitomate, y por tratamiento se tuvieron 13 repeticiones. A los 15 ddim y al finalizar el experimento se registró la altura de cada planta y su severidad, para lo cual se utilizó una escala progresiva, donde 1= sin síntomas, 2= ligera clorosis, 3= mosaico 4= reducción del crecimiento, 5= deformación de hojas y 6 = muerte. También se registró el peso fresco de la parte aérea y de la raíz de cada planta tratada al finalizar el experimento, que fue cuando inició la floración. A los 30 ddim, se tomaron muestras de las plantas enfermas tratadas para corroborar la infección viral mediante RT-PCR, utilizando los iniciadores descritos por
Los datos obtenidos fueron analizados con una prueba no paramétrica de medias, una vez que se identificó aquellas con diferencias significativas (α=0.05), se realizaron pruebas HSD de Tukey-Kramer por cada par.
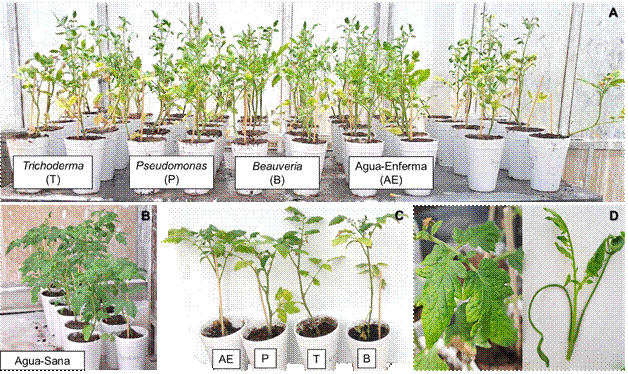
Todas las plantas inoculadas con el virus mostraron síntomas sistémicos a los 15 días después de la inoculación (
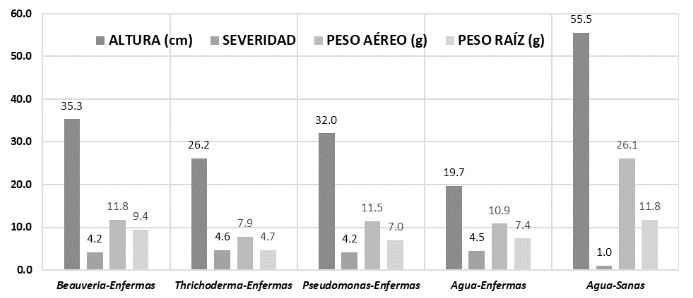
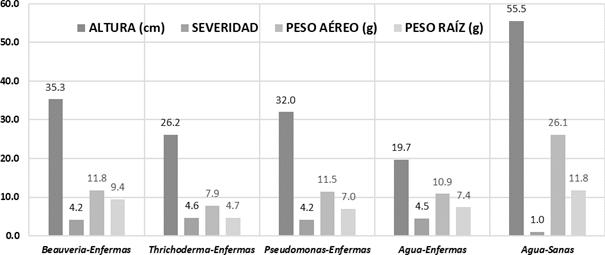
Las plantas con el tratamiento de Agua-Sanas (plantas sanas) tuvieron el mayor desarrollo radical y aéreo, y todas las variables respuesta fueron estadísticamente diferentes al resto (p= <.0001) (
| Variable respuesta | Tratamiento | Media | Letras de uniónz | |||
|---|---|---|---|---|---|---|
| Altura (cm) | Aguas-Sanas | 55.5 | A | |||
| Beauveria | 35.3 | B | ||||
| Pseudomonas | 32 | B | C | |||
| Thrichoderma | 26.1 | C | D | |||
| Aguas-Enfermas | 19.7 | D | ||||
| Severidad | Thrichoderma | 4.6 | A | |||
| Aguas-Enfermas | 4.3 | A | ||||
| Pseudomonas | 4.2 | A | ||||
| Beauveria | 4.1 | A | ||||
| Aguas-Sanas | 1 | B | ||||
| Peso aéreo (g) | Aguas-Sanas | 26.1 | A | |||
| Beauveria | 11.7 | B | ||||
| Pseudomonas | 11.45 | B | ||||
| Agua-Enferma | 10.88 | B | ||||
| Thrichoderma | 7.8 | B | ||||
| Peso raíz (g) | Agua-Sanas | 11.8 | A | |||
| Beauveria | 9.4 | A | B | |||
| Agua-Enferma | 7.4 | B | C | |||
| Pseudomonas | 7 | B | C | |||
| Thrichoderma | 4.6 | C | ||||
(Agua-Enferma) con los tratamientos aplicados a las plantas infectadas, el que favoreció el crecimiento y desarrollo, y disminuyó la severidad fue B. peruviencis, seguido de Pseudomonas sp. (p < 0.0001 y p= 0.0016); aunque la severidad fue estadísticamente similar (
Existen diversas rizobacterias promotoras del crecimiento que se han probado en cultivos y han disminuido la incidencia y severidad de las enfermedades virales; varias especies de los géneros de Pseudomonas, Bacillus y Azospirillum han demostrado ser efectivas en plantas infectadas por Cucumber mosaic virus (CMV), Tobacco mosaic virus, Tomato chlorotic spot virus, Tomato mottle virus y Tomato yellow leaf curl virus (TYLCV) (Dashti et al., 2007;
las aplicaciones de Pseudomonas fluorescens en semillas, plántulas, hojas y suelo, aumentaron la actividad de la peroxidasa y la fenilalanina-amoníaco-liasa, acumulando compuestos fenólicos, estimulando los fenilpropanoides, lo que provocó una reducción significativa de la severidad e incidencia ocasionada por Tomato spotted wilt virus (
De igual manera, se ha observado que los hongos tienen también un efecto positivo en plantas infectadas por virus. Estudios realizados en plantas de peino con CMV demostraron que Trichoderma asperellum aumentó los niveles de transcripción de los genes relacionados con la resistencia (pr1, pal1, etr1, sod, rip y lox1), y enzimas (SOD, LOX1, POX, CAT) que inducen resistencia sistémica en la planta (
Por otro lado, se conoce que algunos hongos entomopatógenos son endófitos en plantas; se ha visto que B. bassiana pueden colonizar a varias especies vegetales, como: trigo, soya (Glycine max), arroz (Oryza sativa), frijol (Phaseolus vulgaris), cebolla (Allium cepa), jitomate (S. lycopersicum), palma (Elaeis guineensis), uva (Vitis vinifera), papa (Solanum tuberosum), algodón (Gossypium hirsutum) y maíz (Zea mays) (