Viroma del nopal verdura en la zona centro de México
Candelario, Ortega-Acosta; Daniel L., Ochoa-Martínez; Reyna I., Rojas-Martínez; Cristian, Nava-Díaz; Rodrigo A., Valverde
Resumen
Resumen
Objetivo/Antecedentes
Objetivo/Antecedentes
. En este estudio se aprovechó la capacidad de la secuenciación de alto rendimiento (HTS) para detectar virus en nopal verdura.
Materiales y Métodos.
Materiales y Métodos.
Se analizaron muestras del Estado de México (EDMX), Hidalgo y Morelos, así como de la Ciudad de México (CDMX).
Resultados
Resultados
. En la muestra proveniente de EDMX, se detectaron y recuperaron los genomas de Opuntia virus 2 (OV2, género Tobamovirus) y Cactus carlavirus 1 (CCV-1, género Carlavirus). En la muestra proveniente de CDMX, además de OV2 y CCV-1, se detectó un nuevo viroide y un potexvirus. El primero tiene un genoma RNA circular con 412 nt de longitud para el cual se propone el nombre de “Opuntia viroid I” (OVd-I). La estructura primaria de este viroide mostró una identidad de secuencia de nucleótidos de menos del 80 % con cualquiera de los viroides actualmente conocidos y una relación filogenética con el género Apscaviroid, (Familia Pospiviroidae) con el que comparte motivos estructurales conservados.
Conclusión
Conclusión
. El nuevo potexvirus se denominó Opuntia potexvirus A (OPV-A), cuya secuencia de la replicasa viral tiene un 77.7 % de identidad de aminoácidos con Schlumbergera virus X. Finalmente, en 93 (72 %) de 129 muestras de nopal verdura recolectadas en las cuatro entidades, se detectó al CCV-1.
Opuntia ficus-indica es la cactácea de mayor importancia económica en el mundo, se cultiva en América, África, Asia, Europa y Oceanía (Barbera et al.,1992). Esta especie fue domesticada en México (Griffith, 2004), donde se encuentra la mayor diversidad de cultivares (Bravo 1978), y de la cual se utilizan sus frutos y cladodios, dependiendo del cultivar. En México existen aproximadamente 12,618 ha dedicadas para la producción de nopal verdura para consumo humano (SIAP, 2022). Las principales entidades productoras de nopal verdura son Morelos y Ciudad de México, que en conjunto comprenden el 50 % de la superficie total cultivada. De los cladodios se obtienen diversos productos y subproductos que se utilizan para elaborar preparaciones antidiabéticas, sus flores son empleadas para preparar bebidas diuréticas, los frutos son usados para preparar jugos, jaleas, miel, mermeladas y pastas, entre otros, y de sus semillas se extrae aceite; además, esta cactácea también se cultiva como hospedante de la “grana cochinilla” (Dactylopius coccus), insecto utilizado para la producción del tinte de ácido carmínico (Barbera et al., 1992).
A nivel mundial se han identificado diferentes virus en cactáceas, la mayoría poseen genoma ARN monocatenario (Sastry et al., 2019). Además, se han descrito dos caulimovirus que infectan Epiphyllum spp. (Lan et al., 2019; Zheng et al., 2020) y tres geminivirus en varias especies de cactus (Fontenele et al., 2020; 2021). En México, en los municipios de Axapusco, Otumba y San Martín de las Pirámides (Estado de México), se reportó al tobamovirus Rattail cactus necrosisassociated virus (RCNaV) en plantas de nopal que mostraban manchas pequeñas y anillos amarillos en los cladodios (De La Torre-Almaraz et al., 2016a). En esa misma zona, también se encontró un potexvirus Schlumbergera virus X (SchVX) en plantas de nopal que presentaban manchas irregulares y deformación de cladodios (De La Torre-Almaraz et al., 2016a). Además, en cladodios de nopal verdura que mostraban síntomas de halos cloróticos y manchas irregulares, se detectaron un tobamovirus y un potexvirus en las localidades de San Martín de las pirámides (Estado de México) y Cuautepec de Hinojosa (Hidalgo), respectivamente, de los cuales no se pudo determinar la especie (De La Torre-Almaraz et al., 2007; AlonsoBarrera et al., 2015). Por último, un tobamovirus, denominado Opuntia virus 2 (OV2), se detectó con secuenciación de alto rendimiento (HTS, high-throughput sequencing) en especies del género Opuntia (Salgado-Ortíz et al., 2020) en México.
Otros patógenos de plantas importantes son los viroides, pequeñas moléculas de ARN circular monocatenario de aproximadamente 400 nucleótidos (nt) de longitud que pueden replicarse de forma autónoma. A diferencia de los virus, no hay evidencia que los viroides codifiquen alguna proteína y que sus genomas estén protegidos por una cápside (Di Serio et al., 2014). Taxonómicamente, los viroides se dividen en dos familias: a) Pospiviroidae, que incluye cinco géneros (Apscaviroid, Cocadviroid, Coleviroid, Hostuviroid y Pospiviroid) y b) Avsunviroidae que incluye tres géneros (Avsunviroid, Pelamoviroid y Elaviroid) (Di Serio et al., 2018; 2021). Algunos viroides pueden afectar severamente la producción de diversos cultivos, mientras que otros se replican sin provocar síntomas en plantas susceptibles (Di Serio et al., 2014).
Los avances en el campo de la secuenciación han hecho que las tecnologías basadas en HTS sean más asequibles a un mayor número de usuarios (Vučurović et al., 2021). El empleo de HTS ha revolucionado la virología vegetal y acelerado el descubrimiento de nuevas especies de virus en los ecosistemas, ampliando nuestro conocimiento de la diversidad de estos fitopatógenos (Fontenele et al., 2020; Vučurović et al., 2021). Por lo anterior, el objetivo de este estudio fue conocer el viroma del nopal verdura y determinar la distribución de Cactus carlavirus 1 (CCV-1) en cuatro estados productores de nopal verdura en México.
Materiales y Métodos
Materiales y Métodos
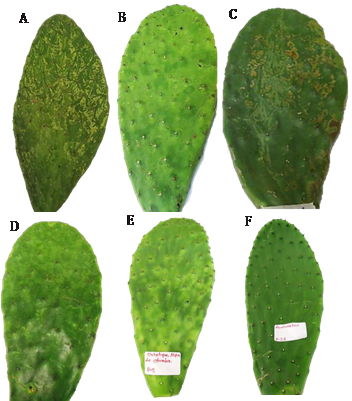
Secuenciación de alto rendimiento (HTS). Dos muestras que mostraban síntomas putativos a virus, denominadas CDMX-1 y EM-1 se sometieron a HTS. CDMX1 estuvo conformada con cladodios (n=4) que presentaban patrones amarillos irregulares, anillos amarillos y mosaico, procedentes de la alcaldía Milpa Alta de la Ciudad de México (Figura 1A-D); la muestra EM-1 (n=1) fue una planta proveniente de Oxtotipac, Municipio de Otumba, con manchas cloróticas alrededor de las espinas, este síntoma se denomina localmente por los productores “pinto” (Figura 1E). En ambos casos, se extrajo ARN con el kit SV Total RNA Isolation System (Promega, USA), siguiendo las instrucciones del fabricante. La muestra EM-1 se envió a Macrogen Inc. (Corea) en donde se preparó la librería usando TruSeq stranded total ARN, tratado previamente con Ribo-Zero Plant. La secuenciación se realizó en un equipo Illumina NovaSeq6000, con 150-bp PE. La muestra CDMX-1 se envió a BGI Genomics (China), donde se construyó la librería Eukaryotic Strand-specific mRNA y la secuenciación se realizó en la plataforma DNBSEQ, con 150-bp PE.
Análisis bioinformático. Los adaptadores y las secuencias de baja calidad de los datos obtenidos de Macrogen fueron removidos usando Fastp (Chen et al., 2018). Por su parte, las secuencias de BGI, se recibieron limpias y sin adaptadores, por lo cual se verificaron en FastQC (Andrews, 2010). Las lecturas limpias fueron ensambladas de novo con el software SPAdes (Prjibelski et al., 2020). Los contigs obtenidos fueron sometidos a una búsqueda BLASTx y BLASTn en una base de datos local de virus/viroides. Posteriormente, la lista reducida de hits virales se comparó con la base de datos completa no redundante (nr) del GenBank utilizando BLASTx y BLASTn (Vučurović et al., 2021).
Figura 1:Síntomas asociados a virosis en cladodios de nopal verdura. (A-D) Muestras de nopal colectadas en la Ciudad de México, Alcaldía Milpa Alta, (E) Muestra de nopal colectado en el estado de México, Municipio de Otumba, (F) Muestra de nopal sana del Estado de México.
Para la reconstrucción de los genomas, se utilizó Bowtie2 (Langmead y Salzberg, 2012), Samstools (Li et al., 2009) e Integrative Genomic Viewer (IGV) versión 2.3 (Thorvaldsdóttir et al., 2013). Las características del ensamble de los genomas obtenidos se obtuvieron en Qualimap (Okonechnikov et al., 2016), donde se calculó la cobertura promedio por nucleótido de cada genoma. Finalmente, los genomas obtenidos se anotaron con ORFinder del Centro Nacional para la Información Biotecnológica (por sus siglas en inglés, NCBI) y se depositaron en el GenBank.
Análisis filogenético. Los genomas obtenidos se alinearon con especies representativas del género Tobamovirus obtenidas en la base de datos del NCBI. Se utilizó el modelo GTR+F+R5 de sustituciones de nucleótidos. Por otro lado, se elaboró un árbol filogenético alineando secuencias de genomas completos de miembros representativos del género Carlavirus (familia: Betaflexiviridae), obtenidos del NCBI, así como un aislamiento del virus obtenido en este estudio. El modelo evolutivo estimado fue GTR+F+R5. Para el caso de nuevos virus, se construyeron dos árboles filogenéticos alineando secuencias de aminoácidos de la replicasa viral y de la cápside proteica pertenecientes a diferentes especies de la familia correspondiente obtenidas del ICTV (Kreuze et al., 2020) y la secuencia obtenida en este estudio. El modelo evolutivo para la replicasa viral fue LG+F+R7 y para la cápside proteica LG+F+R5. Para el análisis filogenético del nuevo viroide, se utilizaron secuencias de especies representativas de ambas familias de estos patógenos obtenidas del NCBI y el modelo evolutivo utilizado fue HKY+F+G4.
En todos los casos, los árboles se generaron con el método de Máxima Verosimilitud utilizando IQTREE 2 (Minh et al., 2020), el alineamiento múltiple de secuencias en MAFFT (Katoh et al., 2019), y el modelo evolutivo según el Criterio de Información Bayesiano implementado en ModelFinder (Kalyaanamoorthy et al., 2017). El soporte nodal se estimó con el bootstrap ultrarrápido (UFBoot) ejecutando un total de 1000 réplicas. Finalmente, la visualización y edición de los árboles se realizó en iTOL (Letunic y Bork, 2021).
Análisis de identidad por pares. Para reforzar la clasificación de las nuevas especies, se estimó la identidad por pares con SDT v1.2 (Muhire et al., 2014) comparando la replicasa y cápside proteica de los virus más cercanos, así como de diferentes genomas de la familia Pospiviroidae para el caso del viroide.
Predicción de estructura secundaria del nuevo viroide. Se obtuvo utilizando el servidor web UNAFold (www.mfold.org consultada el 18 de noviembre de 2022) (Zuker, 2003).
Validación de la detección de los nuevos virus y viroide. Parte del ARN extraído de los cladodios con síntomas que se envió a HTS, se sometió a RT-PCR para confirmar la presencia del viroide y virus encontrados. Se diseñaron diferentes iniciadores (Cuadro 1) a partir de las secuencias obtenidas. Adicionalmente, se realizaron análisis de RT-PCR para la detección de uno de los virus en cuatro muestras independientes recolectadas en la Ciudad de México (n=1, asintomática), Estado de México (n=2), Hidalgo (n=2) y Morelos (n=2).
En todos los casos, la síntesis de cADN se realizó con la enzima M-MLV Reverse Transcriptase (200 U μL -1) (Promega, USA) a partir de 1 μL de ARN total y 1 μL (10 mΜ) del iniciador antisentido, siguiendo las instrucciones del fabricante. El cADN obtenido se utilizó como cadena molde para la PCR cuya mezcla consistió en 2 μL de amortiguador de reacción (5X Green GoTaq®), 0.6 μL de MgCl2 (25 mM), 0.2 μL de dNTPs Mix (10 mM), 0.6 μL (10 μM) de cada iniciador, (sentido y antisentido) 4.9 μL de agua ultrapura, 0.1 μL de GoTaq® DNA Polymerase (5 U μL -1) (Promega, USA) y 1 μL de cDNA en un volumen final de 10 μL. Las
Nombre del iniciador
Virus/Viroide (Región)
Secuencia (5'->3')
Amplicón (pb)
Temperatura de alineamiento (°C)
OV2-F
Opuntia virus 2 (Proteína de movimiento)
CGG GTC CTT TTC CTT TTG TCT GTC
667
55
OV2-R
GAGAGCGAGTAGAAACTCCAACG
CCV1-F
Cactus carlavirus 1 (Replicasa viral)
GAAGCGCATGGGCTGTATTG
459
55
CCV1-R
GTCTGCGCAGCTTTAGCATC
Opuntia_Potex-F(RdRp)
Opuntia potexvirus A (Replicasa viral)
ACCCACTAGCCATTGAAGCC
580
55
Opuntia_Potex-R(RdRp)
AGGTGGTTGGCACCTTTTGA
Caulimovirus_F
Caulimovirus (Retro transcriptasa)
TCCTCACACTAGTCCTGCCT
846
55
Caulimovirus_R
TTGAGGACGGCACTCCAATG
Alphavirus-F(RdRp)
Alphavirus (Cápside)
CACTGGCGTGTTTTAGCCAC
579
55
Alphavirus-R(RdRp)
TCAGCCTCCAGCCACAAAAT
Tymovirus-F
Timovirus (Proteína del triple bloque de genes)
CTGGAGCGCCTTGGAACTAA
745
55
Tymovirus-R
TTTGCCAACCCTCACCATGA
Vityvirus-F
Vityvirus (Proteína de movimiento)
GAACTGCTTGATATGCGCCG
229
55
Vityvirus-R
CCTGACGGACCACACTCATC
Banmivirus_Opun-F
Banmivirus (Replicasa viral)
CAGAGCGCCAATTAACCTGC
707
55
Banmivirus_Opun-R
CGCTCTTGAAGGTTAGCCCA
OPV-I-1F
Opuntia viroid I (Parte del genoma)
TTGACCTAGGTTGGCTCTCG
362
55
OPV-I-1R
GCAGGAGAAGGCCAGGAAG
OPV-I-2F
Opuntia viroid I (Parte del genoma)
GGGATCAACCTTGTGGTTCCT
351
55
OPV-I-2R
GAAAGAAAAGCACCTGTGGGC
Cuadro 1:Iniciadores utilizados en los ensayos de RT-PCR para la validación de los virus/viroide detectados en los datos de HTS de las dos bibliotecas de nopal.
Detección de CCV-1. Se analizaron mediante RT-PCR 129 muestras provenientes de cladodios recolectados del Estado de México, Hidalgo, Morelos y Ciudad de México para la detección de CCV-1 con los oligonucleótidos CCV1-F/R con la finalidad de conocer su presencia o ausencia.
Microscopía electrónica de transmisión. Con el propósito de conocer si se encontraban viriones de los virus determinados en los resultados de HTS, plantas de nopal sintomático fueron utilizadas para preparar rejillas de cobre de 300 mallas cubiertas con Formvar para su observación. Para esto, se realizó la técnica “leaf dip” y se utilizó ácido fosfotúngstico 2 % como contrastante. Las rejillas se observaron en un microscopio electrónico de transmisión FEI Tecnai G2 Spirit TWIN, de la Unidad de Microscopía Electrónica del Colegio de Postgraduados.
Resultados
Resultados
Detección de virus por HTS. Se obtuvieron 32,921,232 lecturas en la muestra EM-1 y 48,292,940 lecturas para la muestra CDMX-1. Las lecturas sin procesar se depositaron en el NCBI con el número de bio-proyecto PRJNA922236. El análisis de estas lecturas mostró la presencia de secuencias de diferentes virus y un viroide en nopal ((Cuadro 2), los cuales se describen a continuación:
Muestra
Aislamiento de Virus detectado/Viroide
Número de acceso GenBank
Parte del genoma
Número de acceso de la secuencia de referencia
Porcentaje de similitud de nucleótido
EM-1
CCV-1-Edo-MeX
OQ240442
Completo
KU854930.4
87.71
OV2-Edo-Mex
OQ240440
Completo
NC_040685.2
97.67
CCV-1-CD-MX
OQ240444
Parcial
KU854930.4
97.5
CDMX-1
OV2-CDMX
OQ240441
Completo
NC_040685.2
97.61
Opuntia virus A
OQ240443
Completo
LC654699.2
74.42
Opuntia viroid I
OQ240445
Completo
X95292.1
88.52*
Cuadro 2:Comparación del genoma completo o parcial de los virus encontrados por HTS en las dos bibliotecas de nopal, con la secuencia de referencia más similar del GenBank.
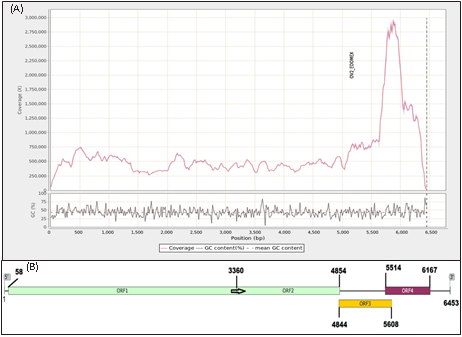
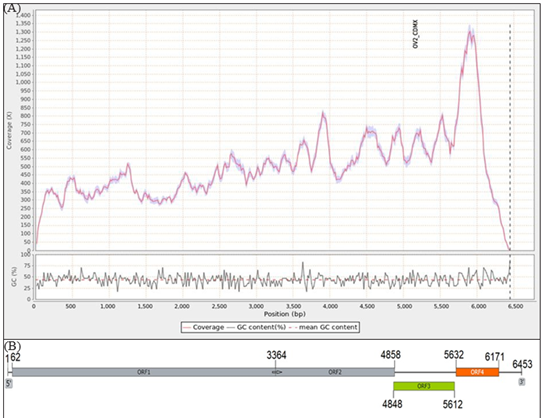
Opuntia virus 2. Se detectó y confirmó su presencia en las dos muestras sometidas a HTS, obteniendo dos genomas completos denominados OV2-Edo-Mex y OV2CDMX; la cobertura promedio por nucleótido fue de 634,104.1X y 500.5X, respectivamente (Figura 2A, 3A). El genoma OV2-Edo-Mex de 6,453 nt tiene la organización típica de los tobamovirus (Figura 2B) con una región no traducible (UTR) 5’ (nt 1-57), un marco de lectura abierto (ORF) que codifica la replicasa viral (RdRp) de 183 kDa (nt 58 -4,854), metiltransferasa/helicasa de 128 kDa (nt 67-3,360), una proteína de movimiento (MP) (nt 4,844-5,608), cubierta proteica (CP) (nt 5,514-6,167) y la UTR 3’ (nt 6,168-6,453). El genoma de OV2-Edo-Mex tiene una identidad de nucleótidos del 97.6 % con el aislamiento NC_040685.2 de OV2 (Cuadro 2).
El genoma del aislamiento OV2-CDMX tuvo una longitud de 6,453 nt, con una organización típica de tobamovirus (Figura 3B) consistente en una región 5’ no traducible (nt 1-61), un ORF que codifica la RdRp de 183 kDa (nt 62-4,858), metiltransferasa/helicasa de 128 kDa (nt 62-3,364), MP (nt 4,848-5,612) y CP (nt 5,632-6,171) así como una UTR 3’ (nt 6,172-6,453). La secuencia del genoma de este aislamiento compartió una identidad de nucleótidos del 97.61% con el aislamiento NC_040685.2 de OV2 (Cuadro 2). El análisis filogenético ubicó a ambos
Figura 2:(A) Cobertura de lecturas a lo largo del genoma del aislamiento OV2-Edo-Mex y porcentaje del contenido de guanina citosina, (B) Mapa genómico del OV2-Edo-Mex. La flecha indica el sitio del codón de terminación de la proteína de 128 kDa completa, con fugas de lectura.
Figura 3:(A) Cobertura de lecturas a lo largo del genoma del aislamiento OV2-CDMX y porcentaje del contenido de guanina citosina (B) Mapa genómico de OV2-CDMX. La flecha indica el sitio del codón de terminación de la proteína de 128 kDa completa, con fugas de lectura.
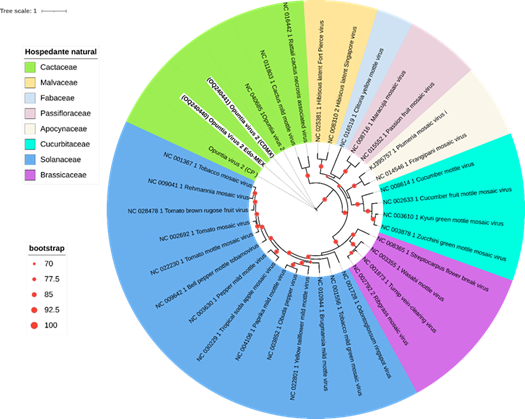
aislamientos de OV2 obtenidos en este estudio, en el subgrupo de tobamovirus que infectan cactáceas (Figura 4).
Figura 4:Árbol filogenético de Máxima Verosimilitud del género que muestra las relaciones entre los genomas obtenidas en este estudio (en negrita) del OV2 y la de aislamientos previamente reportados. Los diferentes colores representan las familias botánicas como hospedantes naturales donde se ha reportado cada virus. Los círculos en las ramas muestran valores de soporte UFBoot > 70%.
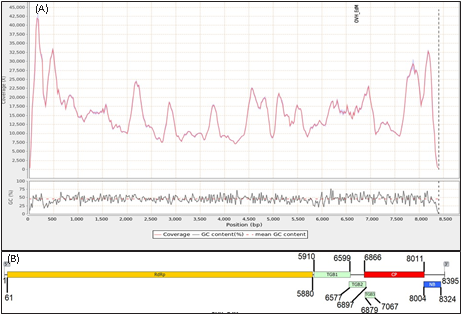
Cactus carlavirus 1 (CCV-1). Este virus se detectó en las dos muestras que se sometieron a HTS. Sin embargo, el genoma completo solo se recuperó en la muestra del Estado de México. El genoma obtenido estuvo soportado por una cobertura promedio por nucleótido de 15,516X (Figura 5A). La organización del genoma de CCV-1 es similar a la de otros carlavirus conocidos, con seis ORFs (Figura 5B): el ORF1 (nt 61-5,880) codifica una poliproteína (220 kDa) involucrada en la replicación viral; ORF2 (TGB1) (nt 5,910-6,599), ORF3 (TGB2) (nt 6,577-6,897) y ORF4 (TGB3) (nt 6,879-7,067) codifican tres proteínas de 26 kDa, 11 kDa y 7 kDa, respectivamente, que son las proteínas del triple bloque de genes (TGB) asociadas al movimiento de célula a célula ‘tipo potex’ (Morozov y Solovyev, 2003); ORF5
Figura 5:(A) Cobertura de lecturas a lo largo del genoma del aislamiento CCV-1-Edo-Mex y porcentaje del contenido de guanina citosina, (B) Organización del genoma de CCV1-EdoMex, que muestra seis marcos de lectura abiertos y sus productos correspondientes. RNAdependiente RNA-polimerasa, (RdRp); cubierta proteica, (CP); proteína de unión al ácido nucleico, (NB); bloque de tres genes, (TGB).
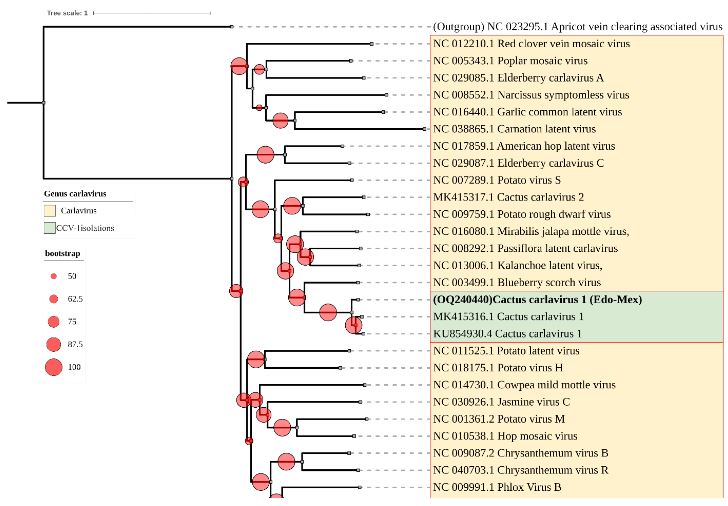
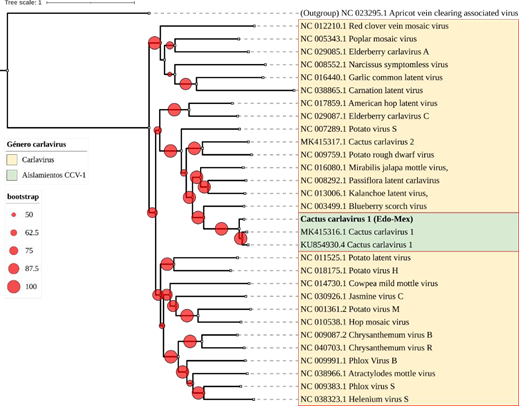
(nt 6,866-8,011) codifica una proteína con un dominio de cubierta proteica (CP) típica de carlavirus y un dominio Flexi_CP; ORF6 (nt 8,004-8,324) codifica una proteína de unión a ácidos nucleicos (NB) de 12 kDa; y por último las regiones UTR 5’ (nt 1-60) y 3’ (8,325-8,395). El análisis filogenético agrupó al CCV-1-EdoMex, junto a los dos únicos genomas que se tienen disponibles en el GenBank de este virus (Figura 6) con un porcentaje de similitud a nivel de nucleótidos del 87.86 y 90.41 %.
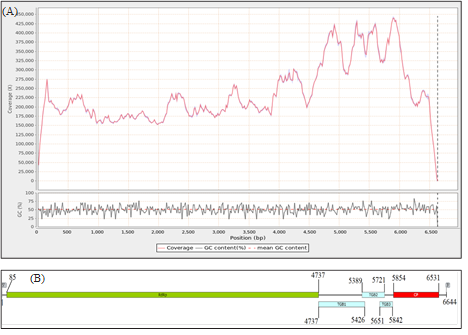
Opuntia potexvirus A (OPV-A). En la muestra compuesta de la Ciudad de México se detectó un contig de 6,671 nt, que en la búsqueda BLASTx tuvo 77.5 % de identidad con Schlumbergera virus X (SchVX). La inspección adicional de la transcripción del genoma viral y la curación mediante el mapeo interactivo de las lecturas filtradas dio como resultado una secuencia viral consolidada de 6,644 nt respaldada por 10,536,601 lecturas con una cobertura promedio por nucleótido de 238,206.9X (Figura 7A). El genoma se encuentra organizado en cinco ORFs (Figura 7B). Al igual que otros potexvirus, el ORF1 (nt 85-4737) codifica la replicasa viral
Figura 6:Árbol filogenético de Máxima Verosimilitud de genomas completos de secuencias de nucleótidos de CCV-1 de este estudio (en negrita), así como otros aislamientos, y diferentes especies del género . Como grupo externo se utilizó al , género Los círculos en las ramas muestran valores de soporte UFBoot > 50%.
que consta de 1,550 aminoácidos (aa). Asimismo, posee un conjunto de tres ORFs parcialmente superpuestos: ORF2 (4,737-5,426 nt), ORF3 (5,389-5,721 nt) y ORF4 (5,651-5,842 nt), que muestran la configuración típica del bloque de tres genes (TGB) de los potexvirus. El ORF5 (5,854-6,531 nt) codifica la proteína de la cápside (CP). Finalmente, se detectaron las regiones UTR de 84 y 113 nt en los extremos 5’ y 3’, respectivamente.
Los motivos conservados de aa QDGAML, HQQAKDE y TFDANTE se identificaron en la región C-terminal de la replicasa viral (Van der Vlugt y Berendsen 2002). Por otra parte, un dominio replicasa catalítico, que contiene el motivo central de consenso característico TGX3TX3NTX22GDD encontrado en potexvirus (Martelli et al., 2007), estaba presente cerca del extremo C de la replicasa. También, se encontró el motivo hexanucleótido 5’-GGAAAA-3’, en el extremo 5’-
Figura 7:(A) Cobertura de lecturas a lo largo del genoma de (OPV-A) y porcentaje de guanina/citosina, (B) Organización del genoma de OPV-A, que muestra cinco marcos de lectura abiertos y sus productos correspondientes: RdRp, replicasa viral; TGB, bloque de tres genes. CP, cubierta proteica.
UTR, el cual se tiene presente en algunos potexvirus (Chen et al., 2005), al igual que una putativa señal de poliadenilación en el extremo 3’-UTR.
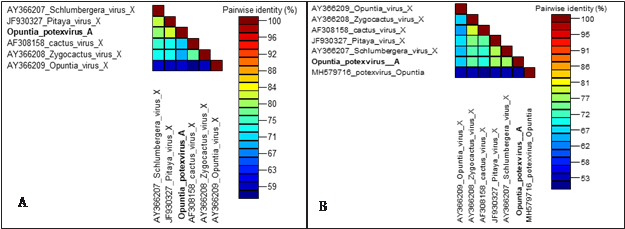
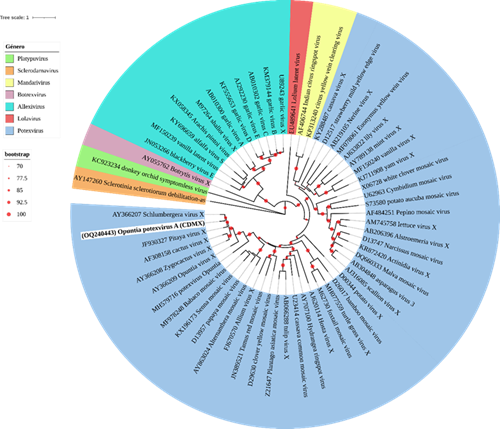
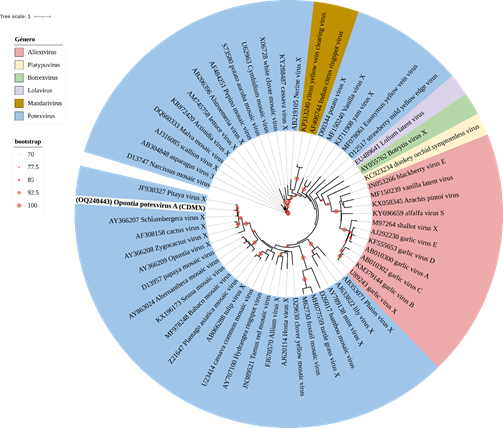
La comparación por pares reveló identidades a nivel de aminoácidos que oscilaron del 59.8 al 82.2 % para la CP, y del 53.6 al 77.7 % para la replicasa viral (Figura 8a, b). El criterio de demarcación de especies para potexvirus, establece que especies distintas tienen <72 % nt o <80 % aa de identidad para los genes de la replicasa o cubierta proteica, respectivamente (Adams et al., 2004). Por lo anterior, el virus detectado en nopal se considera una nueva especie del género Potexvirus para el cual se propone el nombre de “Opuntia potexvirus A” (OPV-A). La secuencia del genoma de OPV-A se depositó en el GenBank con el número de acceso OQ240443. Los árboles filogenéticos basados en secuencias de aminoácidos de la replicasa viral y cubierta proteica de los virus pertenecientes a la familia Alfaflexiviridae muestran que OPV-A se agrupa con los potexvirus: Pitaya virus X (PiVX), Zygocactus virus X (ZyVX), Cactus virus X (CVX), SchVX y Opuntia virus X (OpVX), en un clado altamente respaldado (Figura 9 y 10).
Figura 8:Matriz de identidad del porcentaje de aminoácidos de la cápside proteica (A) y la replicasa viral, (B) de las especies del género más cercanas al Opuntia potexvirus A (en negrita).
Figura 9:Árbol filogenético de Máxima Verosimilitud de la familia basado en las secuencias de aminoácidos de la replicasa viral; la secuencia del Opuntia virus A se encuentra en negrita. Los colores del árbol representan los diferentes géneros de esta familia. Los círculos en las ramas muestran valores de soporte UFBoot >70%.
Figura 10:Árbol filogenético de Máxima Verosimilitud de la familia Alphaflexiviridae basado en las secuencias de aminoácidos de la cápside proteica; la secuencia de Opuntia virus A se encuentra en negrita. Los colores del árbol representan los diferentes géneros de esta familia. Los círculos en las ramas muestran valores de soporte UFBoot > 70 %.
Opuntia viroid I. En la muestra CDMX-1 se encontró un contig similar al de los viroides de la familia Pospiviroidae, al cual se denominó “Opuntia viroid I” (OVd-I). Los resultados del análisis BLASTn mostraron una similitud con Columnea latent viroid-B, con 14 % de cobertura de consulta y un E value = 4e-08. Para determinar el género al que pertenece el OVd-I, se realizó la inspección manual y curado de la secuencia. Se obtuvo un contig final de 412 pb con el cual se realizó un mapeo en los datos de HTS corroborando su presencia, con una cobertura promedio por nucleótido de 1,492X. La confirmación de OVd-I se realizó por RT-PCR y secuenciación Sanger.
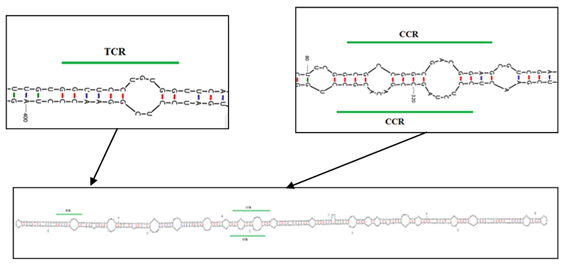
La predicción de la estructura secundaria del OVd-I, mostró una molécula en forma de bastón con una región central conservada (CCR) (Figura 11), criterio principal para clasificar a un viroide como nuevo miembro de la familia Pospiviroidae. La presencia de la CCR y de una región conservada terminal (TCR) se tomaron en
Figura 11:Estructura secundaria predicha utilizando el servidor web UNAFold (Herramienta UNAFold disponible online: www.mfold.org) para OVd-I. Se resaltan los sitios que forman la región conservada terminal (TCR) en las posiciones 16 a 26 y la región conservada central (CCR) en las posiciones 84 a 100 y 313 a 329.
cuenta para ubicar al OVd-I dentro del género Apscaviroid (Di Serio et al., 2014). En la TCR no se detectaron cambios; sin embargo, en la CCR superior se detectaron cinco cambios (T/G,T/C,T/G,A/G,G/C) y en la CCR inferior se detectaron seis cambios (G/T,T/C,G/C,C/A,G/C,A/C) debidos probablemente a la divergencia del OVd-I con el género Apscaviroid.
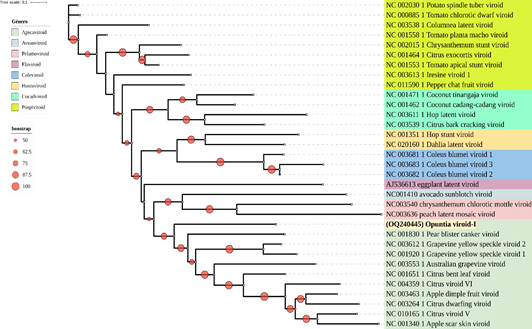
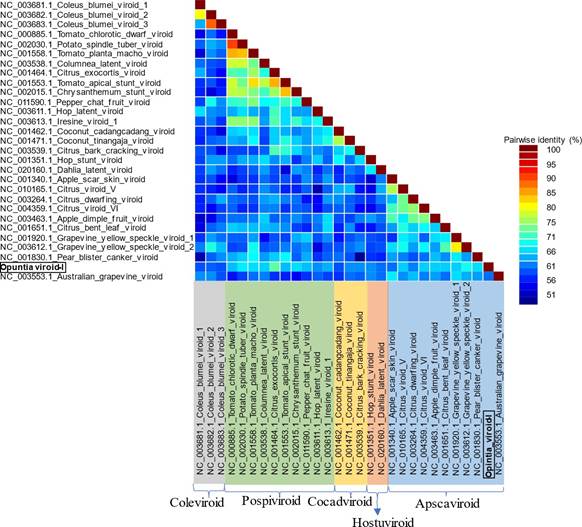
Los resultados del análisis filogenético de Máxima Verosimilitud (Figura 12) ubicaron al OVd-I en el clado del género Apscaviroid de la familia Pospiviroidae. El análisis SDT, basado en comparaciones por pares, muestra que ninguna de las secuencias de viroides analizadas presenta más del 80 % de similitud con el genoma de OVd-I (Figura 13). Finalmente, OVd-I se detectó en las cuatro muestras independientes de la Ciudad de México y en una muestra de Morelos.
Otros virus detectados. Adicionalmente, en la muestra CDMX-1 se detectaron contigs virales adicionales (Cuadro 3). Sin embargo, solo se confirmó un caulimovirus y un vityvirus por RT-PCR. Por lo tanto, es necesario continuar con trabajos adicionales que permitan recuperar los genomas completos de estas potenciales nuevas especies de virus.
Detección de CCV-1. Se detectó en las cuatro entidades en estudio en el 72 % de muestras analizadas (Cuadro 4); se trata del primer reporte de la presencia de CCV1 en plantaciones comerciales de nopal verdura en México.
Figura 12:Árbol filogenético de Máxima Verosimilitud de la familia basado en secuencias de nucleótidos de genomas completos de las especies representativas de los diferentes géneros. La secuencia obtenida del OVd-I se encuentra en negrita. Los diferentes colores representan los géneros de viroides. Los círculos en las ramas muestran valores de soporte UFBoot > 50 %.
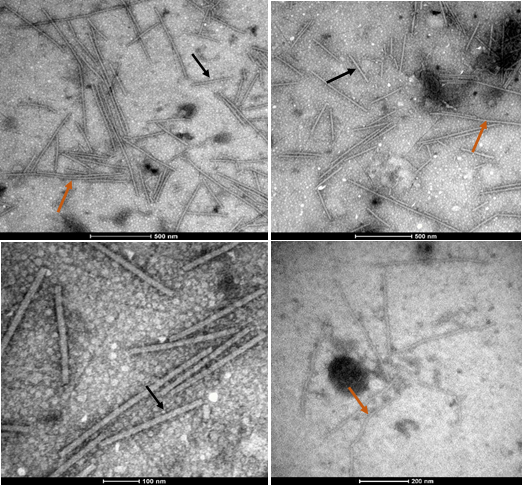
Microscopía electrónica. En las muestras analizadas se observaron viriones de diferentes tamaños y formas (Figura 14). Se observaron partículas en forma de varilla rígida de aproximadamente 300 nm de longitud y 18 nm de diámetro, típicas de tobamovirus. Asimismo, se encontraron viriones en forma de varilla flexible, con una longitud promedio de 700 nm y 15 nm de diámetro, las cuales podrían pertenecer al CCV-1. También se observaron partículas virales flexibles de aproximadamente 500 nm de longitud.
Discusión
Discusión
En los últimos años, la secuenciación de alto rendimiento (HTS) ha permitido el descubrimiento de nuevas especies virales (Maliogka et al., 2018; Villamor et at., 2019), y con ello también se ha evidenciado la complejidad de los viromas (Al Rwahnih et al., 2011; Vučurović et al., 2021).
En México se han realizado investigaciones para conocer los virus asociados al nopal con síntomas putativos a virosis. Sin embargo, con el uso de técnicas
Figura 13:Distribución de frecuencia de identidades por pares obtenida con la herramienta de demarcación de secuencias SDT () a partir de secuencias de genomas completos de especies de la familia para respaldar la demarcación del , como una nueva especie.
especies para este género (Jan et al., 2020). Los potexvirus tienen partículas elongadas de aproximadamente 700 nm de longitud, infectan hospedantes herbáceos, no tienen vectores conocidos y se trasmiten principalmente de manera mecánica (Jan et al., 2020). Filogenéticamente el OPV-A se encuentra estrechamente relacionado con PiVX y SchVX que infectan naturalmente cactáceas (Figura 9 y 10).
Recientemente, en cactáceas ornamentales se reportaron los potexvirus CVX, OpVX, PiVX, SchVX y ZyVX, en infección única o mixta, de hasta cuatro de ellos (CVX, PiVX, SchVX y ZyVX) en una planta (Park et al., 2021). Adicionalmente
Virus
Longitud del contig
Número de acceso de la secuencia de referencia
Porcentaje de identidad (cobertura de consulta)
Parte del genoma
Confirmación por RT-PCR
Confirmación por secuenciación Sanger
Caulimovirus
3168
QYR69113.1
47.14 (51)
Putativa replicasa viral
+
+
Vityvirus
1242
AVL25840.1
52.21 (64)
Proteína de movimiento
+
+
Alphavirus
2932
QYD13417.1
75 (27)
Cápside proteica
-
-
Bammivirus
2110
UUL90866.1
39.75 (99)
Replicasa viral
-
-
Betaflexiviridae (Tymovirales)
1096
AZM69108.1
36.36 (52)
Proteína 1 del bloque de tres genes
-
-
Cuadro 3:Resultado del análisis Blastx de virus potencialmente presentes en la biblioteca CDMX-1 y confirmación por RT-PCR y secuenciación.
Estado
Muestras analizadas
Muestras positivas a CCV-1 (%)
Estado de México
24
22 (91)
Morelos
26
16 (64)
Hidalgo
24
10 (41)
CDMX
55
45 (81)
Total
129
93 (72)
Cuadro 4:Detección de CCV-1 en cuatro estados productores de nopal verdura en México.
convencionales como RT-PCR, ELISA, microscopía electrónica de transmisión e indexado biológico, en varias investigaciones no fue posible determinar al (los) virus asociado(s), debido a las características y limitaciones que presentan estas técnicas (De La Torre-Almaraz et al., 2007; De La Torre-Almaraz et al., 2016a; De La Torre-Almaráz et al., 2016b; Alonso-Barrera et al., 2015). Con el uso de HTS es posible determinar la presencia de todos los virus (conocidos o desconocidos) en una muestra, característica que otras técnicas no poseen. Así, por ejemplo, con esta técnica se logró la detección de un nuevo tobamovirus (OV2) en una muestra compuesta de ARN extraído de O. ficus-indica y O. albicarpa recolectadas en el Estado de México (Salgado-Ortíz et al., 2020).
En este estudio se conoce por primera vez el viroma del nopal verdura cultivado en la zona centro de México, constituido por tres virus (dos nuevos, del género Potexvirus y Carlavirus) y un viroide (género Apscaviroid).
Opuntia potexvirus A (OPV-A) se propone como un nuevo miembro de la familia Alphaflexiviridae, género Potexvirus, con base en los criterios de demarcación de
Figura 14:Partículas virales en forma de varilla rígida (®) y flexible (®) de diferentes longitudes observadas por microscopía electrónica de transmisión en plantas de nopal con patrones amarillos irregulares, anillos amarillos, mosaico y manchas cloróticas alrededor de las espinas, utilizando la técnica “leaf dip”.
se informó que la cactácea Notocactus leninghausii f. cristatus, puede estar coinfectada hasta con seis virus, cuatro potexvirus (CVX, PiVX, SchVX y ZyVX) y dos tobamovirus (CMMoV y RCNaV) (Park et al., 2018). Estos reportes muestran que las cactáceas son hospedantes naturales de los potexvirus y tobamovirus. Sin embargo, los síntomas que causan de manera individual aún no se han descrito claramente ni se conoce su gama de hospedantes. Por lo anterior, en estudios posteriores tendrá que abordarse la caracterización biológica del potexvirus detectado en este estudio, para determinar, entre otras cosas, si representa un riesgo para la producción de nopal en México.
En el análisis de HTS, el CCV-1 se detectó en las muestras de la Ciudad de México y del Estado de México. Sin embargo, el genoma completo solo se recuperó en los cladodios recolectados en este último. La detección del genoma parcial en la muestra de la Ciudad de México, probablemente se deba a que el OPV-A y el OV2 suprimieron la replicación del CCV-1, por lo tanto, el número de secuencias obtenidas para este virus no cubrió la totalidad del genoma. El CCV-1 aislado del Estado de México, se agrupó en el mismo clado del aislamiento MK415316.1 reportado en Estados Unidos y una secuencia de México (KU854930.4) pero en una rama distinta. Este virus se detectó en las cuatro entidades muestreadas (Cuadro 4) tanto en plantas con síntomas de virosis como en plantas asintomáticas, en este último caso solamente en los estados de Hidalgo, Morelos y Ciudad de México. Se sabe que los carlavirus se transmiten por pulgones de forma no persistente, o por moscas blancas, infectan predominantemente plantas herbáceas y muchos de ellos causan infecciones latentes o asintomáticas, lo cual explicaría su detección en plantas de nopal que no presentaban alteraciones visibles (Kreuze et al., 2012). Los virus CCV-1 y cactus carlavirus 2 (CC-2), se detectaron por primera vez en una planta asintomática del híbrido ‘Professor Ebert’ de Epiphyllum spp. (Peng et al., 2019). Por lo tanto, en posteriores estudios, será necesario investigar el comportamiento biológico de ambos virus para determinar si bajo ciertas condiciones ambientales inducen algún síntoma en nopal y otras plantas de importancia económica. Asimismo, tendría que determinarse si constituyen un riesgo para la producción de nopal o algún otro cultivo.
El OV2 se reportó por primera vez en México en diferentes especies de cactáceas cultivadas. (O. ficus-indica y O. albicarpa) y no cultivadas (O. pilifera, O. depressa, O. tomentosa, O. robusta y O. streptacantha) del Estado de México, Puebla y Ciudad de México (Salgado-Ortíz et al., 2020). El género Tobamovirus se divide en siete grupos, de acuerdo con su hospedante natural, que incluye a las familias Solanaceae, Brassicaceae, Cucurbitaceae, Malvaceae, Cactaceae, Passifloraceae, Apocynaceae y Leguminosae (Li et al., 2017; Song et al., 2006). El análisis filogenético fue consistente con esta división, agrupando al OV2 en el clado de tobamovirus que infectan cactáceas (Figura 4). Otro tobamovirus reportado en México que infecta nopal es el Rattail cactus necrosis-associated virus (RCNaV). Este virus se reportó en la zona de Axapusco, Otumba, y San Martín de las Pirámides, Estado de México en plantas de nopal que mostraban anillos amarillos pequeños, (De La Torre-Almaráz et al., 2016a). Sin embargo, en este estudio no se detectó al RCNaV en ninguna de las muestras analizadas por HTS.
En la presente investigación se informa por primera vez a nivel mundial, la presencia de un viroide en nopal (OVd-I). Sin embargo, debido a que éste se encontró en muestras con infecciones mixtas con OV2, CCV-1 y OPV-A, se desconoce si provoca o no síntomas de manera individual.
Hasta ahora en México no existe una normatividad que regule el movimiento de material propagativo de nopal, por lo que existe el riesgo de la introducción de los virus y viroide encontrados en esta investigación a nuevas zonas productoras de esta especie.
Conclusiones
Conclusiones
El viroma del nopal verdura en cuatro zonas productoras del centro de México estuvo conformado por Opuntia virus 2 (género Tobamovirus), Cactus carlavirus 1 (Género Carlavirus), un nuevo virus cuyo nombre propuesto es Opuntia potexvirus A (Género Potexvirus) y un nuevo viroide que se propone nombrar Opuntia viroid I (Género Apscaviroid). Cactus carlavirus 1 se encontró en los cuatro estados productores de nopal muestreados
Referencias
Adams, M.J., Antoniw, J.F., Bar-Joseph, M., Brunt, A.A., Candresse, T., Foster, G., Martelli, G.P., Milne, R.G. y Fauquet, C.M. (2004). Virology Division News: The new plant virus family Flexiviridae and assessment of molecular criteria for species demarcation. Archives of Virology, 149, 1045-1060. https://doi.org/10.1007/s00705-004-0304-0
Al Rwahnih, M., Daubert, S., Úrbez-Torres, J.R., Cordero, F. y Rowhani, A. (2011). Deep sequencing evidence from single grapevine plants reveals a virome dominated by mycoviruses. Archives of Virology, 156, 397-403. https://doi.org/10.1007/s00705-010-0869-8
Alonso-Barrera, B., Mora-Aguilera, G., Valdovinos-Ponce, G., Ochoa-Martínez, D.L., Rodríguez-Leyva, E., Tlapal-Bolaños, B. y De La Torre-Almaraz, R. (2015). Asociación de un Potexvirus como agente causal de manchas cloróticas en Opuntia ficus-indica. Mexican Journal of Phytopathology, 33(\1\), 75-86. http://www.scielo.org.mx/scielo.php?script=sci_arttext&pid=S018533092015000100075&lng=es&tlng=es
Andrews, S. (2010). FastQC: A Quality Control Tool for High Throughput Sequence Data [Online] . Available online at: http://www.bioinformatics.babraham.ac.uk/projects/fastqc
Barbera, G.F., Carimi, P., Inglese, M. y Panno, M. (1992). Physical, morphological and chemical changes during fruit development and ripening in three cultivars of prickly-pear (Opuntia ficus-indica (L.) Miller). Journal of Horticultural Science, 67, 307-312. https://doi.org/10.1080/00221589.1992.11516253
Bravo, H. (1978). Las Cactáceas de México. 2nd ed., Vol. I. México: Universidad Nacional Autónoma de México. 743.
Chen, J., Shi, Y.H., Adams, M.J. y Chen, J.P. (2005). The complete sequence of the genomic RNA of an isolate of Lily virus X (genus Potexvirus). Archives of Virology, 150, 825-832. https://doi.org/10.1007/s00705-004-0441-5
Chen, S., Zhou, Y., Chen, Y. y Gu, J. (2018). fastp: an ultra-fast all-in-one FASTQ preprocessor. Bioinformatics, 34(\17\), i884-i890. https://doi.org/10.1093/bioinformatics/bty560
De La Torre-Almaraz, R., Salazar-Segura, M. y Ruiz-Medrano, R. (2007). Ocurrencia de un tobamovirus asociado con manchas anulares amarillas en nopal tunero en México. Agrociencia, 41, 763-773. https://www.scielo.org.mx/pdf/agro/v41n7/1405-3195-agro-41-07-763.pdf
De La Torre-Almaraz, R., Salgado-Ortíz, H., Salazar-Segura, M., Pallás, V., Sánchez-Navarro, J.A. y Valverde, R.A. (2016). First report of Schlumbergera virus X in prickly pear (Opuntia ficus-indica). Plant Disease, 100, 1799. https://doi.org/10.1094/pdis-11-15-1326-pdn
De La Torre-Almaraz, R., Salgado-Ortíz, H., Salazar-Segura, M., Pallás, V., Sánchez-Navarro, J.A. y Valverde, R.A. (2016). First Report of Rattail cactus necrosis-associated virus in Prickly Pear Fruit (Opuntia albicarpa Scheinvar) in Mexico. Plant Disease, 100, 11. https://doi.org/10.1094/pdis-04-16-0554-pdn
Di Serio, F., Flores, R., Verhoeven, J.T.J., Li, S.F., Pallás, V., Randles, J.W., Sano, T., Vidalakis, G. y Owens, R.A. (2014). Current status of viroid taxonomy. Archives of Virology, 159, 3467-3478. https://doi.org/10.1007/s00705-014-2200-6
Fontenele, R.S., Salywon, A.M., Majure, L.C., Cobb, N., Bhaskara, A., Avalos-Calleros, J.A., Argüello-Astorga, G.R., Schmidlin, K. y Khalifeh, A. (2020). A Novel Divergent Geminivirus Identified in Asymptomatic New World Cactaceae Plants. Viruses, 12, 398. https://doi.org/10.3390/v12040398
Fontenele, R.S., Salywon, A.M., Majure, L.C., Cobb, N., Bhaskara, A., Avalos-Calleros, J.A., Argüello-Astorga, G.R., Schmidlin, K. y Khalifeh, A. (2021). New World Cactaceae Plants Harbor Diverse Geminiviruses. Viruses, 13(\4\), 694. https://doi.org/10.3390/v13040694
Griffith, M.P. (2004). The origins of an important cactus crop, Opuntia ficus-indica (Cactaceae): new molecular evidence. American Journal of Botany, 91, 1915-1921. https://doi.org/10.3732/ajb.91.11.1915
Jan, F.K., Vaira, A.M., Menzel, W., Candresse, T., Zavriev, S.K., Hammond, J., Ryu, K.H. y ICTV Report Consortium (2020). ICTV Virus Taxonomy Profile: Alphaflexiviridae. Journal of General Virology, 101, 699-700. https://doi.org/10.1099/jgv.0.001436
Kalyaanamoorthy, S., Minh, B.Q., Wong, T.K.F., Haeseler, A.V. y Jermiin, L.S. (2017). ModelFinder: Fast model selection for accurate phylogenetic estimates. Nature Methods, 14, 587-589. https://doi.org/10.1038/nmeth.4285
Katoh, K., Rozewicki, J. y Yamada, K.D. (2019). MAFFT online service: multiple sequence alignment, interactive sequence choice and visualization. Brief in Bioinformatics, 20, 1160-1166. https://doi.org/10.1093/bib/bbx108
Kreuze, J.F., Vaira, A.M., Menzel, W., Candresse, T., Zavriev, S.K., Hammond, J., Ryu, K.H. y ICTV Report Consortium (2020). ICTV Virus Taxonomy Profile: Alphaflexiviridae. Journal of General Virology, 101, 699-700. https://doi.org/10.1099/jgv.0.001436
Lan, P., Tian, T., Pu, L., Rao, W., Li, F. y Li, R. (2019). Characterization and detection of a new badnavirus infecting Epiphyllum spp. Archives of Virology, 164, 1837-1841. https://doi.org/10.1007/s00705-019-04237-6
Langmead, B. y Salzberg, S.L. (2012). Fast gapped-read alignment with Bowtie 2. Nature Methods, 9(\4\), 357-359. https://doi.org/10.1038/nmeth.1923
Letunic, I. y Bork, P. (2021). Interactive Tree Of Life (iTOL) v5: an online tool for phylogenetic tree display and annotation. Nucleic Acids Research, 49, W293-W296. https://doi.org/10.1093/nar/gkab301
Li, H., Handsaker, B., Wysoker, A., Fennell, T., Ruan, J., Homer, N., Marth, G., Abecasis, G. y Durbin, R. (2009). The Sequence Alignment/Map format and SAMtools. Bioinformatics (Oxford, England), 25(\16\), 2078-2079. https://doi.org/10.1093/bioinformatics/btp352
Li, Y., Wang, Y., Hu, J., Xiao, L., Tan, G., Lan, P., Liu, Y. y Li, F. (2017). The complete genome sequence, occurrence and host range of tomato mottle mosaic virus Chinese isolate. Virology Journal, 14, 1-9. https://doi.org/10.1186/s12985-016-0676-2
Maliogka, V., Minafra, A., Saldarelli, P., Ruiz-García, A., Glasa, M., Katis, N. y Olmos, A. (2018). Recent Advances on Detection and Characterization of Fruit Tree Viruses Using High-Throughput Sequencing Technologies. Viruses, 10, 436. https://doi.org/10.3390/v10080436
Martelli, G.P., Adams, M.J., Kreuze, J.F. y Dolja, V.V. (2007). Family Flexiviridae: A Case Study in Virion and Genome Plasticity. Annual Review of Phytopathology, 45, 73-100. https://doi.org/10.1146/annurev.phyto.45.062806.094401
Minh, B.Q., Schmidt, H.A., Chernomor, O., Schrempf, D., Woodhams, M.D., Haeseler, A.V.R. y Lanfear, . (2020). IQ-TREE 2: New models and efficient methods for phylogenetic inference in the genomic era. Molecular Biology and Evolution, 37, 1530-1534. https://doi.org/10.1093/molbev/msaa015
Muhire, B.M., Varsani, A. y Martin, D.P. (2014). SDT: A virus classification tool based on pairwise sequence alignment and identity calculation. PLoS One, 9(\9\), e108277. https://doi.org/10.1371/journal.pone.0108277
Okonechnikov, K., Conesa, A. y García-Alcalde, F. (2016). Qualimap 2: advanced multisample quality control for high-throughput sequencing data. Bioinformatics (Oxford, England), 32(\2\), 292-294. https://doi.org/10.1093/bioinformatics/btv566
Park, C.H., Song, E.G. y Ryu, K.H. (2018). Detection of co-infection of Notocactus leninghausii f. cristatus with six virus species in South Korea. The Plant Pathology Journal, 34, 65-70. https://doi.org/10.5423/PPJ.NT.08.2017.0187
Park, C.H., Song, E.G. y Ryu, K.H. (2021). A multiplex PCR assay for the simultaneous detection of five potexviruses infecting cactus plants using dual-priming oligonucleotides (DPOs) primers. Journal of Virological Methods, 298, 114280. https://doi.org/10.1016/j.jviromet.2021.114280
Peng, L., Wu, L., Grinstead, S.C., Kinard, G.R. y Li, R. (2019). Molecular characterization and detection of two novel carlaviruses infecting cactus. Archives of Virology, 164, 1873-1876. https://doi.org/10.1007/s00705-019-04279-w
Prjibelski, A., Antipov, D., Meleshko, D., Lapidus, A. y Korobeynikov, A. (2020). Using SPAdes de novo assembler. Curr Protoc Bioinformatics, 70( 1 ), e102. https://doi.org/10.1002/cpbi.102
Salgado-Ortíz, H., De La Torre-Almaraz, R., Sánchez-Navarro, J.A. y Pallás, V. (2020). Identification and genomic characterization of a novel tobamovirus from prickly pear cactus. Archives of Virology, 165, 781-784. https://doi.org/10.1007/s00705-020-04528-3
Sastry, K.S., Mandal, B., Hammond, J., Scott, S.W. y Briddon, R.W. (2019). Narcissus spp. (Daffodil). En: Sastry, K.S.y Mandal, B. (Encyclopedia of plant viruses and viroids). New Delhi: Springer. https://doi.org/10.1007/978-81-322-3912-3_608
Song, Y.S., Min, B.E., Hong, J.S., Rhie, M.J., Kim, M.J. y Ryu, K.H. (2006). Molecular evidence supporting the confirmation of Maracuja mosaic virus as a species of the genus Tobamovirus and production of an infectious cDNA transcript. Archives of Virology, 151, 2337-2348. https://doi.org/10.1007/s00705-006-0823-y
Thorvaldsdóttir, H., Robinson, J.T. y Mesirov, J.P. (2013). Integrative Genomics Viewer (IGV): high-performance genomics data visualization and exploration. Briefings in Bioinformatics, 14(\2\), 78-192. https://doi.org/10.1093/bib/bbs017
Van der Vlugt, R.A. y Berendsen, M. (2002). Development of a General Potexvirus Detection Method. European Journal of Plant Pathology, 108, 367-371. https://doi.org/10.1023/A:1015644409484
Villamor, D.E.V., Ho, T., Al Rwahnih, M., Martin, R.R. y Tzanetakis, I.E. (2019). High throughput sequencing for plant virus detection and discovery. Phytopathology, 109, 716-725. https://doi.org/10.1094/PHYTO-07-18-0257-RVW
Vučurović, A., Kutnjak, D., Mehle, N., Stanković, I., Pecman, A., Bulajić, A., Krstić, B. y Ravnikar, M. (2021). Detection of four new tomato viruses in Serbia using post hoc high-throughput sequencing analysis of samples from a large-scale field survey. Plant Disease, 105, 2325-2332. https://doi.org/10.1094/PDIS-09-20-1915-RE
Zheng, L., Cao, M., Wu, L., Liu, H., Chen, M. y Li, R. (2020). First identification and molecular characterization of a novel cavemovirus infecting Epiphyllum spp. Archives of Virology, 165, 2083-2086. https://doi.org/10.1007/s00705-020-04688-0
Zuker, M. (2003). Mfold web server for nucleic acid folding and hybridization prediction. Nucleic Acids Research, 31, 3406-3415. https://doi.org/10.1093/nar/gkg595
Emily E. Heliwell, Peter Lafayete, Felipe Arredondo, Madeleine Duquette, Anna Co, Julio Vega-Arreguín, Stephanie Porter, Eli J. Borrego, Michael V. Kolomiets, Wayne A. Parrot y Brett M. Tyler.