Introducción
El género Orthotospovirus (familia Tospoviridae, orden Bunyavirales) (
El género Orthotospovirus comprende 26 especies aceptadas (
A pesar de la extensa investigación sobre la biología, manejo e interacción de los orthotospovirus con los trips vectores (
A diferencia de la situación en América Central, varios informes han actualizado la presencia de orthotospovirus en las islas del Caribe. Se han registrado brotes del virus de la mancha clorótica del jitomate (Tomato chlorotic spot virus, TCSV), una especie diferente de orthotospovirus descrita originalmente en Brasil (
La obtención de datos de secuencias de orthotospovirus es esencial en todas las regiones geográficas y en diversos hospederos vegetales por tres razones fundamentales: (i) analizar la diversidad viral a nivel global, (ii) identificar aislamientos genéticamente distintos y (iii) contribuir a la comprensión epidemiológica. Esta información resulta crítica para los programas de mejora de cultivos y de resistencia a enfermedades. Por ejemplo, existen aislamientos de TSWV que pueden superar la resistencia conferida por los genes Sw-5 y Tsw en plantas de tomate (Solanum lycopersicum) y pimiento (Capsicum annuum), respectivamente. Conocer los aislamientos presentes en una zona y realizar comparaciones de secuencias para identificar las mutaciones que permiten romper la resistencia son aportes vitales para los programas de mejora genética (
No se detectaron plantas positivas para TSWV en nuestras muestras. Por lo tanto, también realizamos un análisis longitudinal de la detección de TSWV e INSV en Costa Rica basado en informes del diagnóstico clínico del Laboratorio de Patógenos Vegetales Obligatorios y sus Vectores (LaFOV), Centro de Investigación en Biología Celular y Molecular (CIBCM), Universidad de Costa Rica, disponibles desde el año 2000. Este estudio proporciona una actualización fundamental sobre la presencia y variabilidad de los orthotospovirus en Costa Rica, contribuyendo a una comprensión más amplia de estos virus en América Central. Los hallazgos sugieren un cambio en la prevalencia de los virus y destacan la importancia de mantener una vigilancia y una investigación continuas. Los esfuerzos futuros deben centrarse en estudios detallados de vigilancia y genéticos para gestionar de manera más efectiva estos virus vegetales y abordar los desafíos agrícolas.
Materiales y Métodos
Metodología de recolección de muestras. Recopilamos un total de 295 muestras de plantas que representan 20 familias botánicas diferentes (como se detalla en el
| Familia de planta | N° muestras / provinciaz | Total muestras | N° Sitios | IDs muestras | Tejido |
|---|---|---|---|---|---|
| Amaryllidaceae | 2 A, 23 C, 17 SJ | 42 | 13 | T161-T163, T170-T175, T177-T180, T182, T183, T192, T195-T199, T283-T285, T288-T296, T298-T301, T305, T316, T317, T321 | Hoja |
| Anacardiaceae | 1 SJ | 1 | 1 | T335 | Fruto |
| Apocynaceae | 1 A, 5 C | 6 | 3 | T076, T159, T241, T346-T348 | Hoja |
| Asparagaceae | 1 A | 1 | 1 | T329 | Hoja |
| Asteraceae | 0.25 | 6 | 2 | T051, T053, T325-T328 | Hoja |
| Balsaminaceae | 4 A, 3 C | 7 | 2 | T028-T031, T061, T261, T262 | Hoja |
| Caricaceae | 5 P | 5 | 1 | T330-T334 | Fruto |
| Cucurbitaceae | 7 A, 3 C, 1 G, 9 P | 20 | 8 | T035-T037, T046-, T047, T080, T090, T091, T160, T268, T270, T280, T135-T140, T265, T266 | Hoja |
| Fabaceae | 4 A, 2 C, 1 SJ | 7 | 5 | T034, T079, T118, T124, T148, T243, T258 | Hoja |
| Gentianaceae | 3 C | 3 | 1 | T322-T324 | Hoja |
| Iridaceae | 4 C | 4 | 1 | T184-T187 | Hoja |
| Lamiaceae | 3 C | 3 | 1 | T156-T158 | Hoja |
| Liliaceae | 2 C | 2 | 1 | T188-T189 | Hoja |
| Malvaceae | 3 A, 1 G, 1 SJ | 5 | 3 | T066-T068, T081, T350 | Hoja |
| Orchidaceae | 18 A, 27 C | 45 | 2 | T012-T027, T055, T056, T214-T240 | Hoja |
| Oxalidaceae | 2 A | 2 | 1 | T120, T121 | Hoja |
| Plantaginaceae | 2 C | 2 | 1 | T057, T058 | Hoja |
| Rosaceae | 2 A | 2 | 1 | T128, T131 | Hoja |
| Solanaceae | 71 A, 37 C, 11 P, 12 SJ | 131 | T001-T011, T032, T033, T038-T045, T048-T050, T054, T059-T060, T062-T065, T069-T075, T077, T078, T082-T089, T092-T104, T106-T112, T114-T116, T119, T122, T134, T165-T169, T176, T181, T194, T202-T205, T209-T213, T245-T251, T253, T263, T264, T267, T271-T279, T302-T304, T306-T313, T320, T336-T338, T341-T345 | Hoja y/o Fruto | |
| Zingiberaceae | 1 A | 1 | 1 | T339 | Hoja |
Preparación de muestras y detección ELISA. Para la detección de INSV, IYSV, TSWV y el serogrupo GRSV/TCSV, utilizamos reactivos comerciales de ELISA de Agdia, Elkhart, IN, siguiendo las instrucciones del fabricante. El proceso comenzó triturando aproximadamente 0.5 gramos de tejido vegetal en 1 mL de un tampón de extracción general. La composición de este tampón incluyó 136 mM de NaCl, 8 mM de Na2HPO4, 1.5 mM de KH2PO4, 2.7 mM de KCl, 10 mM de Na2SO3, 2 % (v/v) de Tween-20, 2 % (w/v) de Polivinilpirrolidona MW 40,000, 0.2 % (w/v)
de albúmina de huevo de gallina y se ajustó el pH a 7.4. Cada muestra se preparó en tres réplicas y se almacenó a -35 °C hasta su uso en las pruebas de ELISA. Para el procedimiento de ELISA, las muestras se probaron en pozos duplicados. Cada placa incluía dos pozos de controles positivos comerciales certificados (Agdia) y cuatro pozos de controles negativos. La absorbancia se midió a 405 nm después de una hora y se extendió a dos horas específicamente para IYSV, utilizando un lector de microplacas Multiskan FC (Thermo Scientific, China). Una muestra se consideró positiva si su valor promedio de absorbancia era mayor que el doble del promedio de los pozos de control negativo correspondientes, según el criterio establecido por
Análisis longitudinal de la detección de INSV y TSWV en Costa Rica. Los informes del laboratorio de diagnóstico para la detección de INSV y TSWV en Costa Rica, realizados en el Laboratorio de Patógenos Vegetales Obligatorios y sus Vectores (LaFOV), Centro de Investigación en Biología Celular y Molecular (CIBCM), Universidad de Costa Rica, disponibles desde el año 2000, constituyen nuestra principal fuente de datos. Este período de 23.5 años de registros (de 2000 a julio de 2023) proporciona la visión más completa que tenemos sobre la frecuencia de detección de INSV y TSWV en el país. Las muestras enviadas al laboratorio de diagnóstico se dividen en dos categorías: (i) material vegetal asintomático destinado a la exportación, que requiere certificación fitosanitaria y probablemente está libre de virus, y (ii) material vegetal sintomático, generalmente enviado por agricultores y agentes de extensión, que probablemente esté infectado por virus, aunque no exclusivamente por orthotospovirus. Estos registros, que abarcan muestras tanto asintomáticas como sintomáticas de diversas dimensiones de fincas e invernaderos, ofrecen una estimación valiosa de la frecuencia relativa de la ocurrencia de virus en Costa Rica a lo largo de los años.
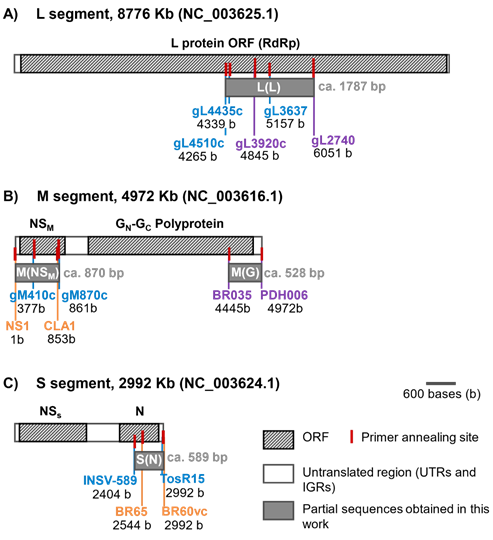
Refinamiento de la detección del virus de la mancha necrótica de Impatiens mediante RT-PCR: Para mejorar la precisión de la identificación de INSV, llevamos a cabo un análisis específico mediante RT-PCR en 20 muestras que resultaron positivas para INSV mediante ELISA. Este análisis detallado incluyó el uso de cebadores tanto de ortotospovirus de amplio espectro como de cebadores específicos diseñados para INSV, según se detalla en
| Cebadores | Secuencia 5’ a 3’ | Tamaño de amplicón (bp) | Perfil térmico | Referencia |
|---|---|---|---|---|
| BR60 BR65 | CCCGGATCCTGCAGAGCAAATGTGTCA ATCAAGCCTTCTGAAAGTCAT | 453 | 95 °C x 1 min; 30 x (94 °C x 30 s, 48 °C x 1 min, 72 °C); 72 °C x 7 min |
|
| BR035 PDH006 | GAATATATGACACCATTG CCCAGAGCAATCAGTGCA | 514 | 95 °C x 1 min; 30 x (94 °C x 30 s, 48 °C x 1 min, 72 °C); 72 °C x 7 min |
|
| NS1 CLA1 | CCCTGCAGGATCCAGAGCAATCAGTGCA GCAGGCTTCAATGAATGC | 865 | 95 °C x 1 min; 30 x (94 °C x 30 s, 48 °C x 1 min, 72 °C x 1 min); 72 °C x 7 min |
|
| gM410 gM870c | AACTGGAAAAATGATTYNYTTGTTGG ATTAGYTTGCAKGCTTCAATNAARGC | 500 | 95 °C x 1 min; 35 x (94 °C x 30 s, 52 °C x 30 s, 72 °C x 30 s); 72 °C x 10 min |
|
| gL2740 gL3920c | ATGGGDATNTTTGATTTCATGRTATGC TCATGCTCATSAGRTAAATYTCTCT | 1200 | 95 °C x 2 min; 30 x (94 °C x 30 s, 50 °C x 30 s, 72 °C x 2 min); 72 °C x 5 min |
|
| gL3637 gL4435c | CCTTTAACAGTDGAAACAT CATDGCRCAAGARTGRTARACAGA | 810 | 95 °C x 2 min; 30 x (94 °C x 30 s, 50 °C x 30 s, 72 °C x 2 min); 72 °C x 5 min |
|
| gL3637 gL4510c | CCTTTAACAGTDGAAACAT TCATCRGARTGBACMATCCATCT | 890 | 95 °C x 2 min; 30 x (94 °C x 30 s, 50 °C x 30 s, 72 °C x 2 min); 72 °C x 5 min |
|
| INSV-589 TOS-R15 | CCCAAGACACAGGATTTCA GGGAGAGCAATYGWGKYR | 589 | 95 °C x 2 min; 35 x (94 °C x 30 s, 54 °C x 30 s, 72 °C x 1 min); 72 °C x 5 min |
|
| 18S-F 18S-R | TCTGCCCGTTGCTCTGATGAT CCTTGGATGTGGTAGCCGTTT | 193 | 95 °C x 1 min; 40 x (94 °C x 30 s, 55 °C x 30 s, 72 °C x 35 s); 72 °C x 5 min |
|
noDrop 2000C UV-Vis (ThermoScientific, EE. UU.) para garantizar una concentración adecuada para los pasos siguientes. Luego, preparamos el cADN de hebra simple a partir de 5 µL del ARN extraído para cada muestra, logrando un volumen final de reacción de 20 µL. Esta síntesis se realizó utilizando el kit RevertAid H Minus First Strand cDNA Synthesis o el kit Maxima H Minus First Strand cDNA Synthesis (Thermo Scientific, Lituania), utilizando hexámeros aleatorios. El cADN sintetizado se almacenó a -35 °C para su conservación. Para asegurar la integridad del cADN y verificar posibles inhibidores de la amplificación o degradación del ARN, utilizamos cebadores que apuntaban a un fragmento de 193 pb de la subunidad ribosomal ARN 18S de plantas, que sirve como gen de referencia para estudios
de expresión génica en plantas (citado de
Análisis del virus de la mancha necrótica de Impatiens: secuenciación y construcción de redes de haplotipos
Proceso de secuenciación. Se realizó la secuenciación directa de todos los amplicones derivados del subconjunto seleccionado de 20 muestras, previamente identificadas como positivas para INSV mediante ELISA. Esta secuenciación, realizada en direcciones tanto hacia adelante como hacia atrás, empleó los mismos pares de cebadores utilizados en las amplificaciones por PCR. Macrogen Inc. (Corea) fue responsable de la purificación y secuenciación de estos productos de PCR. Las secuencias resultantes se ensamblaron cuidadosamente y se editaron meticulosamente utilizando el software BioEdit (versión 7.2.5). Las secuencias obtenidas se archivaron en la base de datos GenBank, un repositorio mantenido por el Instituto Nacional de Salud. Nuestra estrategia para analizar las relaciones filogenéticas de INSV implicó la obtención de secuencias representativas de diversas ubicaciones geográficas y plantas hospederas de GenBank. Empleamos una estrategia de búsqueda específica centrada en “Impatiens necrotic spot”, categorizando las secuencias por sus respectivos segmentos genómicos: S, M y L. Se construyeron árboles filogenéticos iniciales para cada una de las regiones genómicas amplificadas: S(N), M(NSM), M(G) y L(L). Esta fase incluyó la incorporación de secuencias relevantes disponibles en GenBank. Los modelos de sustitución de ADN se seleccionaron meticulosamente para ajustarse a nuestros análisis filogenéticos, que ejecutamos utilizando el software MEGA X (
Resultados
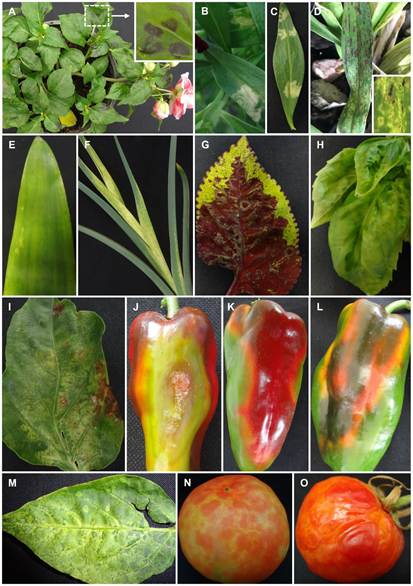
Análisis ELISA y síntomas observados. Las pruebas de ELISA identificaron INSV e IYSV en las muestras, siendo INSV relativamente común en Costa Rica (58 de 295 muestras). Notablemente, no se detectaron TSWV y el serogrupo que comprende GRSV y TCSV. INSV se encontró en 12 de las 39 especies de plantas evaluadas, incluyendo pimiento (Capsicum annuum), cebolla (Allium cepa), tomate (Solanum lycopersicum) e iris (Iris sp.), que tuvo el mayor número de muestras positivas (
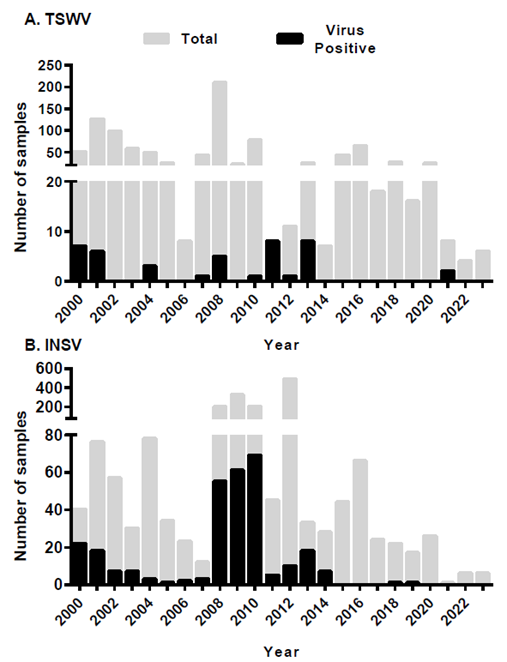
Análisis longitudinal de la aparición de TSWV e INSV. Nuestra investigación sobre la presencia histórica del virus del marchitamiento moteado del jitomate (TSWV) y el virus de la mancha necrótica de la impatiens (INSV) en Costa Rica fue motivada por la ausencia de TSWV en nuestros estudios recientes de muestras y por el hecho de que las únicas ocurrencias documentadas de TSWV en el país se informaron en 1990 (
Confirmación por RT-PCR de la aparición de INSV. Los análisis de RT-PCR confirmaron la presencia de INSV en nueve taxones de plantas diferentes: Antirrhinum majus, Capsicum annuum, Hippeastrum, Impatiens, Iris, Ocimum basilicum, Plectranthus scuttellarioides, Solanum lycopersicum y el híbrido artificial de orquídea Bakerara. Todas las especies de plantas que resultaron positivas para INSV mediante ELISA también arrojaron resultados positivos en pruebas de RT-PCR utilizando al menos dos pares de cebadores diferentes, seguidos de secuenciación (como se muestra en la
| Hospedante (Nombre común) | No. de muestras | No de muestras positivasy | |||
|---|---|---|---|---|---|
| INSV | IYSV | TSWV | GRSV/ TCSV | ||
| Amaryllidaceae | |||||
| Allium cepa (cebolla) | 38 | 6 | 10 | 0 | 0 |
| Allium sativum (ajo) | 2 | 0 | 0 | 0 | 0 |
| Hippeastrum sp.(“amarilis”) | 1 | 1 | 0 | 0 | 0 |
| Tulbaghia violaceae (ajillo) | 1 | 0 | 0 | 0 | 0 |
| Anacardiaceae | |||||
| Spondias purpurea (jocote) | 1 | 0 | 0 | 0 | 0 |
| Apocynaceae | |||||
| Mandevilla sp. (dipladenia) | 1 | 0 | 0 | 0 | 0 |
| Trachelospermum jasminoides (jazmin estrella) | 1 | 0 | 0 | 0 | 0 |
| Cataranthus roseus (vinca) | 4 | 0 | 0 | 0 | 0 |
| Asparagaceae | |||||
| Ornithogalum sp. (estrella de Belén) | 1 | 0 | 0 | 0 | 0 |
| Asteraceae | |||||
| Lactuca sativa (lechuga) | 6 | 0 | 0 | 0 | 0 |
| Balsaminaceae | |||||
| Impatiens sp. (impatiens) | 7 | 3 | 0 | 0 | 0 |
| Caricaceae | |||||
| Carica papaya (papaya) | 5 | 0 | 0 | 0 | 0 |
| Cucurbitaceae | |||||
| Citrullus lanatus (sandía) | 2 | 0 | 0 | 0 | 0 |
| Cucumis melo (melón) | 13 | 0 | 0 | 0 | 0 |
| Cucumis sativus (pepino) | 1 | 0 | 0 | 0 | 0 |
| Cucurbita pepo (calabaza, zucchini) | 2 | 0 | 0 | 0 | 0 |
| Sechium edule (chayote) | 1 | 0 | 0 | 0 | 0 |
| Sechium tacaco (tacaco) | 1 | 0 | 0 | 0 | 0 |
| Fabaceae | |||||
| Arachis pintoi (frijol pinto) | 3 | 0 | 0 | 0 | 0 |
| Phaseolus vulgaris (frijol) | 4 | 0 | 0 | 0 | 0 |
| Gentianaceae | |||||
| Eustoma sp. (lisianthus) | 3 | 3 | 0 | 0 | 0 |
| Iridaceae | |||||
| Iris sp. (iris) | 4 | 4 | 0 | 0 | 0 |
| Lamiaceae | |||||
| Ocimum basilicum (albahaca) | 1 | 1 | 0 | 0 | 0 |
| Plectranthus scuttellarioides (coleo) | 2 | 2 | 0 | 0 | 0 |
| Liliaceae | |||||
| Lilium sp. (lirios) | 2 | 0 | 0 | 0 | 0 |
| Malvaceae | |||||
| Gossypium hirsutum (algodón) | 1 | 0 | 0 | 0 | 0 |
| Hibiscus sp. (hibiscus) | 4 | 0 | 0 | 0 | 0 |
| Orchidaceae | |||||
| Several species and hybridsz (orquidea) | 45 | 1 | 0 | 0 | 0 |
| Oxalidaceae | |||||
| Oxalis sp. | 2 | 0 | 0 | 0 | 0 |
| Plantaginaceae | |||||
| Antirrhinum majus (boca de dragón) | 2 | 2 | 0 | 0 | 0 |
| Rosaceae | |||||
| Fragaria x ananassa (fresa) | 2 | 0 | 0 | 0 | 0 |
| Solanaceae | |||||
| Browallia sp. (violeta de arbusto) | 2 | 1 | 0 | 0 | 0 |
| Calibrachoa sp. (calibracoa) | 4 | 0 | 0 | 0 | 0 |
| Capsicum annuum (pimiento, chile dulce) | 68 | 30 | 0 | 0 | 0 |
| Petunia sp. (petunia) | 14 | 0 | 0 | 0 | 0 |
| Solanum lycopersicum (jitomate) | 37 | 4 | 0 | 0 | 0 |
| Solanum melongena (berenjena) | 1 | 0 | 0 | 0 | 0 |
| Solanum quitoense (naranjilla, lulo) | 1 | 0 | 0 | 0 | 0 |
| Solanum tuberosum (papa) | 4 | 0 | 0 | 0 | 0 |
| Zingiberaceae | |||||
| Hedychium sp. | 1 | 0 | 0 | 0 | 0 |
| Total | 295 | 58 | 10 | 0 | 0 |
se había confirmado en un estudio anterior (
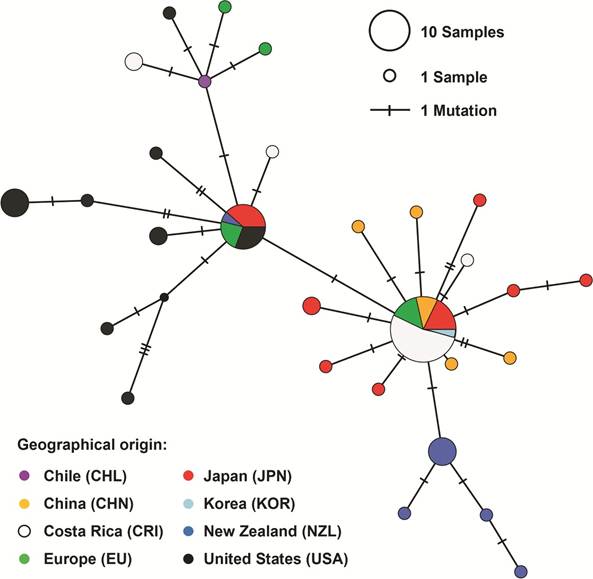
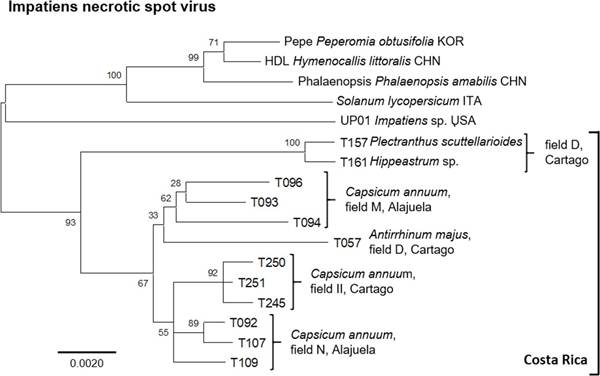
Análisis de red de haplotipos. En el análisis filogenético inicial de las secuencias de S(N), M(NSM), M(G) y L(L) de INSV, incluyendo secuencias de otros países, observamos la falta de conglomerados bien definidos (datos no mostrados). En consecuencia, dirigimos nuestra atención a un análisis de haplotipos del conjunto de datos de secuencias de S(N). Este conjunto de datos comprendía un segmento de 261 pb del ORF de la nucleocápside de los aislamientos de INSV disponibles globalmente en GenBank, junto con las 18 secuencias que obtuvimos en este estudio (
Entre ellos, un haplotipo destacó como predominante en el país, y curiosamente, también se encuentra en China, Japón, Europa y Corea. Los otros dos haplotipos, aunque menos prevalentes en Costa Rica, están más estrechamente relacionados con un haplotipo principal observado en Europa, Japón, Nueva Zelanda y Estados Unidos. Además, realizamos un análisis concatenado de cuatro regiones del ge-
| Hospedante | ID | Sitiow, provincia | Secuenciax identificacióny | |||
|---|---|---|---|---|---|---|
| S(N) | M(NSM) | M(G) | L(L) | |||
| Antirrhinum majus | T057 | D, Cartago | MH687991 | MH673625 | MH673643 | MH487473 |
| Capsicum annuum | T092 | N, Alajuela | MH687992 | MH673626 | MH673644 | MH487474 |
| T093 | M, Alajuela | MH687993 | MH673627 | MH673645 | MH487475 | |
| T094 | M, Alajuela | MH687994 | MH673628 | MH673646 | MH487476 | |
| T096 | M, Alajuela | MH687995 | MH673629 | MH673647 | MH487477 | |
| T107 | N, Alajuela | MH687996 | MH673630 | MH673648 | MH487479 | |
| T109 | N, Alajuela | MH687997 | MH673631 | MH673649 | MH487480 | |
| T245 | II, Cartago | MH688003 | MH673638 | MH673657 | MH487487 | |
| T250 | II, Cartago | MH688004 | MH673639 | MH673658 | MH487488 | |
| T251 | II, Cartago | MH688005 | MH673640 | MH673659 | MH487489 | |
| Hippeastrum sp. | T161 | D, Cartago | MH688001 | MH673635 | MH673653 | MH487483 |
| Impatiens sp. | T031 | C, Alajuela | MH687990 | MH673624 | MH673642 | MH487472 |
| Iris sp. | T184 | CC, Cartago | ---z | MH673636 | MH673654 | MH487484 |
| T186 | CC, Cartago | --z | MH673637 | MH673655 | MH487486 | |
| Ocimun basilicum | T156 | D, Cartago | MH687998 | MH673632 | MH673650 | --z |
| Orchid | T024 | B, Alajuela | MH687989 | MH673623 | MH673641 | --z |
| Plectranthus scuttellarioides | T157 | D, Cartago | MH687999 | MH673633 | MH673651 | MH487481 |
| T158 | D, Cartago | MH688000 | MH673634 | MH673652 | MH487482 | |
| Solanum lycopersicum | T263 | O, San José | MH688006 | --z | MH673660 | --z |
| T303 | O, San José | MH688007 | --z | MH673661 | --z | |
| Total (n) | 20 | 8, 3 | 18 | 18 | 20 | 16 |
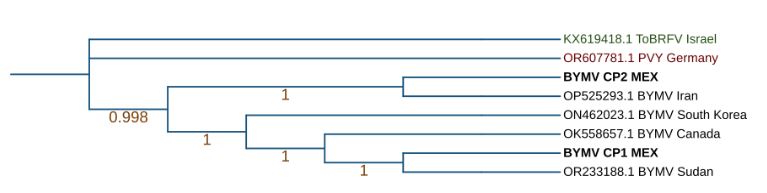
noma (segmentos del genoma S, M y L) que amplificamos y secuenciamos. Este análisis incluyó 12 muestras de Costa Rica y cinco genomas de INSV disponibles en GenBank (ilustrados en la
filogenético, las ramas y nodos delimitaron claramente las diferencias entre los 12 aislamientos costarricenses incluidos en nuestro estudio (
Discusión
En este estudio, se centró en la presencia histórica de TSWV e INSV en Costa Rica, motivados por la ausencia de TSWV en las muestras recientes y solo informes esporádicos de TSWV que datan de 1990 y 1991. Nuestro análisis de los registros de los servicios de la clínica de diagnóstico, que abarcan el período desde 2000 hasta julio de 2023, reveló una baja ocurrencia de TSWV, con períodos alternantes sin detección. Este patrón se alinea con las tendencias globales que sugieren fluctuaciones cíclicas en las ocurrencias de TSWV, según indican
Cabe destacar que en este estudio no detectó el serogrupo de orthotospovirus GRSV/TCSV, sugiriendo su ausencia en la región continental del Caribe en América Central. Esto a pesar de su prevalencia en las islas del Caribe. El uso de cebadores degenerados de orthotospovirus en este estudio, no identificaron virus distintos a INSV, indicando una posible falta de diversidad entre los orthotospovirus en Costa Rica. La encuesta realizada entre 2013 y 2014, subraya la necesidad de una vigilancia continua para monitorear posibles introducciones de nuevas especies de orthotospovirus.
Estos hallazgos establecen a INSV como un orthotospovirus prevalente en Costa Rica, en contraste con su aparente ausencia en otros países de América Central. Esta discrepancia probablemente refleje una brecha en la investigación regional de orthotospovirus en lugar de una ausencia real del virus. Estudios previos han identificado dos clados distintos de aislamientos de INSV, los clados del Hemisferio Occidental y Asiático. Nuestro análisis de la red de haplotipos, basado en una secuencia parcial del nucleocápside, sugiere la presencia de dos haplotipos principales y varios nodos secundarios, con la mayoría de las secuencias costarricenses alineadas con el clado asiático propuesto. Esta observación indica al menos dos introducciones separadas de INSV en Costa Rica. Además, nuestros resultados sugieren un agrupamiento geográfico de los aislamientos de INSV dentro de Costa Rica, con evidencia de diferenciación genética basada en el lugar de origen. Esto está en línea con hallazgos de estudios anteriores, que también indicaron una tendencia de los aislamientos de INSV a agruparse geográficamente y reportaron una diversidad genética limitada dentro de las poblaciones locales de INSV.
Este estudio subraya la necesidad de más investigaciones para evaluar con precisión la diversidad genética de la población de INSV en Costa Rica. Tales esfuerzos son cruciales para comprender la epidemiología de los orthotospovirus en la región y para desarrollar estrategias efectivas de manejo.
Conclusiones
La encuesta exhaustiva realizada en 2013 y 2014 en toda Costa Rica ha proporcionado ideas significativas sobre la prevalencia y diversidad de orthotospovirus en la región. El virus de la mancha necrótica del impatiens (INSV) se detectó en un número considerable de muestras (58 de 295) analizadas mediante ELISA. El virus exhibió un amplio rango de hospederos, afectando a 13 taxones diferentes, incluyendo Allium cepa, Capsicum annuum y Solanum lycopersicum, entre otros. Por otro lado, el virus de la mancha amarilla del iris (IYSV) solo se identificó en diez muestras de cebolla. Cabe destacar que en este estudio no se detectaron el virus del bronceado del tomate (TSWV), el virus de la mancha anular del cacahuate (GRSV) y el virus de la mancha clorótica del tomate (TCSV). Sin embargo, los datos históricos confirman la presencia de TSWV en Costa Rica, con una disminución notada en las solicitudes de detección y las ocurrencias a lo largo del tiempo.
El análisis basado en un fragmento de la secuencia del nucleocápside indicó una baja diversidad de INSV en Costa Rica, con solo cuatro haplotipos identificados entre las 20 muestras analizadas. Un análisis más profundo, que incluyó regiones concatenadas de los segmentos del genoma S, M y L, sugirió una variabilidad relativamente mayor de INSV dentro del país. Esta discrepancia subraya la necesidad de un muestreo y análisis adicionales para determinar con precisión la diversidad genética de INSV en Costa Rica.
Estos datos sugieren la presencia de dos linajes de INSV en Costa Rica: los linajes asiáticos y del Hemisferio Occidental. Esta hipótesis concuerda con los patrones de distribución global de INSV e indica la ocurrencia de múltiples eventos de introducción en la región. Dada la naturaleza dinámica del comercio internacional y el movimiento humano, se hace esencial llevar a cabo una encuesta actualizada y más extensa en todo el país para comprender la situación actual de los orthotospovirus en Costa Rica. Además, existe una necesidad crítica de llevar a cabo investigaciones integrales en toda América Central. Estas investigaciones deben centrarse en descripciones de síntomas, listas de hospederos susceptibles e identificación de poblaciones de trips involucrados en la transmisión del virus, con el fin de comprender la epidemiología de los orthotospovirus en la región. Obtener datos de secuencias será crucial para comprender las estructuras de población e identificar cepas potencialmente de alto riesgo, como aquellas capaces de superar la resistencia. Esta información es vital para desarrollar estrategias que controlen la introducción y propagación de cepas y especies virales específicas en la región. Estrategias efectivas de gestión, que incluyan inspecciones aduaneras, medidas de cuarentena y colaboración regional, son imperativas para mitigar el impacto de estos virus en la agricultura en América Central.
En conclusión, nuestro estudio destaca la importancia del monitoreo continuo, la investigación y la cooperación regional en la gestión de los orthotospovirus, un paso crucial hacia la sostenibilidad y productividad agrícola en América Central.