Antagonismo in vitro de Trichoderma contra Sclerotium rolfsii provenientes de papa (Solanum tuberosum)
Gabriel, Herrera-Rodríguez; Gabriel Antonio, Lugo-García; María Belén, Irazoqui-Acosta; Diana Laura, Muñoz-Bojórquez; Sara Elodia, Armenta-López; Rubén, Félix-Gastélum; Hugo, Beltrán-Peña; Guadalupe Arlene, Mora-Romero
Resumen
RESUMEN
Antecedentes/Objetivo.
Antecedentes/Objetivo.
Trichoderma constituye una alternativa viable para reducir el potencial destructivo de la pudrición blanda (Sclerotium rolfsii) en el cultivo de papa. Los objetivos de la investigación fueron determinar la efectividad antagónica in vitro de Trichoderma asperellum, T. asperelloides, T. afroharzianum y T. azevedoi contra S. rolfsii (Scr4 y Scr17) y determinar las interacciones hifales de los antagonistas, además de determinar la inhibición del crecimiento micelial de S. rolfsii (Scr4) mediante metabolitos volátiles producidos por las especies de Trichoderma.
Materiales y Métodos.
Materiales y Métodos.
Se estudió la efectividad biológica in vitro de 16 aislados de T. asperellum, cinco de T. asperelloides, cuatro de T. afroharzianum, uno de T. azevedoi, sobre la inhibición del crecimiento micelial de S. rolfsii (Scr4 y Scr17). También, se determinó el tipo de interacción hifal de los mismos aislados de Trichoderma spp. y S. rolfsii (Scr4). Se evaluó el efecto de los metabolitos volátiles producidos por los aislados de Trichoderma spp. sobre la inhibición del crecimiento micelial de S. rolfsii (Scr4). Los datos sobre inhibición del crecimiento micelial se analizaron mediante análisis estadístico no paramétrico (Kruskal-Wallis) y la separación de medias se realizó mediante los procedimientos de Conover (1999) con (P ≤ 0.05).
Resultados.
Resultados.
En las confrontaciones duales, especies de Trichoderma mostraron inhibiciones en crecimiento micelial de 21.0 a 75.4 % y de 23.6 a 77.1 % en los aislados Scr4 y Scr17 de S. rolfsii, respectivamente. Las interacciones hifales de las mismas especies de Trichoderma, consistieron en vacuolización, granulación, enrollamiento, adhesión, lisis y penetración en el patógeno (Scr4); las cuatro especies de Trichoderma inhibieron el crecimiento micelial (26.0 a 81.4 %) de S. rolfsii. T. azevedoi destacó entre los aislados por mostrar mayor capacidad antagónica en todas las pruebas.
Conclusión.
Conclusión.
Los resultados indican que las especies de Trichoderma, en especial T. azevedoi (TAI73), inhibió el crecimiento de S. rolfsii Scr4 (75.4 %) y Scr17 (77.1 %). T. azevedoi (TAI73) causó vacuolización, granulación, enrollamiento, adhesión y lisis de las hifas en aislado Scr4
Palabras clave:
Antagonista, Control Biológico, Inhibición Micelial, Metabolitos
Introducción
Introducción
Sclerotium rolfsii es un hongo fitopatógeno presente en el suelo, considerado como el agente causal de la pudrición de los tubérculos de papa (Solanum tuberosum). También provoca la pudrición de tallos, raíces, pecíolos, hojas y frutos en diversos cultivos. El hongo ha causado pérdidas de hasta del 15 % de la producción en el cultivo de papa en Italia (Garibaldi et al., 2007). Los síntomas inician con pudrición seca en la base del tallo, además necrosis en el tejido vascular; las hojas de las plantas infectadas presentan clorosis, conforme la enfermedad avanza las plantas se marchitan y los tubérculos se pudren. El hongo produce micelio blanco en forma de abanico, sobre el tejido afectado, cuando este madura se producen esclerocios, los cuales constituyen la principal fuente de inóculo primario, y se dispersan por medio del agua, residuos vegetales, suelo y animales (Kator et al., 2015; Roca et al., 2016). En Sinaloa, México, la enfermedad ha sido subestimada por los productores de papa, pero se estima que ésta ha causado pérdidas de hasta 20 % de la producción en predios con suelos que retienen alta humedad (arcillosos) y coinciden con el incremento de la temperatura ambiental superiores a los 30 °C, además los daños se incrementan cuando el productor pospone la cosecha, lo que propicia que el hongo incremente el daño a los tubérculos que permanecen en el suelo.
Los fungicidas sintéticos se utilizan para combatir diferentes especies de hongos fitopatógenos; no obstante, la aplicación excesiva de plaguicidas ha ocasionado problemas ambientales y de salud humana (Brauer et al., 2019). Por otro lado, para el control de S. rolfsii se han utilizado otros métodos con enfoque ecológico, como es el uso de agentes de biocontrol, lo cual resulta en una prometedora alternativa (Mishra et al., 2015; Khan et al., 2020). En este sentido, las diferentes especies de Trichoderma son las más utilizadas como biocontroladores, ya que presentan diferentes mecanismos de acción (competencia por el sustrato, micoparasitismo y antibiosis) que permiten manejar diversas enfermedades causadas por fitopatógenos (Infante et al., 2009; Adnan et al., 2019; Garrido y Vilela, 2019; Andrade-Hoyos et al., 2020; Pérez et al., 2020; Asad, 2022). Aun cuando estudios de antagonismo in vitro entre especies de Trichoderma y S. rolfsii en papa son nulos; otros estudios en otros hospedantes se han consignado buen control al utilizar Trichoderma spp. como antagonista contra S. rolfsii obtenidos de plantas de tomate (Solanum lycopersicum), frijol (Phaseolus vulgaris), repollo (Brassica oleracea), betel (Piper betle), lenteja (Lens esculenta), garbanzo (Cicer arietinum), calabaza (Cucurbita pepo), entre otros (Díaz-Nájera et al., 2018; Kushwaha et al., 2018;Chandra-Sekhar et al., 2020; Kamel et al., 2020; Andrade-Hoyos et al., 2023). T. hamatum, T. harzianum, T. viride, T. virens y T. asperellum producen distintos metabolitos secundarios, que activan los mecanismos de defensa, promueven el desarrollo y crecimiento de las plantas; además de inhibir el desarrollo de los patógenos (Lee et al., 2016; Chandra et al., 2020; Vineela et al., 2020; Safari et al., 2022; Guzmán et al., 2023). Los metabolitos que producen pueden ser volátiles y no volátiles; entre los metabolitos volátiles se encuentran el ácido acético, 2-pentilfuran, 6-pentil-2H-piran-2-ona, 2-metil-1-butanol entre otros, los cuales inhiben a S. rolfsii (Phoka et al., 2020; Sridharan et al., 2020).
En México, S. rolfsii ha mostrado altos niveles de incidencia en lotes comerciales de papa de Sonora y Sinaloa; sin embargo, la evaluación de efectividad biológica de las especies de Trichoderma contra este fitopatógeno bajo condiciones controladas, invernadero y campo, no se ha determinado, por lo que es importante generar alternativas ecológicas para el manejo de este hongo en el corto plazo. Por lo anterior, los objetivos de este estudio fueron determinar la capacidad antagónica in vitro de 26 aislados de Trichoderma mediante confrontaciones duales, así como, identificar las interacciones hifales y evaluar el efecto de los metabolitos volátiles contra el crecimiento micelial de aislados de S. rolfsii obtenidos de suelos sometidos a la siembra de papa en los estados de Sonora y Sinaloa, México.
Materiales y Métodos
Materiales y Métodos
Obtención de aislados. En el estudio, se utilizaron 16 aislados de T. asperellum (TAM), cinco de T. asperelloides (TES), cuatro de T. afroharzianum (TAF), uno de T. azevedoi (TAI) y dos de S. rolfsii (Scr4 y Scr17). Dichos aislados fueron proporcionados por el banco microbiológico del Laboratorio de Diagnóstico Fitosanitario de la Junta Local de Sanidad Vegetal del Valle del Fuerte. Los aislados se obtuvieron de los municipios Altar y Caborca, pertenecientes al estado de Sonora, y Ahome, Guasave, El Fuerte y Sinaloa de Leyva, del estado de Sinaloa, durante los ciclos agrícolas del 2019-2021. Las secuencias de los aislados se depositaron en el GenBank, con los códigos OR521159- OR521184 para Trichoderma y OR514113 y OR514124 para Sclerotium rolfsii (Cuadro 1).
Efecto inhibitorio in vitro de 26 aislados de Trichoderma spp. contra Sclerotium rolfsii. El antagonismo in vitro de 26 aislados de cuatro especies de Trichoderma con tres días de crecimiento se determinó contra dos aislados de S. rolfsii (Scr4 y Scr17) de siete días de crecimiento en medio de cultivo Papa Dextrosa Agar (PDA) (BD Bioxon, Becton, Dickinson de México, S.A. de C.V.). La evaluación se llevó a cabo, mediante la técnica de cultivo dual (Dennis y Webster, 1971). Discos miceliales de 5 mm de diámetro fueron obtenidos tanto de las colonias puras de los aislados antagónicos como del hongo. Los discos de S. rolfsii, se colocaron en la periferia de la caja Petri de 90 mm de diámetro y de Trichoderma spp. en el extremo opuesto. Los tratamientos se distribuyeron en un diseño completamente al azar con cuatro réplicas (cuatro cajas Petri) por cada combinación de S. rolfsii-Trichoderma. El experimento se desarrolló en dos ocasiones.
Cajas Petri con PDA que contenían cultivos individuales tanto de S. rolfsii como de Trichoderma sirvieron como control (Pacheco et al., 2016). Las cajas Petri selladas con Parafilm, se incubaron a 25 ± 1 °C en oscuridad constante en una cámara bioclimática Thermo Scientific. Para determinar la capacidad antagónica de Trichoderma spp., se midió el crecimiento micelial, cada 24 h después de la siembra y terminó cuando S. rolfsii llenó las cajas Petri del grupo control. El porcentaje de inhibición del crecimiento micelial del patógeno de prueba (I) se calculó con la siguiente ecuación: Porcentaje de inhibición: I =C-T/C × 100, donde: C= Crecimiento del patógeno control y T= Crecimiento del patógeno en tratamiento (Kotasthane et al., 2014). La efectividad biológica de las especies de Trichoderma en la inhibición de Sclerotium rolfsii se determinó mediante la escala de clases del 1 al 5 de Bell et al. (1982) donde: clase 1) Trichoderma cubrió por completo la superficie del medio de cultivo, clase 2) Trichoderma creció al menos el 65 % del medio, clase 3) Trichoderma y S. rolfsii crecieron en un 50 % del medio, clase 4) S. rolfsii creció al menos el 65 % del medio y clase 5) S. rolfsii creció completo sobre la superficie del medio de cultivo.
Especie/aislado
Año de muestreo
Localidad
Código en Gen Bank
Sclerotium rolfsii /Scr4
2019
Ahome, Sinaloa
OR514113
Sclerotium rolfsii /Scr17
2019
Ahome, Sinaloa
OR514124
T. asperelloides /TES19
2020
Caborca, Sonora
OR521159
T. asperelloides /TES20
2020
Altar, Sonora
OR521160
T. afroharzianum /TAF21
2020
Altar, Sonora
OR521161
T. asperellum /TAM22
2020
Caborca, Sonora
OR521162
T. asperelloides /TES23
2020
Caborca, Sonora
OR521163
T. asperelloides /TES24
2020
Caborca, Sonora
OR521164
T. asperelloides /TES26
2020
Caborca, Sonora
OR521165
T. asperellum/TAM27
2019
Guasave, Sinaloa
OR521166
T. asperellum/TAM30
2019
El Fuerte, Sinaloa
OR521167
T. asperellum/TAM31
2019
Guasave, Sinaloa
OR521168
T. afroharzianum /TAF33
2020
Sinaloa de Leyva, Sinaloa
OR521169
T. asperellum/TAM35
2020
Ahome, Sinaloa
OR521170
T. asperellum/TAM37
2020
Guasave, Sinaloa
OR521171
T. afroharzianum/TAF38
2020
Guasave, Sinaloa
OR521172
T. asperellum/TAM57
2021
Ahome, Sinaloa
OR521173
T. asperellum/TAM59
2021
Guasave, Sinaloa
OR521174
T. asperellum/TAM64
2021
Ahome, Sinaloa
OR521175
T. asperelloides/TES65
2021
Ahome, Sinaloa
OR521176
T. asperellum/TAM67
2021
Ahome, Sinaloa
OR521177
T. asperellum/TAM68
2021
Ahome, Sinaloa
OR521178
T. asperellum/TAM69
2021
Ahome, Sinaloa
OR521179
T. asperellum/TAM70
2021
Ahome, Sinaloa
OR521180
T. azevedoi /TAI73
2021
Ahome, Sinaloa
OR521181
T. asperellum/TAM74
2021
Ahome, Sinaloa
OR521182
T. asperellum/TAF75
2021
Ahome, Sinaloa
OR521183
T. asperellum/TAM76
2020
Caborca, Sonora
OR521184
Cuadro 1:Origen e identificación de aislados de y especies de .
Interacción hifal de Trichoderma spp. contra S. rolfsii. La interacción hifal de 26 aislados de Trichoderma spp. contra S. rolfsii (Scr4) se evaluó mediante la metodología de cultivos duales (Dennis y Webster, 1971). La observación de la interacción se llevó a cabo al momento del contacto entre los hongos, de los cuales se tomaron tres muestras de la zona de interacción. Para esto, se colocó un fragmento de cinta adhesiva transparente sobre las hifas del hongo y de Trichoderma spp., enseguida la cinta se colocó sobre una gota de lactofenol-azul de algodón en un portaobjetos y se observó al microscopio óptico para identificar vacuolización, granulación, enrollamiento, adhesión, lisis o penetración causados por los aislados de Trichoderma spp. (Martínez et al., 2018).
Efecto de metabolitos volátiles de especies de Trichoderma con actividad antifúngica contra S. rolfsii. Para determinar el efecto inhibitorio de metabolitos volátiles de los 26 aislados de Trichoderma spp. contra un aislado de S. rolfsii (Scr4), éstos se sembraron en PDA y se incubaron a 25 ± 2 °C por tres y siete días, respectivamente. Posteriormente, discos del mismo medio de 5 mm de diámetro con micelio activo de S. rolfsii y 26 aislados de Trichoderma spp. se transfirieron al centro de cajas Petri con PDA. El inóculo de las especies de Trichoderma, se transfirió 24 h antes que el de S. rolfsii. Para confrontar los aislados, las bases de las cajas Petri se ensamblaron y se sellaron con Parafilm (Rajani et al., 2021). En la parte inferior se ubicó a Trichoderma y en la parte superior S. rolfsii (Dennis y Webster, 1971; Mokhtar y Dehimat, 2012). Los tratamientos se distribuyeron en un diseño completamente al azar con cuatro réplicas por cada combinación de S. rolfsii-Trichoderma. El experimento se desarrolló en dos ocasiones. Como control se incluyeron cajas Petri con PDA con cultivos individuales de S. rolfsii como de Trichoderma, las cuales se incubaron a 25 ± 2 °C. El efecto de inhibición de Trichoderma spp. se determinó una vez que S. rolfsii cubrió el medio de cultivo en el tratamiento control sin Trichoderma para lo cual se consideró el porcentaje de inhibición del crecimiento de S. rolfsii mediante la fórmula descrita por Kotasthane et al. (2014), donde: Porcentaje de inhibición: I =C-T/C × 100, donde: C= Crecimiento del patógeno testigo, T= Crecimiento del patógeno en tratamiento.
Análisis estadísticos de datos. Los datos sobre inhibición micelial in vitro mediante confrontaciones en cultivos duales de los 26 aislados de Trichoderma contra dos aislados de S. rolfsii; de igual forma, los datos de inhibición del crecimiento micelial de un aislados de S. rolfsii por los metabolitos volátiles de 26 aislados de Trichoderma spp., se analizaron mediante estadística no paramétrica (Kruskal-Wallis). La separación de medias de inhibición del crecimiento micelial se realizó mediante los procedimientos de Conover (1999) con (P ≤ 0.05).
Resultados
Resultados
Inhibición in vitro de aislados de Trichoderma spp. sobre S. rolfsii. Los resultados mostraron diferencias significativas (P ≤ 0.05) en el efecto inhibitorio in vitro de S. rolfsii entre los 26 aislados de Trichoderma evaluados, ya que inhibieron los dos aislados de S. rolfsii (Scr4 y Scr17), con porcentaje de inhibición de 21.0 a 75.4 % en Scr4 y de 23.6 a 77.1 % en Scr17.
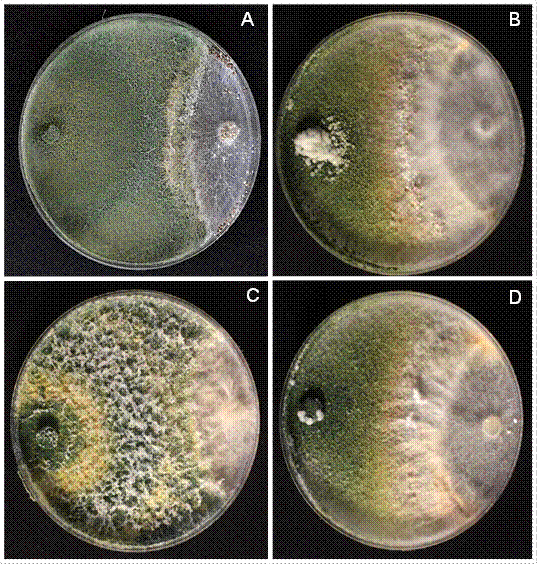
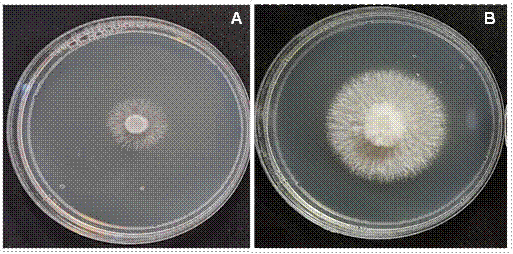
El aislado TAI73 de T. azevedoi mostró el mayor efecto inhibitorio in vitro en el crecimiento micelial del aislado Scr4 de S. rolfsii (Figura 1A) con porcentaje de inhibición de 75.4 %, seguido de los aislados TAM74 (68.9 %), TAM30 (66.6 %), TAF75 (66.0 %), TES65 (65.0 %), TES24 (64.9 %), TAM68 (64.9 %) y TAM37 (64.8 %). Todos los niveles de inhibición se ubicaron en la clase 2, sin diferencias significativas entre éstos (P ≥ 0.05) pero sí con el resto de los aislados de Trichoderma. Mientras que el aislado TAF33 mostró el menor porcentaje de inhibición (21.0 %) (Figura 1B) y correspondió a la clase 4, seguido de TAM70 (56.7 %), TAF21 (57.2 %), TAM76 (57.3 %), TAM57 (57.3 %) y TAM31 (59.0 %), ubicándose todas en la clase 3, sin diferencias significativas entre tratamientos (P ≥ 0.05) (Cuadro 2).
Por otro lado, el aislado de Trichoderma TAI73 mostró el mayor nivel de inhibición en el crecimiento micelial de Scr17 con 77.1 % (clase 2), seguido de TAM69 (68.8 %), TES24 (67.9 %) (Figura 1C), TAM30 (67.9 %), TES65 (67.3 %), TAF75 (67.0 %),
TAM74 (66.4 %), TAM35 (66.2 %) y TAM37 (66.1 %) en clase 2, sin diferencias significativas entre ellos (P ≥ 0.05) (Cuadro 2). En cambio, el aislado de Trichoderma TAF33 (Figura 1D) (clase 4) con 23.6 % mostró el menor porcentaje de inhibición contra Scr17, seguido de TAF38 (52.8 %), TAM31 (57.4 %), TAM68 (59.8 %), TAM59
(60.1 %), TAM64 (60.3 %) y TES20 (60.3 %) todas en clase 3, sin diferencias significativas entre ellos (P ≥ 0.05) (Cuadro 2).
Figura 1:Antagonismo de spp. (izquierda) contra (derecha). (A) Aislado de TAI73 contra Scr4, (B) TAF33 contra Scr4, (C) TES24 contra Scr17 y (D) TAF33 contra Scr17.
El aislado de T. azevedoi (TAI73) presentó el mayor porcentaje de inhibición del crecimiento micelial in vitro del aislado Scr4 de S. rolfsii, con 75.4 % de inhibición (Cuadro 2); mientras que el mismo aislado de Trichoderma ejerció una inhibición de
77.1 % en el aislado Scr17 de S. rolfsii. En contraste, T. afroharzianum (TAF33) tuvo el menor efecto inhibitorio sobre los dos aislados de S. rolfsii (Cuadro 2). Se observó una marcada variación en el efecto de los aislados de Trichoderma sobre la inhibición de S. rolfsii con diferencias significativas entre ellos (P ≤ 0.05) (Cuadro 2).
Aislado Scr4 de S. rolfsii
Aislado Scr17 de S. rolfsii
Aislado de Trichoderma
% de inhibición
Escala
Aislado de Trichoderma
% de inhibición
Escala
Testigo
0.0 az
5
Testigo
0.0 a*
5
TAF33
21.0 ab
4
TAF33
23.6 ab
4
TAM70
56.7 abc
3
TAF38
52.8 ab
3
TAF21
57.2 abcd
3
TAM31
57.4 abc
3
TAM76
57.3 abcd
3
TAM68
59.8 abc
3
TAM57
57.3 abcd
3
TAM59
60.1 abcd
3
TAM31
59.0 abcde
3
TAM64
60.3 abcd
3
TES26
60.3 bcdef
2
TES20
60.3 abcde
3
TAM67
60.5 cdefg
2
TAF21
60.4 bcde
2
TAF38
60.5 cdefg
2
TES26
60.5 bcde
2
TAM64
60.5 cdefg
2
TAM57
61.9 cdef
2
TAM59
60.9 defgh
2
TAM23
61.9 cdef
2
TAM23
61.9 efghi
2
TAM70
62.6 defg
2
TAM27
62.0 efghi
2
TAM67
63.0 defg
2
TAM22
62.7 fghij
2
TAM22
63.4 efgh
2
TAM69
63.2 fghij
2
TAM27
63.4 efgh
2
TES20
63.3 fghij
2
TAM76
64.7 fghi
2
TES19
63.4 ghijk
2
TES19
65.0 fghi
2
TAM35
63.6 hijk
2
TAM37
66.1 ghij
2
TAM37
64.8 ijkl
2
TAM35
66.2 ghij
2
TAM68
64.9 ijkl
2
TAM74
66.4 ghij
2
TES24
64.9 ijkl
2
TAF75
67.0 hij
2
TES65
65.0 jkl
2
TES65
67.3 hij
2
TAF75
66.0 jkl
2
TAM30
67.9 ij
2
TAM30
66.6 kl
2
TES24
67.9 ij
2
TAM74
68.9 l
2
TAM69
68.8 j
2
TAI73
75.4 l
2
TAI73
77.1 j
2
Cuadro 2:Antagonismo de 26 aislados de spp. contra dos aislados de .
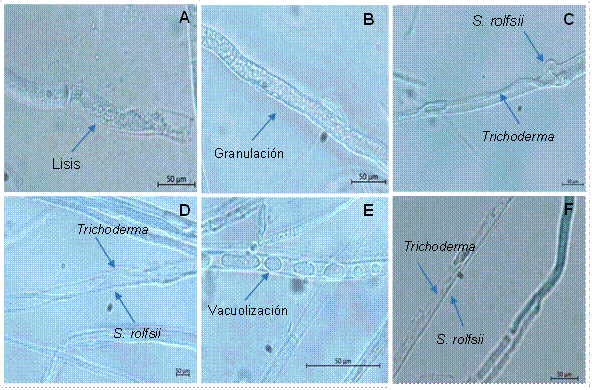
Determinación de interacciones hifales de Trichoderma spp. y S. rolfsii. La zona de encuentro hifal entre aislados de Trichoderma spp. y S. rolfsii (Scr4) mostró varios tipos de interacción; donde 23 aislados del antagonista causaron lisis, (Figura 2A), 20 produjeron granulación (Figura 2B), 20 mostraron adhesión (Figura 2C), 19 presentaron enrollamiento (Figura 2D), 13 indujeron vacuolización (Figura 2E) y uno mostró penetración (Figura 2F). El aislado TES65 de T. asperelloides fue el único que penetró las hifas de S. rolfsii (Cuadro 3, Figura 2F). Los aislados de Trichoderma spp. TAM37, TAM59, TES65, TAI73 y TAM76 mostraron hasta cinco interacciones al confrontarlo con S. rolfsii. Mientras que los aislados TES20, TAF21, TAM23, TES24, TES26, TAM30, TAM31, TAF33, TAM35, TAM57, TAM68, TAM70 y TAF75 del hongo antagónico mostraron tres interacciones (Cuadro 3).
Figura 2:Interacciones hifales entre aislados de spp. y (A) Lisis (TAM67), (B) granulación (TES65), (C) adhesión (TAM69), (D) enrollamiento (TAM59), (E) vacuolización (TAM76) y (F) penetración (TES65).
Aislado de Trichoderma
Tipos de interacciones hifales
Lisis
Granulación
Adhesión
Enrollamiento
Vacuolización
Penetración
TES19
x
x
x
x
TES20
x
x
x
TAF21
x
x
x
TAM22
x
x
x
x
TAM23
x
x
x
TES24
x
x
x
TES26
x
x
x
TAM27
x
x
x
x
TAM30
x
x
x
TAM31
x
x
x
TAF33
x
x
x
TAM35
x
x
x
TAM37
x
x
x
x
x
TAF38
x
x
x
x
TAM57
x
x
x
TAM59
x
x
x
x
x
TAM64
x
x
x
x
TES65
x
x
x
x
x
TAM67
x
x
x
x
TAM68
x
x
x
TAM69
x
x
x
x
TAM70
x
x
x
TAI73
x
x
x
x
x
TAM74
x
x
x
x
TAF75
x
x
x
TAM76
x
x
x
x
x
Cuadro 3:Interacción hifal de 26 aislados de spp. y (Scr4).
Inhibición in vitro de metabolitos volátiles de Trichoderma contra S. rolfsii. Los metabolitos volátiles de 26 aislados de Trichoderma spp. inhibieron el crecimiento micelial de S. rolfsii (Scr4) in vitro. El porcentaje de inhibición varió de 26 a 81.4 %. El mayor porcentaje de inhibición lo ejerció el aislado TAI73 de T. azevedoi con un 81.4 %, mientras que los porcentajes de inhibición de los aislados TAM68 (Figura 3A), TES65, TAM74, TAM57, TAF75, TAM70 y TAM37 variaron de 78.2 a 70.9 %, sin diferencias significativas entre ellos (P ≥ 0.05) (Cuadro 4). Los aislados TAM59, TAM35, TES26, TES19, TAF38, TAM27 y TAM30 (Figura 3B), ejercieron una inhibición de 49.6 a 57.1
% contra S. rolfsii. El aislado TAF33 de T. afroharzianum ejerció el menor porcentaje de inhibición equivalente a 26 %. La variación del efecto inhibitorio de los aislados de Trichoderma se reflejó con diferencias significativas entre aislados (P ≤ 0.05) (Cuadro 4).
Figura 3:Efecto inhibitorio de metabolitos volátiles de spp. contra (A) Aislado de (Scr4) expuesto a metabolitos volátiles de TAM68 y (B) (Scr4) expuesto a metabolitos volátiles de TAM30.
Aislado de Trichoderma
% de inhibición
Aislado de Trichoderma
% de inhibición
Testigo
00.0 az
TAM31
62.5 efghij
TAF33
26.0 a
TAM64
63.0 fghijk
TAM59
49.6 ab
TAM76
65.8 ghijk
TAM35
50.3 ab
TAM67
68.1 hijkl
TES26
54.1 abc
TAF21
69.2 ijklm
TES19
55.6 abcd
TAM37
70.9 ijklmn
TAF38
56.3 abcde
TAM70
72.0 jklmn
TAM27
56.9 abcdef
TAF75
73.5 klmn
TAM30
57.1 abcdef
TAM57
73.5 klmn
TES20
58.4 bcdefg
TAM74
76.3 lmn
TES24
58.7 bcdefg
TES65
76.3 lmn
TAM22
59.5 cdefgh
TAM68
78.2 mn
TAM69
61.4 defghi
TAI73
81.4 n
TAM23
62.2 efghij
Cuadro 4:Efecto de metabolitos volátiles de aislados de contra Scr4.
Discusión
Discusión
El uso de Trichoderma como agente de control biológico en el cultivo de papa es limitado, pues los productores prefieren el uso de fungicidas sintéticos, argumentando que la eficacia de este tipo de sustancia es conocida. En México, no hay evidencia científica sobre el uso de diferentes especies de Trichoderma para controlar la pudrición blanda de la papa.
En este estudio, se encontró que los aislados de T. azevedoi, T. asperellum, T. asperelloides y T. afroharzianum provenientes de suelos sometidos al cultivo de papa, mostraron diferentes niveles de inhibición sobre el crecimiento micelial de S. rolfsii in vitro. T. azevedoi presentó el mayor efecto inhibitorio, con un 75.4 % contra S. rolfsii (Scr4) y un 77.1 % contra la misma especie (Scr17). Estos resultados coinciden con los reportados por Kamel et al. (2020), quienes evaluaron seis especies de Trichoderma contra tres aislados de S. rolfsii provenientes de cultivos de frijol, tomate y repollo en Egipto. En este estudio, T. viride mostró el mayor efecto inhibitorio (85.6 %) contra S. rolfsii obtenido de tomate, mientras T. harzianum inhibió en 79.3 y 77.8 % al mismo patógeno aislado de repollo y frijol, respectivamente. De manera similar Vineela et al. (2020) reportaron que T. hamatum inhibió el crecimiento micelial de S. rolfsii en un 75.2%, seguido de T. harzianum (74.7 %) y T. viride (71.9 %), obtenidos de cultivos de cacahuate (Arachis hypogaea) en la India. Por otro lado, Safari et al. (2022) evaluaron 30 hongos antagonistas mediante cultivo dual y reportaron que T. virens mostró la mayor capacidad de supresión del crecimiento micelial de S. rolfsii (90.8 %) aislado de cultivos de cacahuate en Irán, seguido de T. viride con un 66.8 %. De manera similar Kushwaha et al. (2018) determinaron que T. harzianum ejerció un efecto inhibitorio de 63.5 % in vitro, seguido de T. virens con un 51.5 % y T. viride con 50.8 % contra S. rolfsii aislado de cultivos de lenteja (Lens culinaris) en la India. En contraste Chandra-Sekhar et al. (2020) reportaron una baja inhibición in vitro del crecimiento micelial de S. rolfsii obtenido de tomate en la India, donde T. harzianum inhibió un 50 %, T. viride 39.7 % y T. asperellum 33.8 %.
En el presente estudio, se encontró que, de los 26 aislados de Trichoderma evaluados contra S. rolfsii (Scr4), 20 de ellos (73.0 %) se ubicaron en la clase 2 de acuerdo a la escala de Bell (Bell et al., 1982); mientras que 17 aislados del antagonista (73.0 %) se clasificaron en la clase 2 en cuanto a la inhibición del crecimiento micelial de S. rolfsii (Scr17). Estos resultados sugieren que su potencial de control debería de evaluarse en campo. Por otro lado, Kotasthane et al. (2014) evaluaron 20 aislados de T. harzianum, T. aureoviride, T. viride y T. virens procedentes de cultivos de arroz (Oryza sativa) en la India, de los cuales 19 se ubicaron en la clase 1 y 2, mientras que solo uno se clasificó en clase 3. Estos resultados contrastan con los obtenidos por Bell et al. (1982), quienes evaluaron 77 aislados de Trichoderma. En su estudio, el antagonismo contra S. rolfsii no fue evidente, ya que 88.0 % de los aislados se clasificaron en las clases 3, 4 y 5 con acción limitada, mientras que sólo el 1.0 % se ubicó en la clase 2. Es importante recalcar que la competencia por espacio y nutrientes en las especies de Trichoderma en procesos antagónicos contra fitopatógenos es una característica deseable, ya que está asociada a su crecimiento rápido y producción de metabolitos antimicrobianos (Chandra et al., 2020). Por ello, es necesario realizar estudios adicionales para identificar los metabolitos secundarios, especialmente en T. azevedoi, que mostró el mayor antagonismo contra los dos aislados de S. rolfsii en este trabajo.
Con relación a la interacción hifal, los aislados de Trichoderma incluidos en el presente estudio provocaron vacuolización, granulación, enrollamiento, adhesión, lisis y penetración de las hifas de S. rolfsii, lo que causó la desintegración del micelio del hongo, resaltando T. azevedoi, que presentó el mayor número de interacciones hifales. Resultados similares fueron reportados por Kamel et al. (2020), quienes observaron que la mayoría de las especies de Trichoderma se adhirieron, enrollaron y provocaron la lisis de las hifas del patógeno en la India. En nuestro estudio destaca la acción de T. azevedoi, donde en las diferentes interacciones pueden atribuirse la capacidad de producción de enzimas hidrolíticas como la glucanasa y quitinasa, los cuales afectan la integridad celular de las hifas, provocando el colapso del micelio de S. rolfsii (Kotasthane et al., 2014; Kamel et al., 2020).
Los resultados del presente estudio indican variabilidad en la inhibición del crecimiento micelial de S. rolfsii (26.0 a 81.4 %), resaltando T. azevedoi en su capacidad inhibitoria; esto coincide con lo reportado por Sangle et al. (2016), quienes evaluaron 30 aislados de T. harzianum T. viride, T. hamatum, T. reesei, T. piluliferum y T. virens contra S. rolfsii proveniente de cultivo de lenteja en la india, donde T. harzianum presentó el mayor efecto inhibitorio (84.5 %) del crecimiento micelial del patógeno. De igual manera, Amin et al. (2010), evaluaron T. harzianum, T. virens y T. viride contra S. rolfsii procedentes de diferentes cultivos en la India, obteniendo porcentajes de inhibición menores a los reportados en el presente estudio (20 al 40.0 %). Por otro lado, Ruangwong et al. (2021) analizaron el efecto inhibitorio de T. asperelloides, proveniente de flores de flamenco (Anthurium sp.) en Tailandia, contra S. rolfsii, el cual inhibió el crecimiento micelial del 41.2 %. En su estudio identificaron 17 tipos de metabolitos volátiles, entre los cuales destacó la presencia del 2-feniletanol, un compuesto con propiedades antifúngicas. Sridharan et al. (2020) encontraron que T. longibrachiatum, procedente del cultivo de arroz en la India, inhibió el crecimiento de S. rolfsii y Macrophomina phaseolina en 57 a 35.0 %, respectivamente. Además, este antagonista causó alteraciones en la estructura micelial, pues redujo el grosor del micelio y disminuyó el número de esclerocios en comparación con el patógeno en ausencia del antagonista. Estos resultados, evidencian la capacidad de los metabolitos volátiles producidos por aislados de Trichoderma para inhibir el crecimiento micelial de S. rolfsii sin necesidad de contacto directo entre estos hongos; esta característica reviste importancia en la protección de las plantas de papa contra S. rolfsii (Sangle et al., 2016). Los resultados del presente estudio abren nuevas líneas de investigación relacionadas con la identificación de los mecanismos moleculares involucrado en la inhibición del crecimiento micelial, así como para evaluar la estabilidad de estos efectos en condiciones de campo. Los resultados del presente estudio son relevantes, ya que la mayoría de los aislados de Trichoderma mostraron potencial antagónico, destacando T. azevedoi como potencial agente de control biológico contra S. rolfsii en el cultivo de papa.
Conclusiones
Conclusiones
El aislado TAI73 de T. azevedoi presentó el mejor potencial antagónico para el control de S. rolfsii en todas las pruebas in vitro realizadas en el presente estudio. T. azevedoi inhibió en un 75.4 y 77.1 % el crecimiento micelial de los aislados Scr4 y Scr17 de S. rolfsii, respectivamente y se ubicó en la clase 2 contra ambos aislados en la escala de Bell, lo que muestra su alta capacidad antagónica. Este antagonista también causó vacuolización, granulación, enrollamiento, adhesión y lisis de las hifas de S. rolfsii (Scr4). Además, T. azevedoi produjo metabolitos volátiles, los cuales inhibieron en 84.1 % el crecimiento micelial in vitro del hongo. Estos resultados abren nuevas líneas de investigación relativas a la determinación de la efectividad biológica de T. azevedoi como potencial agente de biocontrol en campo.
Referencias
Adnan M, Islam W, Shabbir A, Khan K, Ghramh H, Chen H and Gou DL 2019. Plant defense against fungal pathogens by antagonistic fungi with Trichoderma in focus. Microbial Pathogenesis 129: 7-18. https://doi.org/10.1016/j.micpath.2019.01.042
Amin F, Razdan K, Mohiddin F, Bhat K and Sheikh A 2010. Effect of volatile metabolites of Trichoderma species against seven fungal plant pathogens In-vitro. Journal of Phytology 2: 34-37. https://www.researchgate.net/publication/273133786_Effect_of_volatile_metabolites_of_Trichoderma_species_against_seven_fungal_plant_pathogens_In-vitro
Andrade-Hoyos P, Rivera-Jiménez MN, Landero-Valenzuela N, Silva-Rojas HV, Martínez-Salgado SJ y Romero-Arenas O 2023. Beneficios ecológicos y biológicos del hongo cosmopolita Trichoderma spp. en la agricultura: una perspectiva en el campo mexicano. Revista Argentina de Microbiología 55: 366-377. https://doi.org/10.1016/j.ram.2023.06.005377
Andrade-Hoyos P, Silva-Rojas HV and Romero-Arenas O 2020. Endophytic Trichoderma species isolated from Persea americana and Cinnamomum verum roots reduce symptoms caused by Phytophthora cinnamomi in Avocado. Plants 9: 1-17. https://doi.org/10.3390/plants9091220
Asad SA 2022. Mechanisms of action and biocontrol potential of Trichoderma against fungal plant diseases-A review. Ecological Complexity 49: 100978. https://doi.org/10.1016/j.ecocom.2021.100978
Bell DK, Wells HD and Markham CR 1982. In vitro antagonism of Trichoderma species against six fungal plant pathogens. Phytopathology 72: 379-382. https://doi.org/10.1094/Phyto-72-379
Brauer VS, Rezende CP, Pessoni AM, De Paula RG, Rangappa KS, Nayaka SC, Gupta VK and Almeida F 2019. Antifungal agents in agriculture: friends and foes of public health. Biomolecules 9: 1-21. https://doi.org/10.3390/biom9100521
Chandra-Sekhar J, Prakash MJ, Prasad R, Reddy VP, Kumar S, Thakur A, Pal J, Mishra JP and Reddy P 2020. Isolation and in vitro evaluation of biocontrol agents, fungicides and essential oils against stem blight of tomato caused by Sclerotium rolfsii. Journal of Pharmacognosy and Phytochemistry 9: 700-705. http://www.phytojournal.com
Conover WJ 1999. Practical nonparametric statistics. John Wiley and Sons, Inc., New York. https://es.scribd.com/document/440028505/W-J-Conover-Practical-Nonparametric-Statistics-3rd-Wiley-1999-compressed-pdf
Dennis C and Webster J 1971. Antagonistic properties of species-groups of Trichoderma, III Hyphal interactions. Transactions British Mycological Society 57: 363-369. https://doi.org/10.1016/S0007-1536(71)80050-5
Díaz-Najera JF, Sahagún CJ, Vargas Hernández M, Ayvar SS, Alvarado GOG, Villanueva VC and Acosta RM 2018. Diagnosis and integrated management of fruit rot in Cucurbita argyrosperma, caused by Sclerotium rolfsii. Plant Pathology Journal 34: 171-181. https://doi.org/10.5423/PPJ.OA.08.2017.0185
Garibaldi A, Gilardi G and Gullido GU 2007. First report of southern blight incited by Sclerotium rolfsii on potato (Solanum tuberosum) in northern Italy. The American Phytopathological Society 9: 1. https://doi.org/10.1094/PD-90-1114C
Garrido M y Vilela N 2019. Capacidad antagónica de Trichoderma harzianum frente a Rhizoctonia, Nakatea sigmoidea y Sclerotium rolfsii y su efecto en cepas nativas de Trichoderma aisladas de cultivos de arroz. Scientia Agropecuaria 10: 199-206. https://doi.org/10.17268/sci.agropecu.2019.02.05
Guzmán GP, Kumar A, De los Santos Villalobos S, Parra CFI, Orozco MMC, Fadiji AE, Hyder S, Babalola OO and Santoyo G 2023. Trichoderma species: our best fungal allies in the biocontrol of plant diseases - a review. Plants 12: 432. https://doi.org/10.3390/plants12030432
Infante D, Martínez B, González N y Reyes Y 2009. Mecanismos de acción de Trichoderma frente a hongos fitopatógenos. Revista Protección Vegetal 24: 14-21. http://scielo.sld.cu/scielo.php?script=sci_arttext&pid=S1010-27522009000100002
Kamel SF, Farag A, Ramadan AA and Tarek A 2020. Biocontrol potentials of Trichoderma spp. against Sclerotium rolfsii the causative of root and crown rot in tomato, common bean and cabbage. Egyptian Journal of Phytopathology 48: 122-136. https://doi.org/10.21608/ejp.2020.54217.1018
Khan RAA, Najeeb S, Mao Zhenchuan, Ling J, Yang Y, Li Y and Xie B 2020. Bioactive secondary metabolites from Trichoderma spp. against phytopathogenic bacteria and root-knot nematode. Microorganisms 8: 1-15. https://doi.org/10.3390/microorganisms8030401
Kator L, Zakki Y and Ona D 2015. Sclerotium rolfsii; Causative organism of southern blight, stem rot, white mold and sclerotia rot disease. Annals of Biological Research 6: 78-89. https://www.researchgate.net/publication/343268195_Sclerotium_rolfsii_Causative_organism_of_southern_blight_stem_rot_white_mold_and_sclerotia_rot_disease
Kotasthane A, Agrawal T, Kushwah R and Rahatkar OV 2014. In vitro antagonism of Trichoderma spp. against Sclerotium rolfsii and Rhizoctonia solani and their response towards growth of cucumber, bottle gourd and bitter gourd. European Journal of Plant Pathology 141: 523-543. https://doi.org/10.1007/s10658-014-0560-0
Kushwaha SK, Kumar S and Chaudhary B 2018. Efficacy of Trichoderma against Sclerotium rolfsii causing collar rot disease of lentil under in vitro conditions. Journal of Applied and Natural Science 10: 307-312. https://www.researchgate.net/publication/324229779_Efficacy_of_Trichoderma_against_Sclerotium_rolfsii_causing_collar_rot_disease_of_lentil_under_in_vitro_conditions
Lee S, Yap M, Behringer G, Hung R y Bennett JW 2016. Volatile organic compounds emitted by Trichoderma species mediate plant growth. Fungal Biology and Biotechnology 3: 1-14. https://doi.org/10.1186/s40694-016-0025-7
Martínez PHY, Torres CJA, Rodríguez HR, López SJA, Estrada DB y Osorio HE 2018. Identification and evaluation of secondary metabolites by gas chromatography mass spectrometry (GC-MS) in native strains of Trichoderma species. African Journal of Biotechnology 17: 1162-1171. https://doi.org/10.5897/AJB2018.16546
Mishra S, Singh A, Keswani C, Saxena A, Sarma BK y Singh HB 2015. Harnessing plant-microbe interactions for enhanced protection against phytopathogens. Pp 111-125. In: Arora NK (ed.), Plant microbe symbiosis applied facets. Springer, New Delhi. https://doi.org/10.1007/978-81-322-2068-8_5
Mokhtar H y Dehimat A 2012. Antagonism capability in-vitro of Trichoderma harzianum against some pathogenic fungi. Agriculture and Biology Journal of North America 3: 452-460. https://doi.org/10.5251/abjna.2012.3.11.452.460
Pacheco KR, Viscardi BS, Vasconcelos TM, Moreira GA, Vale HM y Blum LE 2016. Efficacy of Trichoderma asperellum, T. harzianum, T. longibrachiatum and T. reesei against Sclerotium rolfsii. Bioscience Journal 32: 412-421. https://doi.org/10.14393/BJ-v32n2a2016-32732
Pérez A, Pérez M, Martínez C, Rollhaise H y Blengini M 2020. Selección de aislamientos de Trichoderma spp. in-vitro como potenciales biofungicidas para el control de Rhizoctonia solani Kühn en la papa. Agriscientia 37: 21-33. http://dx.doi.org/10.31047/1668.298x.v37.n2.29419
Phoka N, Suwannarach N, Lumyong S, Ito SI, Matsui K, Arikit S y Sunpapao A 2020. Role of volatiles from the endophytic fungus Trichoderma asperelloides PSU-P1 in biocontrol potential and in promoting the plant growth of Arabidopsis thaliana. Journal Fungi 6: 341. https://doi.org/10.3390/jof6040341
Rajani P, Rajasekaran C, Vasanthakumari MM, Olsson SB, Ravikanth G y Uma Shaanker R 2021. Inhibition of plant pathogenic fungi by endophytic Trichoderma spp. through mycoparasitism and volatile organic compounds. Microbiological Research 242. https://doi.org/10.1016/j.micres.2020.126595
Roca LF, Raya MC, Luque F, Agustí Brisach C, Romero J y Trapero A 2016. First report of Sclerotium rolfsii causing soft rot of potato tubers in Spain. Plant Disease 100: 2535. https://doi.org/10.1094/PDIS-12-15-1505-PDN
Ruangwong OU, Wonglom P, Suwannarach N, Kumla J, Thaochan N, Chomnunti P, Pitija K y Sunpapao A 2021. Volatile organic compound from Trichoderma asperelloides TSU1: Impact on plant pathogenic fungi. Journal Fungi 7: 187. https://doi.org/10.3390/jof7030187
Safari MMR, Farokhzad, M, Kaviani B y Kulus D 2022. Endophytic fungi as biocontrol agents against Sclerotium rolfsii Sacc. the causal agent of peanut white stem rot disease. Cells 11: 2643. https://doi.org/10.3390/cells11172643
Sangle UR, Kumar S y Mishra JS 2016. Effect of volatile metabolites released by different Trichoderma spp. on the growth of pathogen Sclerotium rolfsii and effect on sclerotia germination. Journal Phytology 11: 2811-2816. https://www.researchgate.net/publication/273133786_Effect_of_volatile_metabolites_of_Trichoderma_species_against_seven_fungal_plant_pathogens_In-vitro
Sridharan A, Thankappan S, Karthikeyan G y Sivakumar U 2020. Comprehensive profiling of the VOCs of Trichoderma longibrachiatum EF5 while interacting with Sclerotium rolfsii and Macrophomina phaseolina. Microbiological Research 236: 1-13. https://doi.org/10.1016/j.micres.2020.126436
Vineela DRS, Beura SK, Dhal A y Swain SK 2020. Efficacy of bio-agents, botanicals, organic amendments against groundnut pathogens Sclerotium rolfsii and Aspergillus niger in-vitro. Journal of Pharmacognosy and Phytochemistry 9: 1206-1210. https://www.phytojournal.com/archives/2020/vol9issue3/PartT/9-3-134-749.pdf
Emily E. Heliwell, Peter Lafayete, Felipe Arredondo, Madeleine Duquette, Anna Co, Julio Vega-Arreguín, Stephanie Porter, Eli J. Borrego, Michael V. Kolomiets, Wayne A. Parrot y Brett M. Tyler.