Introducción
El chile (Capsicum annuum) es la tercera hortaliza más cultivada y consumida a nivel mundial, con gran importancia económica en países productores como México (Lozana et al., 2022;
Las especies del género Fusarium representan una de las principales amenazas fitosanitarias para el cultivo de chile, causando enfermedades como la marchitez y pudrición radicular, que pueden generar pérdidas severas en la producción (
La persistencia de Fusarium en el suelo y su capacidad para formar estructuras de resistencia complica su control, convirtiéndolo en un problema recurrente en las zonas productoras de chile (
Sin embargo, el uso de B. cereus y B. thuringiensis como agentes de biocontrol y promotores de crecimiento vegetal (PCV) en chile jalapeño aún no ha sido suficientemente estudiado. Esto es especialmente relevante considerando que las cepas utilizadas en este estudio son nativas del suelo de la región productora de chile, específicamente de la zona centro-sur del estado de Chihuahua. Esta característica podría conferirles una mayor capacidad de adaptación y efectividad contra patógenos locales como F. oxysporum. Además, identificar microorganismos con propiedades de biocontrol y PCV originarios de la misma zona de producción pueden representar una estrategia más eficiente y sostenible para el manejo de la marchitez por Fusarium oxysporum en chile jalapeño. A partir de esta premisa, se hipotetiza que la aplicación de B. cereus y B. thuringiensis reducirá la severidad de la marchitez por Fusarium oxysporum y promoverá el crecimiento del chile jalapeño en condiciones de invernadero. Por lo tanto, el objetivo de este estudio fue evaluar la capacidad de biocontrol y PCV de B. cereus y B. thuringiensis, así como su efecto sobre variables morfológicas del chile jalapeño y la reducción de la severidad de la marchitez. Los hallazgos de este estudio proporcionarán evidencia sobre el potencial de estos microorganismos como alternativas ecológicas al control químico, contribuyendo a estrategias de manejo sostenible del cultivo.
Materiales y métodos
Se utilizaron como agentes potenciales de biocontrol y PCV cepas de Bacillus cereus Bc28-2 (Bc28-2), B. cereus Bc28-5 (Bc28-5) y B. thuringiensis Bt24 (Bt24), aisladas de suelo en la región productora de chile jalapeño de Lázaro Cárdenas, Municipio de Meoqui, Chihuahua, y pertenecientes al Laboratorio de Microbiología Aplicada, Fitopatología y Fisiología Poscosecha (MAFFP) de la Facultad de Ciencias Agrotecnológicas de la Universidad Autónoma de Chihuahua (UACH) (
Se utilizaron las cepas de Fusarium oxysporum FM1, FM2, FL1, FL5, FL6 y FL2, pertenecientes al laboratorio MAFFP. Estas cepas fueron aisladas de plantas de chile jalapeño con sintomatología característica de la marchitez en la zona agrícola productora de chile del Distrito de Riego 005 de Delicias, Chihuahua. Para los ensayos se utilizaron semillas de chile jalapeño cultivar M (Southern Star Seeds S. de R.L. de C.V., México). Este cultivar es una variedad comercial común en la zona productora de chile de donde se obtuvieron los microorganismos.
Preparación del inóculo bacteriano. Las cepas de Bacillus se cultivaron en caldo nutritivo (CN; BD Difco Laboratories, Sparks Maryland, MD, USA) durante 72 h a 28 °C. Posteriormente, las suspensiones bacterianas fueron centrifugadas a 7,000 rpm durante 10 min a 4 °C, descartándose el sobrenadante. El pellet resultante se resuspendió en 20 mL de solución salina estéril al 0.85 %, ajustándose a una concentración de 1 x 10⁸ UFC mL-1 correspondiente a una densidad óptica de 0.4 a 600 nm (
La incidencia de la enfermedad se evaluó en porcentaje de semillas infectadas por caja y el índice de severidad (IS) se determinó a los 10 días después de la inoculación, utilizando la escala de
donde IS= índice de severidad, P= categoría de severidad, Q= número de plantas en la misma categoría, M=número total de plantas observadas, N=número máximo de la escala de valoración.
Para determinar el comportamiento de la enfermedad provocado por cada hongo en el transcurso del tiempo, se calculó el área bajo la curva del desarrollo de la enfermedad (ABCDE) con la fórmula propuesta por Saner y Finney (1997) y el método de
El ensayo se estableció bajo un diseño completamente al azar (DCA) con cuatro repeticiones por tratamiento (cajas Petri con semillas inoculadas). Los tratamientos fueron soluciones de esporas fúngicas y como control se empleó agua destilada estéril.
°C durante 48 h en oscuridad. Para evaluar la degradación de esporas fúngicas, se tomaron
10 μL de cada pocillo y se realizó el conteo directo de las esporas presentes mediante el uso de una cámara Neubauer.
El ensayo se estableció bajo un diseño factorial completamente al azar 4x6, evaluando dos factores: cepas bacterianas (Bc28-2, Bc28-5, Bt24 y CP) y hongos (FM1, FM2, FL1, FL5, FL6 y FL2), resultando en 24 tratamientos únicos correspondientes a cada combinación bacteria-hongo y como controles se emplearon solo las soluciones de esporas fúngicas. Todos los tratamientos tuvieron tres repeticiones.
El ensayo se estableció bajo un DCA con cuatro repeticiones por tratamiento. Los tratamientos fueron las soluciones bacterianas aplicadas a las charolas de plántulas de chile y como control se emplearon plántulas sin inocular.
| Clave | |
|---|---|
| Fusarium oxysporum FL2 | FL2 |
| Bacillus subtilis QST713 + F. oxysporum FL2 | CP/FL2 |
| B. cereus Bc28-2 + F. oxysporum FL2 | Bc28-2/FL2 |
| B. cereus Bc28-5 + F. oxysporum FL2 | Bc28-5/FL2 |
| B. thuringiensis Bt24 + F. oxysporum FL2 | Bt24/FL2 |
| Plantas sin tratamiento microbiano | Control |
Análisis estadístico. Los datos de los ensayos se sometieron a pruebas de Shapiro-Wilk y Levene para evaluar la normalidad y la homogeneidad de varianza, previo a su análisis estadístico.
Los datos de las pruebas de patogenicidad y virulencia in vitro se analizaron con una prueba no paramétrica de Kruskal-Wallis y con el test de Conover-Iman (p<0.05). Los resultados de la degradación de esporas fúngicas en la prueba de antagonismo in vitro, se analizaron mediante un análisis factorial para evaluar los efectos principales (bacterias y hongos) y sus interacciones sobre la degradación de esporas. Posteriormente se realizaron comparaciones múltiples mediante la prueba de Scott-Knott (p<0.05).
Los datos del ensayo de promoción del crecimiento de plántulas de chile jalapeño por Bacillus spp. y los datos de promoción del crecimiento en plantas en interacción con F. oxysporum en invernadero se analizaron con análisis de varianzas (ANOVA) seguido de pruebas de separación de medias de Tukey (p<0.05).
Los resultados del índice de severidad en la interacción entre las bacterias y F. oxysporum FL2 en invernadero se analizaron con la prueba de Kruskal-Wallis y el test Conover-Iman (p<0.05).
Se realizó un análisis multivariado de componentes principales (ACP) para evaluar la influencia de los tratamientos bacterianos en el biocontrol y promoción del crecimiento en las plantas de chile, en interacción con F. oxysporum FL2. Antes del ACP, se realizó la prueba de esfericidad de Bartlett (p<0.01) y se calculó el índice de Kaiser-Meyer-Olkin (KMO), considerando aceptable los KMOs superiores a 0.60 (
Resultados
| Aislado | TIncidencia (%) | TSeveridad (%) | TABCDEx |
|---|---|---|---|
| F. oxysporum FM1 | 100 | 95.8a | 30.2a |
| F. oxysporum FM2 | 100 | 89.6a | 27.3a |
| F. oxysporum FL1 | 100 | 89.6a | 27.4a |
| F. oxysporum FL5 | 100 | 81.3a | 21.0a |
| F. oxysporum FL6 | 100 | 87.5a | 23.7a |
| F. oxysporum FL2 | 100 | 95.8a | 30.5a |
| Control | 0 | 0b | 0 |
Promoción del crecimiento en plántulas de chile. La inoculación de bacterias mejoró significativamente el crecimiento de plántulas de chile en condiciones controladas a los 30 días (
| Parámetros | TControl | Bacillus subtilis PC | B. cereus Bc28-2 | B. cereus Bc28-5 | B. thuringiensis Bt24 | DMS |
|---|---|---|---|---|---|---|
| AP(cm) | 8.2±0.5bc | 6.6±0.7d | 8.9±1.1ab | 7.7±0.5cd | 9.8±0.2a | 1.1 |
| LR(cm) | 8.9±0.8a | 8.9±1.5a | 9.9±0.8a | 9.5±1.4a | 9.4±1.4a | 2.0 |
| DT (mm) | 2.2±0.1c | 2.0±0.3c | 2.8±0.3ab | 2.3±0.5bc | 2.8±0.3a | 0.5 |
| NH | 8.0±0.6b | 10.0±2.8ab | 12.0±1.3a | 9.3±1.5ab | 12.0±0.9a | 2.7 |
| AF (cm2 plant−1) | 51.1±7.1c | 48.9±2.1c | 115.1±6.7a | 76.3±8.5b | 103.6±10.7a | 20.5 |
| PFH (g) | 0.6±0.1c | 0.6±0.3c | 1.6±0.1a | 1.1±0.1b | 1.5±0.2a | 0.3 |
| PFT (g) | 0.3±0.03c | 0.3±0.1c | 0.7±0.2a | 0.5±0.1b | 0.7±0.1a | 0.2 |
| PFR (g) | 0.2±0.1c | 0.2±0.09c | 0.6±0.1a | 0.4±0.1b | 0.7±0.1a | 0.2 |
| PSH (g) | 0.1±0.01c | 0.1±0.03c | 0.3±0.1a | 0.2±0.03b | 0.3±0.1a | 0.1 |
| PST (g) | 0.03±0.01b | 0.02±0.01b | 0.1±0.01a | 0.03±0.01b | 0.1±0.01ª | 0.01 |
| PSR (g) | 0.02±0.01cd | 0.02±0.003d | 0.1±0.01b | 0.03±0.004c | 0.1±0.01a | 0.01 |
| Chl a (mg/g PF-1) | 1.5±0.1b | 1.7±0.1ab | 2.1±0.4a | 2.2±0.3a | 1.9±0.2ab | 0.6 |
| Chl b (mg/g PF-1) | 0.9±0.3a | 0.9±0.1a | 1.2±0.4a | 1.2±0.2a | 1.3±0.1a | 0.5 |
| Carotenoides (mg/g PF-1) | 0.2±0.1a | 0.2±0.03a | 0.2±0.2a | 0.2±0.1a | 0.1±0.1a | 0.2 |
Las plántulas inoculadas con Bt24 mostraron el mayor crecimiento en altura, al alcanzar un promedio de 9.8 cm, lo que representa un incremento del 19.5 % respecto al control (8.2 cm). En contraste, el tratamiento con PC resultó con la menor altura (6.6 cm), lo que refleja una reducción del 19.5 % en comparación con el control.
En cuanto a la longitud de raíz, los tratamientos no mostraron diferencias significativas en este parámetro, teniendo un promedio de 9.3 cm. El diámetro de tallo fue significativamente mayor en los tratamientos con Bc28-2 (2.8 mm) y Bt24 (2.8 mm), lo que corresponde a un aumento del 27.3 % respecto al control (2.2 mm).
El número de hojas fue significativamente mayor en plántulas tratadas con Bt24 (12) y Bc28-2 (12), lo que representa un incremento del 50 % respecto al control (8 hojas). Asimismo, el área foliar fue mayor en plántulas inoculadas con Bc28-2 y Bt24 (109.4 cm2 planta-1), lo que supone un aumento del 114.0 %, en comparación con el control (51.1 cm2 planta-1).
Respecto a la biomasa fresca y seca, el peso fresco de hoja fue significativamente mayor en los tratamientos Bt24 y Bc28-2 (1.6 g), lo que representa un incremento del 166.7 % respecto al control (0.6 g). De igual manera, el peso fresco de tallo fue mayor en Bt24 y Bc28-2 (0.7 g), con un aumento del 133.3 % en comparación con el control (0.3 g). El peso fresco de raíz también fue significativamente mayor con los tratamientos Bt24 y Bc28-2 (0.7 g), incrementándose un 250 % respecto al control (0.2 g).
El peso seco de hoja también mostró un aumento significativo con los tratamientos Bt24 y Bc28-2 (0.3 g), lo que representa un incremento del 200 % respecto al control (0.1 g). El peso seco de tallo mostró un aumento significativo con los tratamientos Bt24 y Bc28-2 (0.1 g), lo que representa un incremento del 233.3 % respecto al control (0.03 g). En el peso seco de raíz el tratamiento Bt24 (0.1 g) mostró el mayor incremento con un 400 % en comparación con el control (0.02 g).
En cuanto al contenido de pigmentos fotosintéticos, la clorofila fue significativamente mayor en los tratamientos Bc28-5 y Bc28-2 (2.2 mg/g PF-1), lo que representa un incremento del 46.7 % respecto al control (1.5 mg/g PF-1). En contraste, el contenido de clorofila b no mostró diferencias significativas entre tratamientos con un promedio de 1.1 mg/g PF-1. De igual manera, el contenido de carotenoides no mostró diferencias significativas entre tratamientos, teniendo un promedio de 0.2 mg/g PF-1.
Las plantas inoculadas con CP/FL2 presentaron la mayor altura, con un promedio de
26.4 cm, lo que representa un incremento del 20 % respecto al control (22.1 cm). En contraste, los tratamientos con FL2 y la interacción Bt24/FL2 registraron las menores alturas (14.4 y 13.0 cm, respectivamente), lo que reflejó una reducción del 34.8 y 41.2 %, respectivamente, en comparación con el control. En cuanto a la longitud de raíz, los tratamientos con interacción bacteria-patógeno mantuvieron una longitud similar al control (18.6 cm), a excepción de la interacción Bt24/FL2 y FL2, que mostraron una reducción del 40.5 % (11.6 cm) respecto al control. El diámetro de tallo fue significativamente mayor en el tratamiento Bc28-5/FL2 (6.1 mm), lo que representa un incremento del 35.6 % respecto al control (4.5 mm). Por otro lado, la interacción Bt24/FL2 presentó el menor diámetro de tallo (3.7 mm), lo que representa una reducción del 17.8 % respecto al control.
| Tratamientos | Control | FL2 | CP/FL2 | Bc28-2/FL2 | Bc28-5/FL2 | Bt24/FL2 | DMS |
|---|---|---|---|---|---|---|---|
| AP(cm) | 22.1±1.7b | 14.4±1.9cd | 26.4±1.0a | 23.1±1.3ab | 17.8±1.3c | 13.0±2.3d | 3.7 |
| LR (cm) | 19.4±1.7a | 11.5±0.8b | 18.4±1.4a | 17.9±1.5a | 18.1±1.4a | 11.6±0.6b | 2.9 |
| DT (mm) | 4.5±0.5bc | 5.1±0.7abc | 5.9±0.6ab | 4.7±0.5abc | 6.1±1.0a | 3.7±0.7c | 1.6 |
| NH | 35.5±3.3a | 20.3±2.8b | 35.0±5.7a | 25.0±2.2b | 37.3±3.3a | 19.0±2.6b | 7.9 |
| AF(cm2 planta−1) | 516.3±88.7ab | 196.1±21.0c | 564.0±77.0a | 405.4±58.7b | 583.8±79.5a | 252.2±19.2c | 143.2 |
| PFH (g) | 10.5±0.9a | 3.0±1.0d | 9.7±0.9ab | 6.5±0.8c | 7.5±1.7bc | 3.6±0.4d | 2.3 |
| PFT (g) | 6.9±1.2abc | 3.2±1.0cd | 10.0±2.8a | 5.6±1.2bcd | 9.4±1.5ab | 3.0±0.9d | 3.8 |
| PFR (g) | 4.0±0.5ab | 1.6±0.4c | 4.8±0.7a | 3.1±0.7b | 4.3±0.5ab | 1.1±0.4c | 1.2 |
| PSH (g) | 1.9±0.2a | 0.6±0.3c | 1.6±0.1ab | 0.8±0.1c | 1.4±0.2b | 0.5±0.1c | 0.4 |
| PST (g) | 0.8±0.3abc | 0.3±0.2c | 1.0±0.3ab | 0.5±0.1abc | 1.0±0.3a | 0.5±0.2bc | 0.5 |
| PSR (g) | 0.5±0.1ab | 0.2±0.03c | 0.5±0.1ab | 0.4±0.1b | 0.5±0.04a | 0.1±0.04c | 0.1 |
| VR (cm3) | 5.4±0.6a | 1.5±0.6c | 4.8±0.7ab | 3.9±0.5b | 4.1±0.6ab | 1.1±0.6c | 1.4 |
| Chl a (mg/g PF-1) | 2.0±0.5a | 1.8±0.4a | 2.0±0.4a | 1.8±0.4a | 2.0±0.4a | 1.8±0.3a | 0.9 |
| Chl b (mg/g PF-1) | 0.9±0.3a | 1.0±0.3a | 1.2±0.3a | 1.0±0.1a | 1.2±0.3a | 1.0±0.4a | 0.7 |
| Carotenoides (mg/g PF-1) | 0.3±0.1a | 0.1±0.1a | 0.2±0.1a | 0.2±0.1a | 0.1±0.03a | 0.3±0.1a | 0.2 |
El número de hojas no mostró diferencias significativas en los tratamientos CP/FL2 y Bc28-5/FL2 en comparación con el control, teniendo un promedio de 35.9 hojas. Sin embargo, las interacciones Bc28-2/FL2 y Bt24/FL2 y el patógeno FL2 mostraron una reducción significativa, con un promedio de 21.4 hojas, lo que representa una reducción del 39.6 % respecto al control (35.5 hojas). El área foliar fue significativamente mayor en los tratamientos Bc28-5/FL2 y CP/FL2 (573.9 cm3). En contraste, los tratamientos Bt24/FL2 y FL2 presentaron la menor área foliar (224.2 cm3), lo que representa una reducción del 43.4 % en comparación con el control (516.3 cm3).
Respecto a la biomasa fresca, el peso fresco de hoja, solo mostró un valor similar al control, el tratamiento CP/FL2 (9.7 g). El tratamiento Bt24/FL2 y el patógeno FL2 presentaron el menor peso fresco de hoja (3.3 g), lo que representa una disminución del
68.6 % en comparación con el control (10.5 g). En cuanto al peso fresco de tallo y raíz, solo los tratamientos CP/FL2 y Bc28-5/FL2 mantuvieron valores similares al control (9.7 y 4.55 g, respectivamente), mientras que Bt24/FL2 y FL2 registraron el menor peso fresco de tallo (3.1 g) y raíz (1.35 g), lo que representa una reducción del 44.9 y 66.3%, respectivamente.
En la biomasa seca, el peso seco de hoja no mostró incrementos significativos en ninguno de los tratamientos, excepto en CP/FL2, que fue igual al control (1.6 g). El menor peso seco de hoja se observó en Bc28-5/FL2, Bt24/FL2 y FL2 (0.6 g), lo que representa una disminución del 66.7 % respecto al control (1.9 g). En relación al peso seco de tallo, la mayoría de los tratamientos no mostraron diferencias significativas (0.8 g), excepto Bt24/FL2 y FL2, que redujeron el parámetro en un 50 %. En el caso del peso seco de raíz, solo CP/FL2 y Bc28-5/FL2 mantuvieron valores similares al control (0.5 g), mientras que Bt24/FL2 y FL2 presentaron el menor peso seco de raíz (0.15 g), lo que representa una reducción del 70 %.
El volumen radicular no mostró incrementos significativos, manteniéndose igual al control en los tratamientos CP/FL2 y Bc28-5/FL2 (4.5 cm3). Los tratamientos con menor volumen radicular fueron Bt24/FL2 y FL2 (1.3 cm3), con una reducción del 75.9 % respecto al control (5.4 cm3). En cuanto al contenido de pigmentos fotosintéticos, no se observaron diferencias significativas entre los tratamientos en el contenido de clorofila a (2.28 mg/g PF-1), clorofila b (1.26 mg/g PF-1) y carotenoides (0.24 mg/g PF-1).
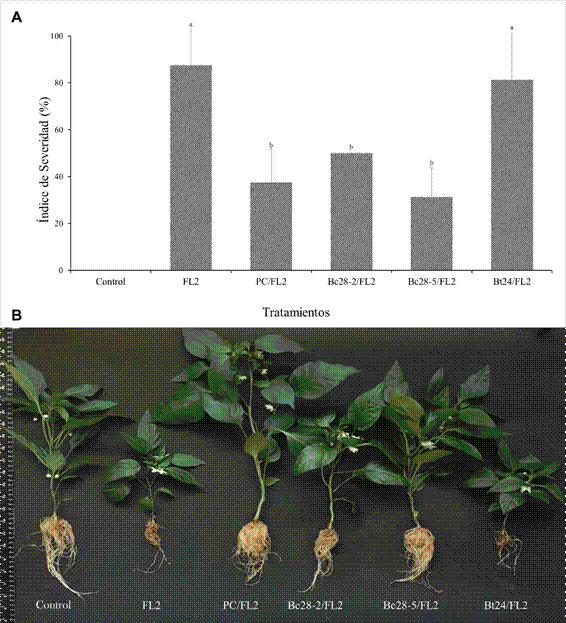
Los resultados de la severidad indican diferencias significativas entre los tratamientos (
87.5 %, significativamente mayor que el resto de los tratamientos. En contraste, los tratamientos con interacción bacteria-patógeno PC/FL2, Bc28-2/FL2 y Bc28-5/FL2 redujeron el IS en 60.4 % en comparación con el patógeno (FL2). En contraste, el tratamiento Bt24/FL2 no mostró una reducción significativa del IS con un 81.3 %, siendo igual al patógeno.
El desarrollo de las plantas en interacción con el patógeno también varió según el tratamiento aplicado (
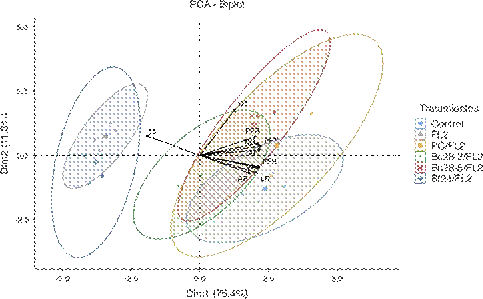
El análisis de componentes principales permitió visualizar la variabilidad en la respuesta del desarrollo de las plantas de chile jalapeño a los diferentes tratamientos de biocontrol de Fusarium (
75.4 % de la variabilidad, mientras que el segundo componente (Dim 2) representó el
11.3 %, acumulando el 86.7 % de la variabilidad total. Se observó que el patógeno y el tratamiento Bt24/FL2 exhiben patrones de comportamiento similares que muestran una relación negativa con la mayoría de los parámetros vegetativos, pero una relación positiva con el IS, lo que indica que Bt24 no contribuyó al control de la enfermedad. En contraste, se identifica una sólida interrelación positiva entre los tratamientos bacterianos PC/FL2, Bc28-2/FL2 y Bc28-5/FL2, y el control en parámetros vegetativos, junto con una relación negativa con el IS, evidenciando un control efectivo de la enfermedad y una promoción del crecimiento por parte de las bacterias.
Discusión
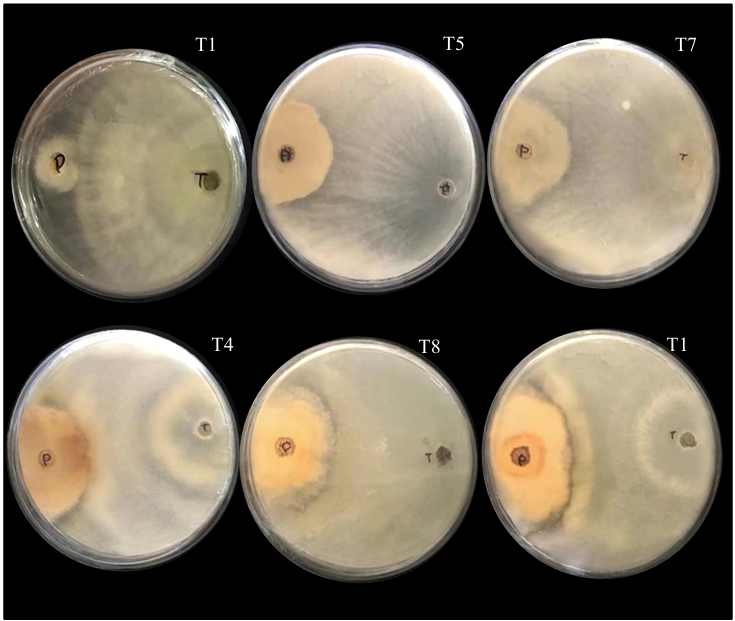
Los resultados de esta investigación muestran que la inoculación de cepas nativas de Bacillus cereus (Bc28-5 y Bc28-2) y B. thuringiensis (Bt24) en plantas de chile jalapeño bajo condiciones controladas tiene un impacto significativo en el crecimiento vegetativo y en la reducción de la severidad de la marchitez causada por Fusarium oxysporum. Además, se evidenció la capacidad de algunas cepas de Bacillus para degradar esporas de Fusarium de manera efectiva en pruebas in vitro. Sin embargo, se observó que la eficacia varió según la cepa bacteriana y la cepa de hongo.
Las pruebas de patogenicidad y virulencia confirmaron que todas las cepas de Fusarium fueron patógenas, causando una incidencia de la enfermedad del 100 % y una severidad promedio del 89.9 %. Esto confirma la virulencia de las cepas evaluadas sobre las plántulas de chile jalapeño en condiciones in vitro. Los síntomas observados incluyeron necrosis en la radícula y el hipocotilo, lo que concuerda con estudios previos sobre la capacidad de Fusarium oxysporum de afectar el sistema radicular de cultivos como el chile jalapeño (
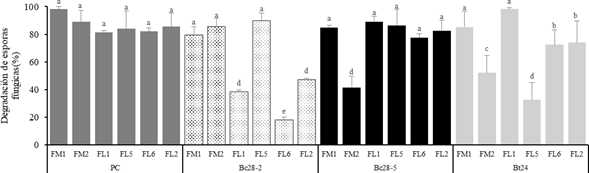
La capacidad antagonista de las cepas de Bacillus en la degradación de esporas de Fusarium varió significativamente. La cepa comercial PC mostró el porcentaje de degradación de esporas (86.7 %) en comparación con las cepas nativas. El antagonismo también fue evidente con Bc28-5, mientras que Bt24 mostró una menor efectividad, especialmente frente a las cepas de Fusarium más resistentes (FL5 y FM2). El mecanismo de degradación puede estar asociado con la producción de lipopéptidos antifúngicos, ya que estudios previos han demostrado que B. cereus y B. thuringiensis son capaces de controlar a F. oxysporum f sp. lycopersici mediante la producción de péptidos antimicrobianos (
En términos de promoción del crecimiento, Bt24 mostró el mayor aumento en altura y biomasa de plántulas. Las cepas Bc28-2 y Bc28-5 también promovieron el crecimiento de manera significativa, aumentando el área foliar, peso fresco y seco de plantas. Esto podría estar asociado con los mecanismos de promoción del crecimiento vegetal mostrados por B. cereus en estudios realizados por
Por otra parte, el biocontrol de Fusarium en plantas de chile jalapeño en condiciones de invernadero, mostró que los tratamientos con B. cereus (Bc28-2 y Bc28-5), redujeron significativamente la severidad de la enfermedad causada por Fusarium FL2, en comparación con el tratamiento solo con el patógeno. Estos resultados podrían deberse a que B. cereus ha demostrado reducir la severidad de enfermedades fúngicas mediante compuestos antimicrobianos como los mencionados anteriormente y la inducción de resistencia sistémica (ISR) en plantas (
B. cereus MH778713 puede ayudar contra F. oxysporum en tomate, mediante la ISR (
El crecimiento observado durante la interacción entre Fusarium spp. FL2 y B. cereus puede deberse a lo reportado por
Los resultados sugieren que el uso de las cepas específicas de Bacillus puede contribuir al manejo integrado de Fusarium en sistemas agrícolas, mejorando el crecimiento de las plantas mientras reduce la severidad de la enfermedad. Esto abre la posibilidad de desarrollar formulados específicos, especialmente con cepas como Bc28-2 y Bc28-5, para su aplicación en condiciones de invernadero y campo.
Conclusiones
El presente estudio demostró que todas las cepas de Fusarium oxysporum aisladas de suelo son patógenas de plántulas de chile jalapeño, lo que representa una incidencia del 100 % y una severidad promedio del 89.9 %. El progreso de la enfermedad indicó una rápida progresión en condiciones controladas.
El biocontrol in vitro mostró que B. subtilis (PC) presentó la mayor degradación de esporas de F. oxysporum (86.7 %), seguido de B. cereus (84.2 %), mientras que B. thuringiensis fue menos efectiva. Esto sugiere que el efecto antagonista depende de la cepa antagónica y patógeno evaluado.
El biocontrol en invernadero con Bacillus spp. mostró variabilidad en la efectividad según la cepa utilizada, B. cereus Bc28-2 y Bc28-5 redujeron la severidad de la enfermedad en un 60.4 % y promovieron el crecimiento de plantas de chile. En contraste, Bt24 no logró reducir la enfermedad, con resultados similares al tratamiento con el patógeno. Sin embargo, Bt24 y Bc28-2 promovieron el crecimiento vegetal de las plántulas de chile.
Estos resultados indican el potencial de Bacillus cereus como bioinoculante en chile jalapeño, aunque es necesario validar su efectividad en campo y explorar su integración en estrategias de manejo agrícola sostenible.