Introducción

Introducción

Los cultivos agrícolas son vulnerables a diversos ataques de fitopatógenos, los cuales generan grandes pérdidas en el rendimiento y la productividad. Una vez que el patógeno se ha establecido en las áreas cultivadas, es difícil erradicarlo y en general se implementan medidas preventivas para evitar la propagación de los patógenos (Catara y Bella, 2020). Comúnmente, el uso de bactericidas y antibióticos con formulaciones químicas que contienen cobre resultan ineficaces debido a la acumulación de productos químicos en el ambiente y la resistencia, por lo que estas alternativas son poco rentables, provocan contaminación de suelos-aguas y resultan poco efectivas. Esto provoca pérdidas significativas en el rendimiento de cultivos de gran valor económico, afectando negativamente la agricultura, la economía y la seguridad alimentaria (Khan y Ahma, 2024). Dentro de estos patógenos se encuentran las bacterias Pseudomonas syringae y Xanthomonas euvesicatoria, ambas especies son Gram negativas e incluyen diversos patovares con la capacidad de infectar un grupo característico de plantas hospedantes, siendo capaces de superar múltiples defensas del huésped en diferentes etapas de la infección, multiplicarse y causar enfermedades, principalmente por poseer el sistema de secreción tipo III, el cual es de gran relevancia en términos de virulencia (Cardoso et al., 2020). Estos fitopatógenos afectan a cultivos como el jitomate (Solanum lycopersicum) y chile (Capsicum annuum), mostrando síntomas en hojas, frutos y tallos por medio de halos cloróticos (amarillos) y/o manchas necróticas, así como provocar la caída prematura de hojas, afectando el crecimiento y desarrollo de la planta e inclusive la reducción de la fotosíntesis (Fang y Yang, 2013; Cardoso et al., 2020). P. syringae incluye alrededor de 60 patovares con una variedad de hospedantes; sin embargo, infecta al tomate (P. syringae pv. tomato) y es conocida por causar la enfermedad de las pecas o tizón bacteriano (Fang y Yang, 2013). Por otro lado, Xanthomonas causan numerosas enfermedades en más de 400 especies vegetales huésped, siendo patógenos dominantes de los cultivos de jitomate y chile en todo el mundo por la enfermedad de la mancha foliar o mancha bacteriana (Larrahondo et al., 2022; Cardonso et al., 2020). Ambas especies bacterianas comparten el tipo de colonización, por lo que inicialmente crecen de manera epífita, colonizando la superficie de plantas sanas antes de entrar en el tejido de las hojas a través de estomas o heridas y una vez en el apoplasto (fase endofítica), suprimen las respuestas de defensa básicas del hospedero mediante la introducción de proteínas de virulencia o efectores directamente en las células vegetales (Xin et al., 2018). Muchas de estas proteínas efectoras inhiben las vías inmunes del huésped, mientras que otras modifican la señalización y la fisiología celular de diferentes maneras, incluyendo la supresión de la expresión de genes de inmunidad, haciendo al tejido vegetal más susceptible al crecimiento del fitopatógeno y favoreciendo el desarrollo de enfermedades (Raffeiner et al., 2022; Zhang et al., 2022). Sin embargo, los elicitores o inductores pueden activar respuestas defensivas y adaptativas en las plantas cuando se administran en cantidades reducidas, estimulando la producción de metabolitos secundarios, permitiendo a las plantas desarrollar mecanismos de tolerancia para enfrentar entornos adversos y experimentar cambios mínimos en su estructura física (Caicedo et al., 2021). Estos compuestos de origen biológico promueven la salud vegetal, lo que puede mejorar el desarrollo, crecimiento y producción de las plantas, lo que es benéfico para la agricultura tanto en la fase pre como post cosecha, en algunos casos, pueden transmitir la resistencia a nuevas generaciones de plantas (Todd et al., 2022, 2023). Por lo que, en la actualidad el uso de proteínas inductoras para el control de enfermedades en cultivos agrícolas son una alternativa para implementar una estrategia ecológica logrando reducir los peligros relacionados con los pesticidas químicos (Khan y Ahma, 2024).

Las proteínas harpinas (Hrp) según Liu et al. (2020) y Joshi et al. (2022) son

codificadas por los genes hrp (respuesta de hipersensibilidad y patogenicidad) de bacterias Gram negativas y liberadas a través del sistema de secreción tipo III durante las interacciones entre patógenos y plantas. Estas proteínas tienen varias propiedades en común (ricas en glicina, libres de cisteína, son ácidas y termoestables) y se clasificadas en cinco grupos según la similitud de proteínas y las estructuras de dominio (grupo HrpN, HrpZ1, HrpW1, Hpa1). Dada la importancia de las proteínas Hrp en la respuesta de las plantas a las infecciones bacterianas, se ha desarrollado un método para inducir, aislar y seleccionar estas proteínas de bacterias fitopatógenas. Valerio-Landa et al. (2021a) demostraron que el uso de estas proteínas puede reducir la formación de lesiones necróticas en el tejido foliar tratado en plantas de jitomate. Valerio-Landa (2021) y Valerio-Landa et al. (2021b) avanzaron en esta línea de investigación desarrollando un método específico para inducir, aislar y seleccionar proteínas Hrp de Xanthomonas, utilizando tejido vegetal liofilizado de plantas hospederas como la única fuente de carbono y nutrientes según la solicitud de patente MX/a/2020/013638 (Valerio-Landa et al., 2020). Por lo anterior, el objetivo de este trabajo fue evaluar la efectividad biológica de inductores proteicos Hrp de X. euvesicatoria (cepa BV801) producidos en planta piloto (fermentación sólida), para el control de la peca bacteriana en plantas de jitomate y la mancha bacteriana en plantas de chile en condiciones controladas de invernadero. La aplicación de estos inductores podría ofrecer una solución práctica para la gestión de enfermedades bacterianas en cultivos agrícolas, aprovechando las propiedades únicas de las proteínas Hrp.

Materiales y Métodos

Materiales y Métodos

Establecimiento del experimento

Establecimiento del experimento

Material vegetal. 166 plantas de chile (C. annuum) ancho variedad San Luís (Pacific Seed Company©) y 55 de jitomate (S. lycopersicum) variedad Rio Grande (CIIASA Seeds©) fueron colocadas en macetas con capacidad de 2 L, con una mezcla de sustrato (55 % arena, 40 % suelo y 5 % de agrolita) previamente esterilizado en autoclave (120 °C / 103421.4 Pa / 6 h), se mantuvieron en condiciones de invernadero.

Material microbiológico. Las bacterias fitopatógenas BV801 y BV865, aisladas simultáneamente del tejido enfermo de plantas de chile afectadas por mancha bacteriana (López-Vielma et al., 2016) y determinadas como causantes de la enfermedad (Rico-Aguilar et al., 2019), estas cepas bacterianas fueron obtenidas de la colección de microorganismos del Laboratorio de Fitopatología del Centro de Investigación y Asistencia en Tecnología y Diseño del Estado de Jalisco, A.C. (CIATEJ). Las bacterias fueron reactivadas de crioconservación de -80 °C en medios de cultivó líquido. Para X. euvesicatoria cepa BV801 y BV865 se utilizó el medio NYG (0.5

% peptona, 0.3 % extracto de levadura, 2 % glicerol, 7.0 pH, agar 1.6 % cuando se requirió). Por otro lado, P. syringae pv. tomato cepa DC3000, se colocó en medio líquido King (KB) (2 % peptona, 0.8 % K2HPO4 [1 M], 0.6 % MgSO4•7H2O [1 M],

1.2 % glicerol, 7.2 pH, agar 1.6 % cuando se requirió). Posteriormente, los medios

se incubaron a 28 °C, durante 24 h, en oscuridad y en agitación a 250 rpm. Las bacterias fueron cultivadas en medio líquido por toda la noche (18-20 h), después fueron cosechadas por centrifugación a 10000 rpm por 5 min. Posteriormente, se eliminó el medio de cultivo sobrenadante y se realizó un lavado con agua desionizada estéril, repitiendo el proceso de centrifugación y de lavado por tres veces. Posteriormente, se realizó el ajuste de la concentración de las células bacterianas a una densidad óptica (OD) de 600 nanómetros (nm), OD600 de 1.0 (OD600=1.0≈1x10⁸ UFC mL-1) con espectrofotómetro (Eppendorf®, BioPhotometer).

Producción de proteínas Hrp en planta piloto: Las proteínas Hrp se produjeron en planta piloto con base a la metodología de Valerio-Landa et al. (2021a), extrapolado para la aplicación en un biorreactor de fermentación sólida tipo bandeja (45x30x3.5 cm). La bacteria X. euvesicatoria cepa BV801 previamente crecida en medio rico NYG y ajustada a OD = 1.0 (≈1x10⁸ UFC mL-1), se colocaron 2.5 mL de solución bacteriana a cada bandeja para posteriormente sembrarlas por extensión en el medio de inducción (0.2 % de tejido pulverizado de C. annuum, 1.5

% de agar grado alimenticio, pH de 7.0). La bandeja fue cerrada con papel Kraft y sellada con cinta; se esterilizó la bandeja con el medio de inducción; posteriormente de la inoculación bacteriana se colocaron en el biorreactor de fermentación sólida, se incubo a 28 °C +/-3 °C en oscuridad. La cosecha de las células bacterianas se realizó a las 48 h mediante el raspado y la recolección de los tapetes bacterianos con agua desionizada estéril. Finalmente se realizaron dos lavados con agua desionizada estéril para eliminar el xantano a 10000 rpm por 30 min a 4 °C. Se realizó la lisis bacteriana por medio de sonicación en un tiempo de exposición de 15 min con un procesador ultrasónico de líquidos (Sonics VCX 130), usando una frecuencia de 20 Khz, una amplitud del 40 %, ciclos de 30 s encendido / 30 s apagado a 130 W, colocando las muestras en hielo. Posteriormente a la lisis bacteriana se continuó con el protocolo para extracción de proteínas de acuerdo con Valerio-Landa et al. (2021a); las proteínas extraídas constituyeron el producto denominado BioFensa (solicitud de patente de invención MX/a/2020/013638; Valerio-Landa et al., 2023).

Diseño experimental. Para evaluar la efectividad biológica de BioFensa (BF), se probó contra la cepa DC3000 de P. syringae pv. tomato en plantas de tomate (experimento 1); y en contra de X. euvesicatoria (cepas BV801 y BV865) en plantas de chile (experimentos 2 y 3). Se realizaron tres experimentos en diseños experimentales completamente al azar, cada uno con cinco tratamientos (11 repeticiones por tratamiento): (1) planta enferma (PE, con inóculo bacteriano); (2) planta sana (PS, sin inóculo bacteriano); (3) un inductor químico comercial (Actigard®, 0.003 g mL−1); (4) un inductor de proteínas Harpin αβ comercial (Messengar Gold®, 0.003 g mL−1); (5) BioFensa (1 μg mL-1). Por otro lado, para determinar la dosis óptima de aplicación de BioFensa contra X. euvesicatoria cepa BV801 en plantas de chile (experimento 4), se hizo un bioensayo en un diseño experimental completamente al azar con siete tratamientos (ocho repeticiones): (1) planta enferma (PE); (2) planta sana (PS); (3) un inductor químico (Actigard®); (4) un inductor de proteínas Harpin αβ (Messengar Gold®), BioFensa a 0.01 (5); 0.1 (6) y 1 (7) µg mL-1 (Cuadro 1). Para todos los tratamientos de inducción (Actigard®, Messenger Gold®, BioFensa), en todos los casos, se aplicó 24 h antes de la infección con las bacterias. Los tratamientos fueron aplicados con un atomizador manual 3 mL en todas las hojas de las plantas (adaxial y abaxial).

Controles Inductor
Sano Enfermo Actigard® Messenger Gold® BioFensa
Ingrediente Sin fitopatógeno Con fitopatógeno Acibenzolar- S-metilo Harpinas comerciales Inductor proteico de X. euvesicatoria
Dosis (3 mL/planta) No aplica 108 UFC/mL 0.0003 g/mL 0.03 g/mL 0.01, 0.1, 1 μg/mL
Cuadro 1: Composición de los tratamientos del experimento 4 para determinar el efecto de distintas dosis de los inductores proteicos bajo condiciones de invernadero para plantas de chile.

Variables de respuesta fitopatológicas. Para la evaluación de la severidad de la enfermedad, 30 días después de iniciado el experimento se registraron las variables de respuesta por medio de la cuantificación de manchas: número de manchas cloróticas y necróticas; así como el número de las manchas totales que se observaron en las hojas con síntomas de enfermedad.

Análisis estadístico de datos. Los datos obtenidos de las variables de respuesta se analizaron estadísticamente mediante un análisis de varianza de una vía y pruebas LSD, todas las pruebas estadísticas fueron evaluadas a un nivel de significancia del 5 % (p≤0.05). La información fue procesada mediante el paquete para análisis estadístico Statgraphics Centurion ver. XV.II (http://www.statgraphics.com/).

Resultados y Discusión

Resultados y Discusión

<bold>Efectividad biológica de BioFensa para el control de <em>P. syringae</em> pv. <em>tomato</em>, cepa DC3000</bold>

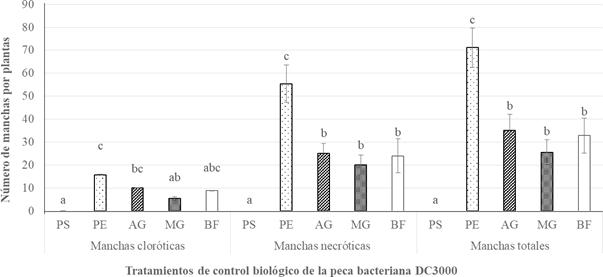
Los resultados indican que la sintomatología de la peca bacteriana (P. syringae pv. tomato, cepa DC3000) en plantas de jitomate, evaluada mediante el número de hojas con manchas necróticas y cloróticas, así como el número de manchas totales por planta (Figura 1), las cuales disminuyeron significativamente con la aplicación de BioFensa (1 μg mL−1). En comparación con las plantas enfermas no tratadas, el tratamiento con BioFensa previno la aparición de manchas en un 53 % (LSD, p≤0.05). Específicamente, el número promedio de manchas totales por planta tratada fue de 15±3, en comparación con 32 ± 4 en el control enfermo (PE).

Figura del artículo
Figura 1: Efectividad biológica de distintos tratamientos biológicos para el control de pv. , cepa DC3000 (peca bacteriana) en plantas de jitomate en condiciones de invernadero, según la cantidad de manchas necróticas, cloróticas y totales por planta. PS=Planta sana; PE=Planta enferma; AG=Actigard (0.003 g mL); MG= Messenger Gold (0.003 g mL); BF= BioFensa (1 μg mL). Letras distintas dentro de cada variable de repuesta indican diferencias significativas de acuerdo con la prueba LSD (). Las barras en el rectángulo indican ± el error estándar.

<bold>Efectividad biológica de BioFensa para el control de <em>X. euvesicatoria</em> (cepa BV801 y BV865)</bold>

Por otro lado, para la mancha bacteriana en plantas de chile ancho tratadas con BioFensa (1 μg mL−1) retadas con la cepa BV865 de X. euvesicatoria (Figura 2), mostraron menor número de manchas totales similares a los inductores de resistencia comercial (Messenger Gold® y Actigard®); de manera específica las plantas tratadas con BioFensa mostraron una disminución significativa (LSD, p≤0.05) del 60

% en la cantidad de manchas totales, en comparación con el control enfermo (PE). Los análisis de varianza y las pruebas LSD (p≤0.05) indican que el tratamiento con BioFensa previene el grado de enfermedad al mostrar menor aparición de síntomas de manchas en el tejido foliar como las manchas cloróticas hasta la presencia de necrosis mediante la visualización como se indica en Rico-Aguilar et al. (2019); por lo cual la aplicación de proteínas Hrp (BioFensa) previene significativamente la incidencia de P. syringae pv. tomato, DC3000 (peca bacteriana) en plantas de tomate y de X. euvesicatoria, cepa BV865 (mancha bacteriana) en plantas de chile. La concentración de 1 µg mL-1 de BioFensa fue suficiente para disminuir el nivel de manchas de las enfermedades, lo cual podría atribuirse a la actividad de los patrones moleculares asociados a patógenos (PMAP) presentes en las proteínas Hrp de BioFensa. Estos resultados son consistentes con estudios previos de Valerio-Landa et al. (2021b) que sugieren que las proteínas Hrp pueden ser reconocidas por los receptores de inmunidad de las plantas, desencadenando una respuesta de

defensa robusta por parte de las plantas.
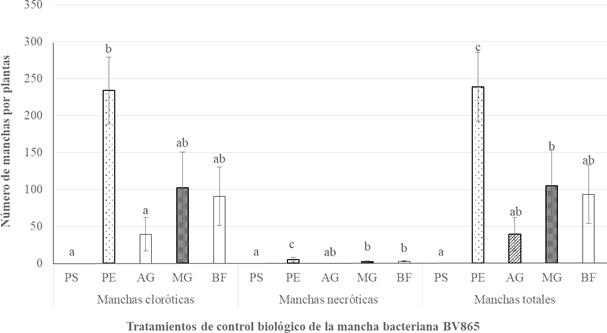
Figura del artículo
Figura 2: Efectividad biológica de distintos tratamientos biológicos para el control de , cepa BV865 en plantas de chile ancho variedad San Luis en condiciones de invernadero, según la cantidad de manchas necróticas, cloróticas y totales por planta. PS=Planta sana; PE=Planta enferma; AG=Actigard (0.003 g mL); MG= Messenger Gold (0.003 g mL); BF= BioFensa (1 μg mL). Letras distintas dentro de cada variable de repuesta indican diferencias significativas de acuerdo con la prueba LSD (). Las barras en el rectángulo indican ± el error estándar.

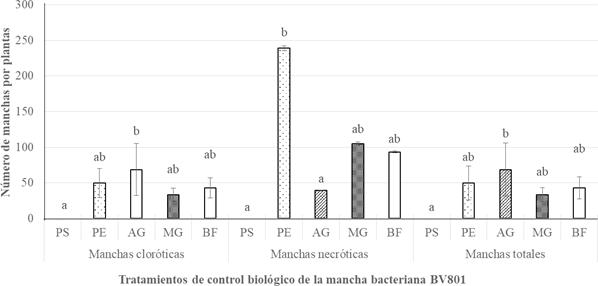
En la evaluación de la cepa BV801 de X. euvesicatoria en plantas de chile tratadas con BioFensa (1 μg mL−1), se observó una reducción de apenas un 13 % en el número de manchas totales, lo cual no fue estadísticamente significativa (LSD, p≤0.05) con el tratamiento enfermo (PE) (Figura 3). Esto sugiere que la concentración de 1 μg mL−1 de BioFensa pudo no haber sido óptimo para el caso de la cepa BV801, en comparación con la cepa BV865 (Figura 2). La variabilidad en la eficacia observada podría deberse a la virulencia intrínseca de la cepa BV801 y la saturación de los receptores de PMAP en las plantas, lo que concuerda con estudios que indican que concentraciones elevadas de inductores pueden llevar a la desensibilización de los receptores de defensa (Boller y Felix, 2009; Abdul et al., 2020). Al comparar los diferentes tratamientos, se observó una mayor disminución de manchas foliares en plantas de jitomate con la cepa DC3000 y en plantas de chile con la cepa BV865. Esto ya que la cepa BV801 presentó un mayor grado de virulencia de la enfermedad; de igual manera al comparar con el efecto de los inductores comerciales se observó un comportamiento similar entre Messenger Gold® y BioFensa, con relación a las manchas necrótica (Figura 3). Además, el tratamiento con Actigard® mostró un mayor grado de enfermedad que el control enfermo (PE) con relación a las manchas totales (Figura 3). Aquellas plantas pretratadas con BioFensa (1 μg mL−1) mostraron el mismo grado de enfermedad que aquellas plantas de control enfermo (PE); este resultado podría deberse a que la capacidad de las plantas de chile para percibir inductores PMAP y activar estado fisiológico de resistencia (EFR), pareció verse afectada por altas concentraciones de las proteínas Hrp durante este trabajo de investigación; para probar esta hipótesis se realizó un experimento con el fin de evaluar el efecto de distintas dosis de BioFensa en plantas de chile infectadas con la cepa BV801 de X. euvesicatoria (Figura 4).

Figura del artículo
Figura 3: Efectividad biológica de distintos tratamientos biológicos para el control de , BV801, en plantas de chile ancho variedad San Luis en condiciones de invernadero, según la cantidad de manchas necróticas, cloróticas y totales por planta. PS=Planta sana; PE=Planta enferma; AG=Actigard (0.003 g mL); MG= Messenger Gold (0.003 g mL); BF= BioFensa (1 μg mL). Letras distintas dentro de cada variable de repuesta indican diferencias significativas de acuerdo con la prueba LSD (). Las barras en el rectángulo indican ± el error estándar.

Figura del artículo
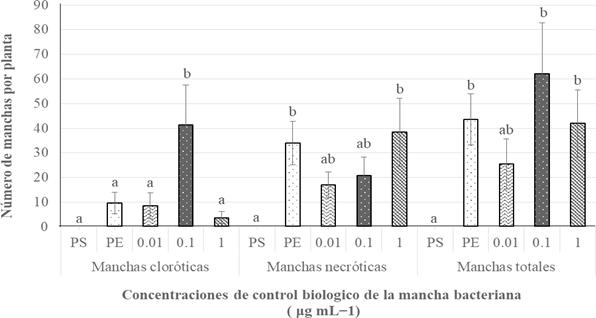
Figura 4: Efecto de distintas dosis de BioFensa (0.01, 0.1 y 1 μg mL) sobre el control de , cepa BV801 en plantas de chile ancho variedad San Luís en condiciones de invernadero. PS=Planta sana; PE=Planta enferma. Letras distintas indican dentro de cada variable de respuesta diferencias significativas de acuerdo con la prueba LSD (). Las barras en el rectángulo indican ± el error estándar.

Las plantas tratadas con diferentes concentraciones de soluciones proteicas (0.01, 0.1 y 1 μg mL−1) para el control de X. euvesicatoria, cepa BV801 en plantas de chile ancho (Figura 4) mostraron pocos síntomas de la enfermedad cuando se utilizó la concentración de 0.01 μg mL−1 con relación a las manchas totales en las hojas, logrando un 41 % de disminución de la enfermedad; para las manchas necróticas se encontró una disminución del 51 %, para la concentración de 0.1 μg mL−1 se encontró un 38 % y a 1 μg mL−1 no hubo diferencias significativas en comparación con el control enfermo (-15 % del tratamiento 1 μg mL−1 en comparación con PE) por lo que no se registró efectividad biológica, provocando con esta concentración un efecto negativo en la planta (Figura 4, manchas necróticas). Al respecto, Zehra et al. (2021) mencionan que la efectividad de los inductores puede variar según una serie de factores, incluido el tipo de inductor, la especie de planta y las condiciones ambientales. Lo anterior concuerda con los resultados de la Figura 4, por lo que podría deberse a que los inductores o efectores en las plantas funcionan mejor a menores concentraciones debido a que las plantas tienen un número limitado de receptores, y a bajas concentraciones, estos permiten activar la respuesta defensiva adecuada. A concentraciones más altas, los receptores se saturan y pueden activar mecanismos de regulación negativa, causar toxicidad, desorganizar la señalización y desviar recursos energéticos de otros procesos vitales como el crecimiento generando un desgaste energético (Boller y Felix, 2009; Abdul et al., 2020).

Los hallazgos de este estudio muestran que una concentración de 0.01 o 0.1 µg mL-1 de BioFensa fue suficiente para inducir el EFR y reducir significativamente la severidad de la peca y la mancha bacterianas en plantas de jitomate y chile, respectivamente (LSD, p≤0.05). Esta respuesta puede estar relacionada con la actividad de los patrones moleculares asociados a patógenos (PMAP) presentes en las proteínas Hrp, que son reconocidos por los receptores de inmunidad innata de las plantas, activando así las respuestas de defensa. Estudios previos como los de Boller y Felix (2009), han demostrado que proteínas similares, como la flagelina (flg22) e inclusive péptidos como la sistemina (18 aminoácidos), pueden inducir respuestas defensivas en concentraciones subnanomolares. Diversos estudios, incluyendo la revisión de Zehra et al. (2021) han demostrado que los elicitores microbianos, como lo son las proteínas y péptidos, pueden desencadenar la Resistencia Sistémica Inducida (RSI, mediada por ácido jasmónico y etileno). Este fenómeno, caracterizado por un estado de alerta generalizado y duradero, prepara a la planta para responder de manera más rápida y efectiva a un amplio espectro de patógenos. La activación de la RSI es desencadenada por la percepción de elicitores, que actúan como señales de peligro y ponen en marcha la maquinaria de defensa de la planta (PMAP) al ser reconocidas por receptores específicos en la superficie de las células vegetales, iniciando una cascada de señalización intracelular que culmina en la activación de genes de defensa, así como al establecimiento de resistencia local y sistémica, y la producción de proteínas efectoras. En este contexto, la proteína harpina Hpa1 ha demostrado tener varios efectos benéficos en las plantas, incluyendo la promoción del crecimiento y la inducción de resistencia a fitopatógenos. Investigaciones previas como las de Wang et al. (2020) revelaron que Hpa1 puede mitigar significativamente los síntomas del virus del mosaico del tabaco (TMV) en Pinellia ternata, sugiriendo una estimulación efectiva de la resistencia a la enfermedad, mostrando que Hpa1 posee una actividad antiviral significativamente superior al control y que su efecto protector supera al curativo. Además, Hpa1 indujo un notable aumento en la actividad de enzimas relacionadas con la defensa (polifenol oxidasa, peroxidasa, catalasa y superóxido dismutasa), así como en la expresión de genes asociados a la resistencia a enfermedades por parte de la planta (PR1, PR3, PR5 y PDF1.2). Esto sugiere que las proteínas Hrp de BioFensa podrían estar actuando a través de un mecanismo similar, desencadenando la producción de defensas antimicrobianas y fortaleciendo las barreras celulares.

Además, la variabilidad en la respuesta a diferentes concentraciones y tipos de patógenos subraya la importancia de optimizar las dosis de inductores de resistencia para maximizar su efectividad. En este sentido, la literatura también sugiere que la combinación de inductores de resistencia con otros tratamientos biológicos o químicos podría ofrecer una estrategia más robusta para el manejo de enfermedades (Walters et al., 2013).

Los resultados obtenidos en este estudio sobre la efectividad del inductor biológico BioFensa (proteínas Hrp) en la reducción de la peca bacteriana en plantas de jitomate y la mancha bacteriana en plantas de chile ancho están en concordancia con la literatura existente sobre el uso de inductores de resistencia en plantas. Boller y Felix (2009), destacaron que PMAPs como la flagelina son reconocidos por receptores específicos y actúan como potentes elicitores de respuestas de defensa a concentraciones subnanomolares, un mecanismo similar al observado con BioFensa, que mostró mayor efectividad a concentraciones bajas (0.01 μg mL−1). Este fenómeno también ha sido documentado por Abdul et al. (2020) quienes señalaron que la eficacia de los inductores de resistencia puede depender de la concentración utilizada y del tipo de patógeno, reflejando los hallazgos de este estudio donde concentraciones más altas no siempre mejoraron la respuesta defensiva. Además, Walters et al. (2013) discutieron los desafíos y la necesidad de optimizar las dosis de inductores para maximizar su efectividad, una recomendación que resuena con los resultados acerca que BioFensa fue más eficaz a concentraciones bajas (0.01 μg mL−1). La capacidad de los inductores de resistencia para activar respuestas de defensa sistémica en plantas ha sido bien documentada (Ryals et al., 1996; Durrant y Dong, 2004) y los resultados aportan evidencia adicional de que BioFensa puede inducir un estado fisiológico de resistencia, reduciendo significativamente la severidad de las enfermedades. Estos hallazgos sugieren que BioFensa podría ser una herramienta valiosa en el control biológico de patógenos causantes de enfermedades promoviendo una agricultura más sostenible y reduciendo la dependencia de pesticidas químicos (Pieterse et al., 2012; Van Loon et al., 2006).

Por lo tanto, se requieren evaluaciones posteriores para analizar las concentraciones más efectivas para la disminución de enfermedades en jitomate provocada por P. syringae pv. tomato DC3000, así como en chile para X. euvesicatoria cepa BV865 basado en los resultados de X. euvesicatoria cepa BV801 donde a menor concentración de aplicación de inductores a base de proteínas Hrp mostró mayor efectividad en la reducción de la mancha bacteriana, siendo así BioFensa una alternativa como posible herramienta en el control de bacterias fitopatógenas de importancia en la producción agrícola.

Conclusiones

Conclusiones

La aplicación del inductor biológico BioFensa (proteínas Hrp) demostró ser efectiva en la reducción de la severidad de P. syringae pv. tomato DC3000 (peca bacteriana) en plantas de jitomate y X. euvesicatoria (cepas BV865 y BV801), causante de la mancha bacteriana en plantas de chile ancho, mostrando una efectividad comparable a los inductores comerciales Actigard® y Messenger Gold®. Los resultados sugieren que concentraciones bajas de BioFensa (0.01 μg mL−1) son más eficaces, especialmente en plantas de chile ancho, mientras que concentraciones altas (1 μg mL−1) no siempre mejoran la respuesta defensiva. BioFensa tiene el potencial de ser una herramienta valiosa para el manejo integrado de enfermedades bacterianas, promoviendo una agricultura más sostenible y reduciendo la dependencia a pesticidas químicos. Sin embargo, el estudio se realizó en condiciones controladas de invernadero, lo que podría limitar la generalización de los resultados a condiciones de campo. Por lo que se requieren estudios adicionales en campo abierto para explorar la efectividad biológica de BioFensa, tanto solo como en combinación con otros tratamientos biológicos o químicos para maximizar su efectividad y validar su uso en el manejo fitosanitario de enfermedades bacterianas de plantas de importancia agrícola.