Dentro del complejo de especies de Fusarium causantes de la necrosis de la raíz de la caña de azúcar destaca F. andiyazi por su patogenicidad. El objetivo de este estudio fue evaluar el efecto de hongos micorrízicos arbusculares (HMA) nativos de Morelos sobre el desarrollo de la caña de azúcar y su potencial en el biocontrol de F. andiyazi.
Desarrollo experimental.
Desarrollo experimental.
Se recolectaron muestras de suelo en campos de caña de azúcar en Jojutla, Morelos, donde se identificaron quince morfoespecies de HMA utilizadas como tratamientos en dos bioensayos. En el primer bioensayo se evaluaron parámetros de crecimiento y colonización micorrízica. En el segundo, se analizó la biomasa de las plantas inoculadas con F. andiyazi y el grado de necrosis en raíces como indicador del biocontrol. Los datos se analizaron mediante ANOVA y pruebas de separación de medias (p≤0.05).
Resultados.
Resultados.
En el primer bioensayo, los géneros Acaulospora y Glomus obtuvieron los mayores valores en la micorrización, además, incrementaron significativamente la altura de las plantas, longitud y peso fresco de raíces. Por otra parte, en el segundo bioensayo con las plantas micorrizadas sometidas a la inoculación con F. andiyazi se presentó un desarrollo significativo en la longitud y peso seco de raíces. Las morfoespecies G. ambisporum y G. mosseae, limitaron la infección en raíces aproximadamente a solo un 10
% de daño.
Conclusión
Conclusión
. Los HMA nativos de Morelos demostraron su capacidad para estimular el crecimiento de la caña de azúcar y disminuyeron los daños causados por F. andiyazi.
Palabras clave:
Glomeromycota, Colonización micorrízica, Micorrizas, Fusarium, Caña de azúcar
Introducción
Introducción
El cultivo de la caña de azúcar (Saccharum officinarum) tiene un alto valor económico en las zonas tropicales del mundo, a partir de su jugo se obtiene el 80 % de azúcar y 40 % del etanol combustible (Juntahum et al., 2020). México destaca como el sexto productor de caña de azúcar a nivel mundial, con más de 800 000 ha en 267 municipios de 15 entidades federativas. En Morelos se tiene una alta producción con 101 t ha-1 (SIAP, 2023).
Las enfermedades representan uno de los factores limitantes de la productividad de la caña de azúcar en el mundo, estas son originadas por varios grupos de hongos, bacterias, virus y nematodos. Las de etiología fungosa son las más comunes en México dentro de las que destacan: el carbón (Sporisorium scitamineum), roya naranja (Puccinia kuehnii), pokkah boeng o deformación del ápice (Gibberella fujikuroi), mancha de ojo (Bipolaris sacchari), pudrición del tallo o muermo rojo (Physalospora tucumanensis = Colletotrichum falcatum), mancha café (Cercospora longipes), mal de piña (Ceratocystis paradoxa) (Salgado-García et al., 2013) y necrosis de la raíz (Fusarium spp.) (Martínez-Fernández et al., 2015). En esta última enfermedad se involucra un complejo de especies de Fusarium en donde destaca F. andiyazi por su patogenicidad (Martínez-Jaimes et al., 2020).
Actualmente nuevas prácticas de manejo, incluyendo sistemas de labranza mejorados, aplicación de fertilizantes y manejo de las comunidades de los microorganismos del suelo, se están desarrollando para incrementar la producción de la caña de azúcar. Dentro de los organismos benéficos destacan los hongos micorrízicos arbusculares (HMA), los cuales son de amplia distribución, actúan como simbiontes obligados en las raíces de las plantas y desempeñan un papel primordial en el funcionamiento de los agroecosistemas (Verbruggen et al., 2010). Además, se ha documentado que los HMA están adaptados a varios ambientes y tienen relaciones simbióticas con más de 200 000 especies de plantas; sin embargo, solo 240 especies de HMA han sido descritas a la fecha, aunque estudios moleculares indican que la diversidad de especies es mayor (Lee et al., 2013).
Los HMA colonizan las raíces de las plantas en donde desarrollan sus hifas, arbúsculos y vesículas en las células corticales y también forman esporas e hifas en la rizósfera. La formación de una red hifal por los HMA aumenta significativamente el acceso de las raíces a una mayor área de suelo, favoreciendo el crecimiento de las plantas (Bowles et al., 2016). Esta simbiosis es particularmente importante porque mejora la absorción de agua y nutrientes en la planta, principalmente fósforo y nitrógeno, y a cambio los HMA obtienen carbohidratos para su desarrollo (Campo et al., 2020). La colonización de los HMA incrementa la resistencia a patógenos que causan la necrosis de las raíces, mediante la acción de diferentes mecanismos: al modificar la estructura morfológica de la raíz, regular la síntesis de metabolitos secundarios, mejorar el microambiente de la rizósfera, competir directamente con los microorganismos patógenos por los sitios de invasión e inducir la formación de un sistema de defensa en la planta (Weng et al., 2022). Los objetivos de este trabajo fueron aislar especies de hongos micorrízicos arbusculares de suelos de caña de azúcar de Morelos y evaluar su potencial para promover el crecimiento de las plantas y limitar la infección de Fusarium andiyazi en las raíces.
Desarrollo experimental
Desarrollo experimental
Este trabajo se realizó en el laboratorio de Control Biológico del Centro de Investigación en Biotecnología (CEIB) y en el laboratorio de Entomología y Fitopatología del Centro de Investigaciones Biológicas (CIB) de la Universidad Autónoma del Estado de Morelos.
Colecta de muestras de suelo. Las colectas de muestras de suelo para la obtención de los HMA se realizaron en cultivos de caña de azúcar del municipio de Jojutla, Morelos. Se ubicaron cinco sitios en donde se tomaron muestras de suelo de la rizósfera de plantas asintomáticas de caña de azúcar de la variedad CP 72-2086, con cinco meses de desarrollo. Las muestras de suelo se colectaron a 10 cm de la base de las plantas y a una profundidad de entre 10 y 30 cm (Juntahum et al., 2020). Por cada sitio de colecta se obtuvieron dos muestras de suelo de 1 kg cada una que fueron colocadas en bolsas herméticas.
Aislamiento de las esporas de los HMA. De las muestras de suelo colectadas se recuperaron esporas de HMA utilizando la técnica de tamizado húmedo y decantación (Gerdemann y Nicolson, 1963) y centrifugación con sacarosa al 50 % (Brundrett et al., 1996). Las esporas se cuantificaron bajo microscopio estereoscópico y se determinó la cantidad de esporas obtenidas por cada 100 g de suelo seco.
Identificación de las esporas de los HMA. Las fracciones de las muestras de suelo analizadas se depositaron en vidrios de reloj para su observación bajo el microscopio estereoscópico Leica DM50 para la separación de las esporas de acuerdo a sus características morfológicas tales como la forma, tamaño y colores que se indican en la guía INVAM (International Culture Collection of Vesicular Arbuscular Mycorrhizal Fungi). Con las esporas seleccionadas se hicieron preparaciones temporales con una solución de PVLG (Alcohol-Polivinil-Lacto-Glicerol). Posteriormente, estas preparaciones se observaron con el microscopio óptico Nikon Eclipse Ni bajo el objetivo 40X y las esporas de los HMA se identificaron tomando como referencia las obras taxonómicas de Pérez y Schenk (1990), Schüβler y Walker (2010), Souza (2015) y se consultó la base de datos del INVAM (http://invam.caf.wvu.edu).
Propagación de HMA nativos de caña de azúcar en plantas trampa. Las esporas colectadas se agruparon de acuerdo con sus características morfológicas y se sometieron a un proceso de desinfestación con 0.5 mL de gentamicina durante 10 minutos. Cada grupo de esporas seleccionadas, identificadas como morfoespecies, representó el inoculo inicial utilizando plantas de sorgo como hospederos en macetas de 2 L de capacidad con una mezcla de turba, perlita y vermiculita (1:1:1) (Marro et al., 2014).
Las plantas de sorgo inoculadas con los diferentes grupos de HMA identificados (Cuadro 1) se dejaron crecer durante un periodo de 45 días, para posteriormente ser removidas de las macetas. De estas plantas se separó la raíz junto con el sustrato adherido y se colocaron en una bandeja de plástico, donde se fragmentaron manualmente. Estas mezclas de fragmentos de raíz y restos del sustrato con esporas de los HMA de cada morfoespecie, se utilizaron para establecer los dos bioensayos en caña de azúcar.
Bioensayo 1. Influencia de HMA en el desarrollo de plantas de caña de azúcar. Para evaluar el efecto de los HMA en el desarrollo de plantas de caña de azúcar se estableció un diseño completamente al azar con 16 tratamientos. Se aplicaron las morfoespecies de manera separada o en consorcios y un testigo absoluto con tres repeticiones por tratamiento. Cada planta representó una unidad experimental. Para cada tratamiento se usaron macetas de vivero que se llenaron hasta la mitad con el sustrato preparado como se indicó anteriormente y se añadieron 50 g de las mezclas con las esporas de HMA (Djocgoue et al., 2019). Posteriormente, se colocaron plantas sanas de caña de azúcar de un mes de edad (variedad CP 72-2086), obtenidas de cultivo in vitro y se cubrieron hasta el cuello del tallo con otra capa de sustrato. Las plantas testigo no se inocularon con los HMA. A los 60 días, se evaluaron las siguientes variables: altura (cm), diámetro de tallo (cm), longitud de la raíz (cm), peso fresco de la raíz (g), peso seco de la raíz (g). Las plantas se fertilizaron dos veces a la semana con la solución de Hoagland sin P y se regaron con agua corriente cuando se requería (Ravnskov et al., 2020).
Cuadro 1:Morfoespecies de hongos micorrízicos arbusculares (HMA) utilizados como tratamientos en los bioensayos en caña de azúcar.
Evaluación de la colonización de HMA en raíces de la caña de azúcar. Se analizaron plantas a los 30 días después de la inoculación de los tratamientos indicados en el Cuadro 1. De las plantas con cada uno de los tratamientos aplicados con los HMA se tomaron fragmentos finos de raíces de 1-2 cm, los cuales se aclararon con KOH al 10 % y se tiñeron con azul de tripano 0.05 % con lactoglicerol de acuerdo al método de Phillips y Hayman (1970). Con estos segmentos se hicieron preparaciones con glicerol al 50 % y se observaron con el microscopio óptico Nikon Ni (40X). Se determinó el porcentaje de colonización micorrícica con el método de intersección magnificada considerando la presencia de hifas, arbúsculos o vesículas (McGonigle et al., 1990).
Bioensayo 2. Efecto de la aplicación de HMA en el biocontrol de Fusarium andiyazi . Se utilizó una cepa de F. andiyazi de la colección de hongos fitopatógenos del laboratorio de Entomología y Fitopatología del CIB de la cual previamente se había comprobado su patogenicidad (Martínez-Jaimes et al., 2020).
A los 30 días después de la aplicación de los diferentes tratamientos de HMA en las plantas de caña de azúcar se procedió a realizar la inoculación de F. andiyazi. Se aplicó 50 mL de una suspensión de 106 conidios mL-1, directamente en la base de los tallos (Yadav y Naik, 2014). Las plantas del tratamiento testigo sin HMA se inocularon 50 mL con la suspensión de conidios de F. andiyazi. Después de un periodo de 30 días se evaluaron las siguientes variables: altura (cm), número de tallos, diámetro de tallos (cm), longitud de raíz (cm), peso fresco de las raíces (g) y peso seco de raíces (g). Al final del experimento, la severidad de la enfermedad en las plantas de caña de azúcar se evaluó de acuerdo a la siguiente escala (Asran y Buchenauer, 2003): 0=0 %, 1=1 a 25 %, 2=26 a 50 %, 3=51 a 75
%, 4=76 a 100 % de necrosis en raíces; 5= sistema radicular muerto y fragmentado; 6= toda la planta muerta.
Análisis estadístico. Con los datos de las variables analizadas en los bioensayos 1 y 2, se realizó una prueba de análisis de varianza, además se utilizaron pruebas de comparación múltiple de medias Tukey con niveles de significancia al 95 % para comparar las diferencias entre los tratamientos. El porcentaje de colonización de raíces por los HMA que no cumplían con los supuestos de distribución normal, se transformaron para homogeneizar las varianzas mediante la función arco seno. Se aplicó un ANOVA y una prueba Tukey (p
≤ 0.05), utilizando el paquete estadístico SAS v9.0.
En las muestras de suelo analizadas de los cinco campos de caña de azúcar de Jojutla, Morelos, se encontraron propágulos de HMA nativos. Se presentó una variabilidad poblacional de HMA de entre 280 - 863, con un promedio de 497 esporas por 100 g de suelo. Estos resultados concuerdan con lo reportado en campos de Jalisco que presentaron en promedio 248 ± 37 esporas por 100 g de suelo (Sánchez-Lizarraga et al., 2017). Dichos valores son superiores a lo reportado por Juntahum et al. (2020) quienes indican un número de 11-168 esporas en 100 g de suelo del noreste de Tailandia. Aunque, por otra parte, son menores a lo reportado por Salgado-García et al. (2013) quienes mencionan un promedio de 943 esporas por 100 g de suelo. Se ha documentado que la variación en el número de esporas en los sitios de muestreo depende de varios factores, incluyendo las prácticas de cultivo, condiciones ambientales, tipos de suelo y planta hospedera (Kadian et al., 2018).
A partir de las muestras de suelo de caña de azúcar se aislaron 15 morfoespecies de HMA, 12 se identificaron a nivel especie y tres a nivel género. Estas morfoespecies se ubican en las familias Acaulosporaceae, Claroideoglomeraceae, Glomeraceae y Paraglomeraceae pertenecientes a los órdenes Diversiporales, Glomerales y Paraglomerales.
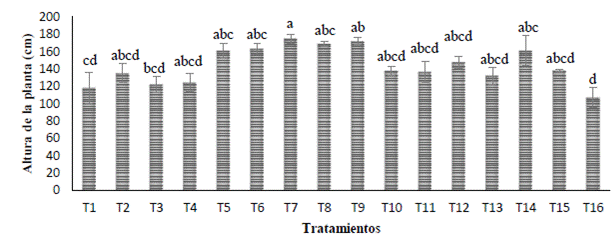
Bioensayo 1. Influencia de HMA en el desarrollo de plantas de caña de azúcar. A los 60 días después de la aplicación de los tratamientos se mostraron algunas diferencias en las variables. De acuerdo con el análisis estadístico, solo en las variables de altura, peso fresco de raíz y longitud de la raíz se observaron diferencias estadísticamente significativas p≤0.05. Referente a la altura, el valor superior se obtuvo con la aplicación de T7 (A. tuberculata) con 174.37 cm; en contraste con 106.63 cm que se obtuvo en el T16 (testigo) (Figura 1). El efecto positivo de los inóculos micorrízicos aplicados en caña de azúcar concuerda con Wilches-Ortiz et al. (2019) que obtuvieron diferencias significativas en las variables altura de la planta y diámetro de la raíz, al aplicar HMA nativos de Colombia de los géneros Glomus, Acaulospora y Funneliformis en comparación a las micorrizas comerciales y fertilización química. De manera similar, Ventura et al. (2018) notaron un mayor desarrollo en la altura de plantas de caña de las variedades IAC SP 955094 y CTC 9004M cultivadas en Brasil al ser tratadas con HMA nativos (Acaulospora, Claroideoglomus, Diversispora, Glomus y Gigaspora).
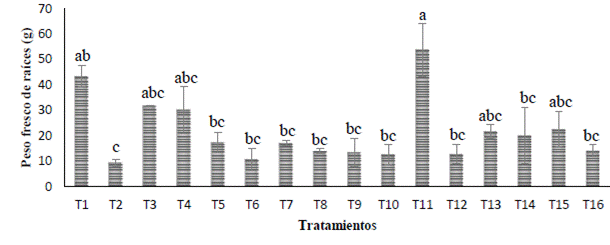
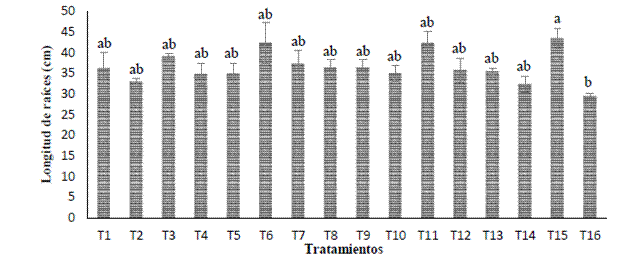
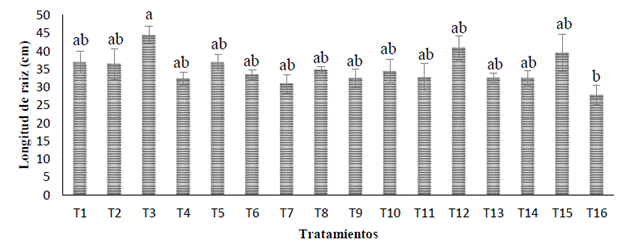
En peso fresco de las raíces se observaron diferencias significativas. El análisis de varianza mostró que los mejores tratamientos fueron T11 (G. mosseae/F. geosporum) con 53.8 g y T1 (A. lacunosa/A. tuberculata) con 43.33 g. Por otro lado, los valores menores se manifestaron en T2 (C. lamellosum) con 9.4 g y T6 (R. irregularis) con 10.6 g (Figura 2). Con relación a la longitud de raíces, el valor superior fue el T15 (F. geosporum) con 43.37 cm y el menor valor correspondió al T16 (testigo) con 29.37 cm (Figura 3). En otras investigaciones similares también se ha resaltado el efecto positivo de estas morfoespecies. Li et al. (2012) al inocular G. mosseae en arroz obtuvieron resultados significativos de mayor altura, biomasa de la planta y rendimiento de grano. Juntahum et al. (2020) evidenciaron un aumento en la productividad de caña de azúcar al incorporar al suelo la micorriza arbuscular F. mosseae como complemento a las micorrizas nativas de un campo de Tailandia. Por otra parte, Rojas-Martínez (2014), al aplicar Acaulospora lacunosa en plantas de chile (Capsicum annuum) obtuvo mayor influencia en longitud y peso seco de las raíces.
Figura 1:Efecto de la inoculación de HMA en la altura de plantas de caña de azúcar en el Bioensayo 1(media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. = 11.81.
Figura 2:Efecto de la inoculación de HMA en el peso fresco de las raíces de caña de azúcar en el Bioensayo 1 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. =17.67.
Figura 3:Efecto de la inoculación de HMA en la longitud de raíz de plantas de caña de azúcar en el Bioensayo 1 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 12.19.
Colonización de HMA en las raíces de caña de azúcar. Los HMA aplicados de manera individual o en consorcio en caña de azúcar de la variedad CP 72-2086 colonizaron las raíces en grado diferente, de un 13.3 a 93.3 %. En el análisis microscópico de las raíces se observaron estructuras típicas de HMA tales como esporas, hifas, vesículas y arbúsculos. Los resultados mostraron diferencias significativas entre los tratamientos evaluados (p≤0.05), siendo el T8 (G. aggregatum) donde se evidenció una mayor colonización con
93.3 %, seguido del T1 (A. lacunosa/A. tuberculata con 73.3 %. En contraste, T5 (G. ambisporum) presentó la menor colonización micorrízica con 13.3 % (Cuadro 2). El grado de colonización desarrollado en raíces de las plantas inoculadas con los diferentes tratamientos es semejante a lo observado en las plantas cultivadas en México, así, en la Chontalpa, Tabasco, se tuvo un promedio de 88.9 % (Salgado-García et al., 2013), y en un campo de la localidad el Arenal, Jalisco, se observó un 60 % (Sánchez-Lizarraga et al., 2017). De manera correspondiente, en un cultivo del noreste de Tailandia se reportó 10-22
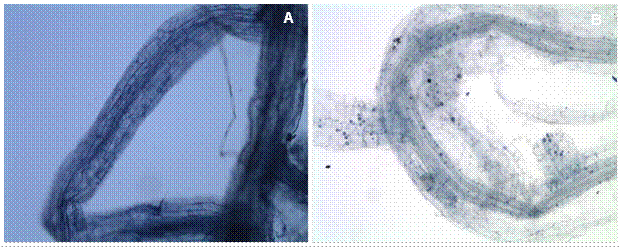
% de colonización micorrízica (Juntahum et al., 2020). En estos reportes se analizó la colonización micorrízica en la caña de azúcar, sin mencionar la participación de las morfoespecies de manera separada. La especie G. aggregatum fue la que colonizó con mayor eficiencia la raíz de la caña de azúcar (Figura 4) como se ha documentado en otras plantas; como es el caso de haba con una colonización del 30 al 89 % (Abd-Alla et al., 2015), en regaliz (Glycyrrhiza glabra) colonizó 86.5 % (Selvaraj y Sumithra, 2011), en Acacia seyal colonizó 31.57 % (Manga et al., 2017).
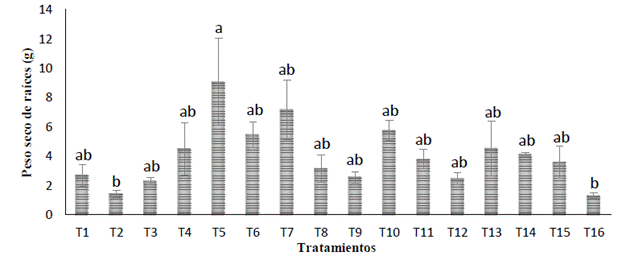
Bioensayo 2. Efecto de la aplicación de los HMA en el biocontrol de Fusarium andiyazi. Plantas del tratamiento testigo (sin aplicación de HMA) presentaron síntomas característicos de marchitez, como flacidez de hojas y una ligera clorosis después de 30 días de la inoculación con F. andiyazi; similar a lo reportado por Martínez-Jaimes et al. (2020). En cambio, los tratamientos con las plantas previamente inoculadas con HMA y el patógeno solo desarrollaron una ligera clorosis en el follaje. Adicionalmente, no se observaron diferencias en variables altura de planta, número de tallos, diámetro de tallos y peso fresco de raíces. En la variable longitud de raíces se observaron diferencias estadísticamente significativas (p<0.05). El análisis de medias mostró que plantas del T3 (A. lacunosa) desarrollaron la mayor longitud de raíces con 42.58 cm, en cambio, las plantas T16 (testigo) tuvieron el menor valor al registrar 28.13 cm (Figura 5). Además, en peso seco de la raíz se observaron diferencias significativas con el T5 (Glomus ambisporum) con 7.20 g a diferencia del T16 (testigo) con 1.56 g (Figura 6).
Tratamientos
Morfoespecies de HMA
Colonización
T1
Acaulospora lacunosa/Acaulospora tuberculata
73.3 ± 3.8 ab
T2
Claroideoglomus lamellosum
23.3 ± 15.3 bc
T3
Acaulospora lacunosa
16.6 ± 4.7 bc
T4
Septoglomus desertícola
50.0 ± 26.6 abc
T5
Glomus ambisporum
13.3 ± 4.7 c
T6
Rhizophagus irregularis
46.7 ± 12.3 abc
T7
Acaulospora tuberculata
33.3 ± 9.3 bc
T8
Glomus aggregatum
93.3 ± 10.6 a
T9
Acaulospora 1/Glomus aggregatum/Sclerocystis 2
66.6 ± 16.2 abc
T10
Claroideoglomus luteum
26.7 ± 10.7 bc
T11
Glomus mosseae/ Funneliformis geosporum
50.0 ± 18.4 abc
T12
Sclerocystis 1
36.6 ± 9.4 abc
T13
Glomus mosseae
20.0 ± 7.4 bc
T14
Paraglomus occultum
70.0 ± 13.3 abc
T15
Funneliformis geosporum
70.0 ± 10.6 abc
Cuadro 2:Colonización de hongos micorrízicos arbusculares (HMA) en las raíces de caña de azúcar.
Figura 4:Colonización micorrízica de los HMA en raíces de caña de azúcar teñidas con azul de tripano (40X). () Desarrollo de hifas de (T8). () Desarrollo de hifas y esporas de .
Figura 5:Efecto de la inoculación de HMA en la longitud de raíz de plantas de caña de azúcar en el Bioensayo 2 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 14.39.
Figura 6:Efecto de la inoculación de HMA en el peso seco de la raíz de plantas de caña de azúcar en el Bioensayo 2 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 27.42.
Las plantas de caña de azúcar sin tratamiento de micorrizas presentaron una severidad grado 2, es decir entre el 25 y 50 % de la infección radical ocasionada por Fusarium andiyazi. En tanto, las plantas que fueron inoculadas con tratamientos de micorrizas, presentaron una severidad grado 1, entre 0 y 25 % de infección radical. En las plantas del T5 (G. ambisporum) y T13 (G. mosseae) se observó un porcentaje de infección del 10 %. En este sentido, se ha documentado que G. mosseae aplicado en plantas de jitomate disminuye el índice de la enfermedad causada por Rhizoctonia solani en un 60 % (Kareen y Hassan, 2014).
Este efecto benéfico de los HMA en la reducción de la severidad de enfermedades en plantas involucra la participación compatible de especies de HMA y su hospedante. Esta interacción refleja una mayor eficiencia en la absorción de nutrientes lo que fortalece a la planta ante el eventual ataque de patógenos (Olumayoga et al., 2018; Ravnskov et al., 2020). Además, se ha documentado que la resistencia a las plantas micorrizadas se debe a la activación de algunos mecanismos de defensa incluyendo la producción de metabolitos secundarios tales como los compuestos fenólicos (Corrales-Sánchez et al., 2021) las cuales tienen propiedades antimicrobianas (Mandal et al., 2010). Estos compuestos se acumulan en los exudados de la raíz suprimiendo el desarrollo de los patógenos en la rizósfera (Ren et al., 2015).
Conclusiones
Conclusiones
De las muestras de suelo de caña de azúcar de Jojutla, Morelos se aislaron 15 morfoespecies de HMA, 12 se identificaron a especie y tres a nivel género. Los géneros de mayor abundancia de HMA fueron: Acaulospora, Claroideoglomus y Glomus.
La aplicación de los HMA en caña de azúcar influyó significativamente en el desarrollo de la altura de las plantas, peso fresco y longitud de las raíces. Los HMA colonizaron las raíces de la caña de azúcar en grado diferente sobresaliendo la especie G. aggregatum con un 93.3 % de colonización. Las plantas de caña de azúcar inoculadas con Glomus ambisporum y Glomus mosseae disminuyeron la severidad de la enfermedad inducida por F. andiyazi. Finalmente, plantas de caña de azúcar micorrizadas inoculadas con F. andiyazi mostraron un desarrollo significativo en longitud y peso seco de las raíces.
Referencias
Abd-Alla, MH, Nafady, NA and Khlalaf, DM. (2015). Assessment of nanoparticles contamination of faba bean Rhizobium leguminosarum bv. viciae Glomus aggregatum symbiosis: Implications for induction of autophagy processin root nodule. Agriculture, Ecosystems and Environment 218: 163-177. http://dx.doi.org/10.1016/j.agee.2015.11.022
Asran, MR and Buchenauer, H. (2003). Pathogenicity of Fusarium graminearum isolates on maize (Zea mays L.) cultivars and relation with deoxynivalenol and ergosterol contents. Journal of Plant Disease and Protection 110 : 2009-2019. https://www.jstor.org/stable/43215506
Bowles, MT, Barrios-Masias, HF, Carlisle, AE, Cavagnaro, RT and Jackson, EL. (2016). Effects of arbuscular mycorrhizae on tomato yield, nutrient uptake,water relations, and soil carbondynamics under deficitirrigation in fieldconditions. Science of the Total Environment 567: 1223-1234. http://doi.org/10.1016/j.scitotenv.2016.05.178
Brundrett, MC, Bougher, N, Dell, B, Grove, T and Malajczuk, N. (1996). Workingwith mycorrhizas in forestry and agriculture. ACIAR Monograph Series. 155-158. https://doi.org/10.13140/2.1.4880.5444
Campo, S, Martin-Cardoso, H, Olive, M, Pla, E, Catalana-Forner, M, et al. (2020). Effect of root colonization by arbuscular mycorrhizal fungi on growth, productivity and blast resistance in rice. Rice 13: 42. https://doi.org/10.1186/s12284-020-00402-7
Corrales-Sánchez, JB, López-Meyer, M, Valdez-Morales, M, Trejo-Aguilar, D, Bojórquez-Armenta, YJ, et al. (2021). Arbuscular mycorrhiza symbiosis reduces the Rhizoctonia root rot and alters the phenolic profile in common bean. Acta Biológica Colombiana 27 : 316-325. https://doi.org/10.15446/abc.v27n3.87627
Djocgoue, PF, Simo, C, Minyaka, E, Tassong-Saah, D, Njonzo-Nzo, SA, et al. (2019). Influence of Gigaspora margarita and Acaulospora tuberculata on tolerance to Phytophthora megakarya in Theobroma cacao under plant nursery conditions. International Journal of Advance Agricultural Research 7: 21-31. https://doi.org/10.33500/ijaar.2019.07.003
Gerdemann, JW. and Nicolson, H. (1963). Spores of mycorrhizal Endogone species extract from soil by wet sieving and decanting. Transactions of the BritishMycological Society 46 : 235-244. https://doi.org/10.1016/S0007-1536(63)80079-0
INVAM. International Culture Collection of Arbuscular and Vesicular-Arbuscular Endomycorrhizal Fungi. West Virginia University. http://www.invam.caf.wvu.edu/. (Consulta: diciembre 2023).
Juntahum, S, Jongrungklang, N, Kaewpradit, W, Lumyong, S and Boonlue, S. (2020). Impact of arbuscular mycorrhizal fungi on growth and productivity of sugarcane under field conditions. Sugar Technology 22: 451-459. https://doi.org/10.1007/s12355-019-00784-z.
Kadian, N, Yadav, K and Aggarwal, A. (2018). Mass multiplication of arbuscular mycorrhizal fungi associated with some leguminous plants: an ecofriendly approach. Indian Journal of Experimental Biology 56: 258-266. http://nopr.niscpr.res.in/handle/123456789/43276
Kareen, TA and Hassan, MS. (2014). Evaluation of Glomus mosseae as biocontrol agents against Rhizoctonia solani on tomato. Journal of Biology, Agriculture and Healthcare 4 : 15-19. https://www.iiste.org/Journals/index.php/JBAH/article/view/1056
Lee, EH, Eo, JK, Ka, KH and Eom, AH. (2013). Diversity of arbuscular mycorrhizal fungi and theirroles in ecosystems. Mycobiology 41: 121-125. https://doi.org/10.5941/MYCO.2013.41.3.121
Li, W, Fang, M, Shujuan, Z and Xue, Z. (2012). Effect of Glomus mosseae inoculation on growth and reproduction of rice. Zhu, E, Sambath, S. (eds) Information Technology and Agricultural Engineering. Advances in Intelligent and Soft Computing, 134. Springer, Berlin, Heidelberg. https://doi.org/10.1007/978-3-642-27537-1_111
Mandal, SM, Chakraborty, D and Dey, S. (2010). Phenolic acids act as signaling molecules in plant-microbe symbioses. Plant Signaling & Behavior 5 : 359-368. https://doi.org/10.4161/psb.5.4.10871
Manga, A, Ndiaye, F and Diop, TA. (2017). Le champignon arbusculaire Glomus aggregatum améliore la nutrition minérale de Acacia seyal soumis au stress salin progressif. International Journalof Biological and Chemical Sciences 11 : 2352-2365. https://doi.org/10.4314/ijbcs.v11i5.32
Marro, N, Lax, P, Cabello, M, Doucet, ME and Becerra, AG. (2014). Use of the arbuscular mycorrhizal fungus Glomus intraradices as biological control agent of the nematode Naccobus aberrans parasitizing tomato. Brazilian Archives of Biology and Technology 57 : 668-674. https://doi.org/10.1590/S1516-8913201402200
Martínez-Fernández, E, Martínez-Jaimes, P, Guillén-Sánchez, D, Peña-Chora, G, y Hernández-Hernández, V. (2015). Diversidad de Fusarium en las raíces de caña de azúcar (Saccharum officinarum) en el estado de Morelos. Revista Mexicana de Micología 42:33-43. https://www.scielo.org.mx/scielo.php?script=sci_arttext&pid=S0187-31802015000200006
Martínez-Jaimes, P, Martínez-Fernández, E, Guillén-Sánchez, D, Suárez-Rodríguez, R, Ramírez-Trujillo, JA, et al. (2020). Necrosis de la raíz de la caña de azúcar (Saccharum officinarum) causada por Fusarium spp. Acta Agrícola y Pecuaria 6: 1-9. https://doi.org/10.30973/aap/2020.6.0061007
McGonigle, TP, Miller, MH, Evans, DG, Fairchild, GL and Cisne, JA. (1990). A new method which gives an objective measure of colonization of roots by vesicular-arbuscular mycorrhizal fungi. New Phytologist Foundation. 115 : 495-501. https://doi.org/10.1111/j.1469-8137.1990.tb00476.x
Pérez, Y, and Schenck, NC. (1990). A unique code for each species of VA mycorrhizal fungi. Mycologia 82 :256-260. https://doi.org/10.2307/3759855
Phillips, JM and Hayman, DS. (1970). Improved procedures for clearing roots and staining parasitic and vesicular-arbuscular mycorrhizal fungi for rapid assesment to infection. Transactions British Mycological Society 55 : 158-161. https://doi.org/10.1016/S0007-1536(70)80110-3
Olumayowa, MO, Odunayo, JO, Ayodele, AS and Adegboyega, CO. (2018). Role of arbuscular mycorrhizal fungi as biocontrol agents against Fusarium verticilliodes causing ear rot of Zea mays L. (Maize). Current Plant Biology 15: 30-37. https://doi.org/10.1016/j.cpb.2018.11.005
Ravnskov, S, Cabral, C and Larsen, J. (2020). Mycorrhiza inducedtolerance in Cucumis sativus against root rot caused by Pythium ultimum depends on fungal species in the arbuscular mycorrhizal symbiosis. Biological Control. 141: 104-133. https://doi.org/10.1016/j.biocontrol.2019.104133
Ren, L, Zhang, N, Wu, P, Huo, H, Xu, G, et al. (2015). Arbuscular mycorrhizal colonization alleviates Fusarium wilt in watermelon and modulates the composition of root exudates. Plant Growth Regulation 77: 77-85. https://doi.org/10.1007/s10725-015-0038-x
Rojas-Martínez, LE. (2014). Respuesta del cultivo de pimentón (Capsicum annuum) a la inoculación con Glomus manihotis y Acaulospora lacunosa en suelos con niveles altos de fosforo. Respuestas 19: 27-38. https://doi.org/10.22463/0122820X.6
Salgado-García, S, Lagunes-Espinoza, LC, Nuñez-Escobar, R, Ortíz-García, CF, Bucio-Alanís, L, et al. (2013). Caña de azúcar, producción sustentable. Colegio de Postgraduados, Texcoco, Estado de México.
Sánchez-Lizárraga, AL, Dendooven, L, Marino-Marmolejo, EN, Dávila-Vázquez, G, Hernández-Cuevas, L, et al. (2017). Presence and diversity of arbuscular mycorrhizal fungi in soil regularly irrigated with vinasses. Journal of Soil Science and Plant Nutrition 17 : 1116-1129. https://dx.doi.org/10.4067/S0718-95162017000400020
Schüßler, A and Walker, C. (2010). The Glomeromycota. species list with new families and new genera. The Royal Botanic Garden Edinburgh, The Royal Botanic Garden Kew, Botanische Staatssammlun Munich and Oregon, 1-56. http://www.amf-phylogeny.com
Selvaraj, T and Sumithra, P. (2011). Effectof Glomus aggregatum and plantgrowth promoting rhizomicroorganisms on growth, nutrition and content of secondary metabolites in Glycyrrhiza glabra L. Indian Journal Applied & Pure Biology 26: 283-290. https://biology-journal.org/journal/volume26/issue52/ijapb26-2-18.html
SIAP. (2023). Servicio de Información Agroalimentaria y Pesquera. Avance de siembrasy cosechas perennes,riego temporal. Disponible en: https://nube.siap.gob.mx/cierreagricola/. (Consulta: diciembre, 2023).
Souza, T. (2015). Handbook of arbuscular mycorrhizal fungi. Switzerland. Paraíba, Brasil: Springer International Publishing. https://doi.org/10.1007/978-3-319-24850-9
Ventura, MVA, Moura, JB, Souza, RF, Vieira Junior, WG, Rocha, ECV, et al. (2018). Influence of arbuscular mycorrhizal fungi in the establishment of pre-broken sugar cane. Agriculture & Forestry, 64 : 149-157. https://doi.org/10.17707/AgricultForest.64.3.13
Verbruggen, E, Röling, WFM, Gamper, HA, Kowalchuk, GA, Verhoeff, HA, et al. (2010). Positive effects of organic farming on below ground mutualists: large scale comparison of mycorrhizal fungal communities in agricultural soils. New Phytologist Foundation 186 : 968-979. https://doi.org/10.1111/j.1469-8137.2010.03230.x
Weng, W, Yan, J, Zhou, M, Yao, X, Gao, A, et al. (2022). Roles of arbuscular mycorrhizal fungi as a biocontrol agent in the control of plant diseases. Microorganisms 10 : 1266. https://doi.org/10.3390/microorganisms10071266
Wilches-Ortiz, WA, Ramírez-Gómez, MM, Pérez-Moncada, UA, Serralde-Ordoñez, DP, Peñaranda-Rolon, AM, et al. (2019). Asociación de hongos micorrízicos arbusculares (HMA) con plantas de caña de azúcar (Saccharum officinarum) para la producción de panela en Colombia. Terra Latinoamericana 37: 175-184. https://doi.org/10.28940/terra.v37i2.481
Yadav, MK and Naik, S. (2014). Arbuscular mycorrhizal fungi: biocontrol against Fusarium wilt of pea. Journal of Pure and Applied Microbiology 8 : 1-5. https://microbiologyjournal.org/arbuscular-mycorrhizal-fungi-biocontrol-against-fusarium-wilt-of-pea/
Emily E. Heliwell, Peter Lafayete, Felipe Arredondo, Madeleine Duquette, Anna Co, Julio Vega-Arreguín, Stephanie Porter, Eli J. Borrego, Michael V. Kolomiets, Wayne A. Parrot y Brett M. Tyler.