
Introducción
El tequila es considerado la bebida alcohólica mexicana por excelencia. En 2022, se utilizaron 2.61 millones de toneladas de “piñas” de agave tequilero (Agave tequilana var. azul), su materia prima imprescindible, alcanzándose un volumen histórico de producción de 651 millones de litros de tequila, de los cuales el 64% fue exportado (CRT, 2023). El cultivo requiere seis años para madurar y en ese lapso es susceptible a la marchitez del agave, enfermedad en la que Fusarium oxysporum provoca una marchitez vascular o Fusarium solani induce una pudrición radicular, letales a la madurez, reducen drásticamente la producción (
Como estrategia de manejo de la marchitez del agave cuando incrementa a ni-
veles antieconómicos, se realiza rotación de cultivos, siendo el maíz (Zea mays) el principal cultivo alternante, aunque existe reportes de epidemias severas, aun después de años de rotación. Así mismo, se recomienda sembrar frijol (Phaseolus vulgaris) como cultivo entre hileras en los primeros años, para mejorar el manejo
de maleza y anticipar un beneficio económico en el largo ciclo del agave (HerreraPérez, 2017). Considerando la escasa información de F. solani como fitopatógeno del agave tequilero, este estudio tuvo como objetivos: Definir la taxonomía de 24 cepas identificadas morfológicamente como F. solani, obtenidas de plantas de agave tequilero con marchitez y síntomas de pudrición de raíz y corona, secuenciando el fragmento conservado del ADNr ITS1-5.8S-ITS2 y comparando estas secuencias en la base de datos FUSAROID-ID para ubicarlas taxonómicamente considerando su similitud de secuencias con las nuevas especies filogenéticas reportadas a partir de complejo de especies Fusarium solani (FSSC); con estas mismas secuencias, se buscó relacionar 24 cepas de agave, con las11 f. spp. de F. solani, y definir con base a la presencia de intrones en la subunidad 18S del ADNr (SSU), su similitud molecular con la f. sp. phaseoli que es patogénica a frijol. Adicionalmente, se buscó definir la diversidad genética del genoma completo, utilizando huellas génicas de amplificación de fragmentos repetidos Rep-PCR y a partir del análisis de su diversidad, determinar la capacidad patogénica de cepas representativas, sobre plantas de agave, maíz y frijol, para constatar o definir su condición de hospederos.
Materiales y Métodos
Muestreo de plantas de Agave con síntomas
Se muestrearon campos comerciales de nueve municipios de Jalisco, México y un campo cultivado de A. americana con síntomas similares en Comitán, Chiapas, México. Los muestreos estaban encaminados a obtener plantas de agave tequilero con síntomas de marchitez y necrosis rojiza en la base del tallo y corona
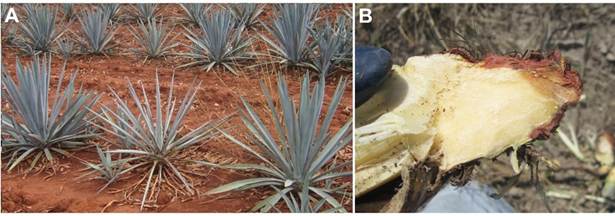
Se obtuvieron fragmentos de tejido interno sano, contiguo a tejido necrótico de la base del tallo o la corona (
Para generar micelio, los aislados se sembraron sobre círculos de celofán dulce estéril, colocado sobre PDA, incubando diez días a 27 °C. El micelio se criofracturó en nitrógeno líquido, extrayéndole el ADN utilizando el protocolo de Zymo Research Plant/Seed DNA MiniPrep®, Cat. No. D6020. Su integridad y pureza se corroboró por electroforesis en gel de agarosa al 0.8% teñido con SYBER® safe Invitrogen DNA gel stain, evidenciada con un transiluminador de luz azul Dark Reader®.
Utilización de marcadores moleculares de ADN
Como marcadores moleculares de ADN se utilizaron: El fragmento ITS1-5.8SITS2, que se obtuvo con los iniciadores ITS1 (5’-TCCTCCGCTTATYGATATGC-3’) e ITS4 (5’-TCCTCCGCTTATTGATATGC-3’), y la subunidad pequeña del ADNr (SSU) amplificando con los iniciadores NS1 (5’-GTAGTCATATGCTTGTCTC-3’) e ITS2 (5’-GCTGCGTTCTTCATCGATGC-3’) (
reacción de PCR se llevó a cabo en un cóctel de 50 µL que contenía: 30 µL de agua
desionizada, 10 µL de buffer de reacción 5X MyFi® (1 mM de dNTPs y 3 mM de MgCl2), 2 µL (1 µL por cada iniciador a 20 µM), 2 µL de MyFi® ADN polymerasa Bioline™ y 6 µL del ADN templado. La amplificación se realizó en un termociclador Gradient Palm (Corbett Life Sciences™) con el programa de amplificación siguiente: Una desnaturalización inicial a 95 ºC por 2 min; 30 ciclos de desnaturalización a 94 ºC durante 1 min, anillamiento a 61 ºC durante 2 min y extensión a 72 ºC durante 2 min y una extensión final a 72 ºC por 6 min. Las amplificaciones se evidenciaron en gel de agarosa al 1% teñido con SYBER®safe y foto documentando con una cámara Canon Powershot A620. El tamaño de los amplificados se determinó comparándolos con el marcador de ADN HyperLadder 100bp plus de Bioline®. Los fragmentos amplificados se secuenciaron en el Laboratorio Nacional de Genómica para la Biodiversidad del CINVESTAV (Irapuato, Guanajuato, México). Para definir la ubicación taxonómica molecular de las cepas, el fragmento ITS1-
5.8S-ITS2 de cada cepa, se comparó con la colección de nucleótidos (nr/nt) del GenBank, obteniendo reportes de secuencias altamente semejantes con la herramienta Mega BLAST. Adicionalmente, se obtuvieron las secuencias de este mismo fragmento, que fueron agregadas al GenBank por O’Donnell et al. (2008),
pb, en las cepas de F. solani obtenidas de A. tequilana.
Para determinar la diversidad del genoma completo de las cepas, se generaron huellas génicas de fragmentos repetidos con el marcador de ADN Rep-PCR, utilizando los iniciadores 1R (5IIIIC GICGICATCIGGC-3’) y REP 2I(5’ ICGICTTATCIGGCCTAC-3’) (
y de Brujin (1998) para amplificar, con algunas modificaciones. El cóctel de PCR (25 μL) contenía 2.5 µL de buffer10X (500 mM KCl y 100 mM Tris-HCl [pH 8.3], 100 µL de gelatina, 1% de Tritón, 1.5 mg/mL de BSA), 2.5 µL de dNTPs 2 mM,
1.25 µL de MgCl2 1,5 mM, 2 µL de 0.25 µM de cada iniciador, 0.5 µL de 5U de Taq ADN polimerasa Amplificasa® (BioTecMol) y 3 µL del DNA. El programa de amplificación consistió en una desnaturalización a a 95 °C por 6 min, seguida de 30 ciclos de desnaturalización a 94 °C durante 6 min, anillamiento a 40 °C durante 1 min, extensión a 65 °C durante 8 min y una extensión final a 65 °C durante 16 min. Las huellas génicas se evidenciaron en geles de agarosa al 2.1%, con electroforesis a 4 °C, 40V y 40 mA durante 20 h. La diversidad determinó en base a matrices estandarizadas de presencia ̶ ausencia de fragmentos amplificados de diferente número de pb, con relación al marcador de peso molecular HyperLadder100bp plus de Bioline®. Se generó un árbol filogenético de coeficiente de disimilaridad del promedio de distancias Manhatan, mediante el método de Neighbor-Joining, utilizando el programa NTSYSpc versión 2.21 (
Pruebas de patogenicidad
Con el fin de evaluar la patogenicidad de cepas representantes de la diversidad genética de F. solani, en tres bioensayos independientes, plantas de Agave tequilana; Plántulas de maíz de los híbridos Magno (Aspros®), Ocelote y Faisán (Asgrow®) reportadas como resistentes a pudrición radicular por Fusarium y una variedad tradicional de maíz “Morado”; además de plántulas de frijol “Flor de Mayo”, fueron inoculadas con las cepas FsH, FsC1, FsC7 y FsCA. Adicionalmente se desarrollaron plantas de las tres especies que no fueron inoculadas y se evaluaron como control no inoculado (NI). Las confrontaciones se evaluaron mediante un diseño completamente al azar con cuatro repeticiones. Las plantas se establecieron en invernadero, en macetas con sustrato de turba y suelo arenoso, esterilizado en horno a 100 °C por 24 h. El inoculo de cada cepa se creció en PDA durante 10 días, pregerminando una suspensión de conidios, agitándola en medio sintético mínimo (
Resultados y Discusión
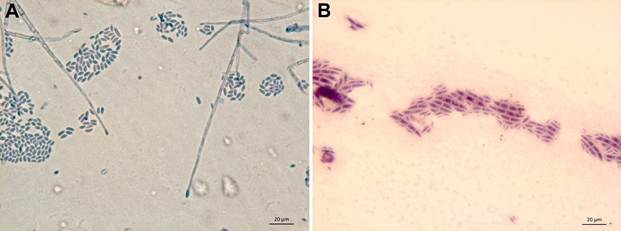
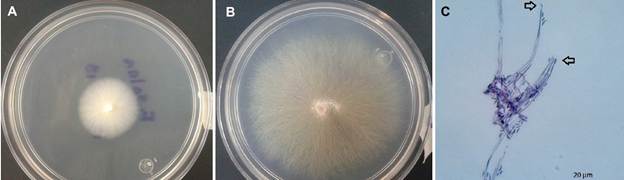
Se obtuvieron 24 aislados identificados morfológicamente como F. solani (
| Cepa de F. solani | Municipio, Estado | Zona productora de agave |
|---|---|---|
| FsF, FsG, FsH, FsP1, FsP2, FsP4 FsP FsC FsQ FsO FsA, FsK FsC7 | Acatic, Jal. Tototlán, Jal. Tepatitlán, Jal. Atotonilco, Jal. Tecolotlán, Jal. Tala, Jal. Comitán, Chis. | Altos Sur Ciénega Altos Sur Ciénaga Sierra de Amula Valles |
| FsDr | San Gabriel, Jal. | Sur |
| FsCR, FsM, FsI | Teuchitlán, Jal. | Valles |
| FsA3, FsCA, FsC1, FsD2, FsM1, FsSub, F3 | Zapotlanejo, Jal. | Centro |
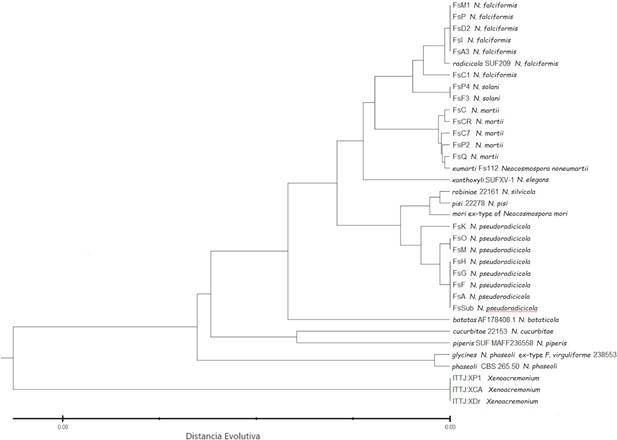
Se secuenció el fragmento ITS1-5.8S-ITS2 de los aislados obtenidos de plantas de Agave tequilana y estas secuencias se integraron a la base datos del GenBank con las claves de acceso: FsCR MK027255; FsP2 MK027256; FsC1 MK027257;
FsM MK027258; FsSub MK027259; FsA3 MK027260; FsD2 MK027261; FsM1 MK027262; FsP4 MK027263; FsF3 MK027264; FsA KU878136; FsC KU878137; FsF KU878138; FsG KU878139; FsH KU878140; FsK KU878141; FsO KU878142;:FsP KU878143; FsQ KU878144; FsC7 KU878145; XP1
MK027287; XCA MK027288; XDr MK027289. Al compararse estas secuencias con la colección de nucleótidos (nr/nt), se ratificó molecularmente la taxonomía de 21 aislados como F. solani e integrantes del FSSC, por coincidir con entre 47 y 242 reportes de secuencias altamente similares. Las cepas FsCA, FsDr y FsP1, con los mismos criterios de búsqueda, no fueron altamente similares con F. solani o el FSSC, en cambio sí lo fueron con el género Xenoacremonium, con 15 reportes y 17 de alta similaridad con Xenoacremonium falcatum y X. recifei, que aunado a las características morfológicas antes descritas y a la descripción de
Se obtuvieron las secuencias de la SSU del DNAr de las 21 cepas de F. solani
y se incluyeron en la base de datos del GenBank con los siguientes números de acceso: FsC1 MK027267; FsA MK027268; FsA3 MK027269; FsH MK027270; FsO MK027271; FsG MK027272; FsF MK027273: FsF3 MK027274; FsD2 MK027275;
FsM MK027276; FsM1 MK027277; FsC MK027278; FsC7 MK027279; FsCR MK027280; FsK MK027281; FsQ MK027282; FsP MK027283; FsP2 MK027284; FsP4 MK027285; FsSub MK027286.
Estas secuencias se cortaron de acuerdo con el inicio y final del fragmento NS5-NS8 (
lo que ninguna es similar a la f. sp. phaseoli, lo que respaldaría la sugerencia de intercalar el cultivo de frijol entre las hileras de agave en época de lluvias, o bien hacer rotación con este cultivo, cuando la marchitez del agave haya incrementado su incidencia, reduciendo el riesgo de incrementar el inoculo de Neocosmodpora spp. al haber infectado y colonizado al frijol.
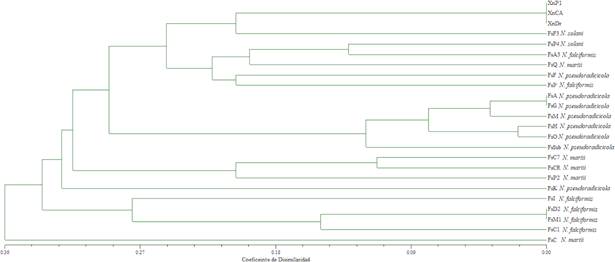
Al analizar las huellas génicas Rep-PCR obtenidas con el genoma completo de las cepas obtenidas de agave, no se aprecia una clara asociación entre sí, de las especies filogenéticas N. falciformis, N. martii, N. solani y N. pseudoradicicola (
Al inocularse cuatro cepas representativas de grupos de diversidad y evaluarse su patogenicidad como severidad de tejido necrótico en raíz, se determinó que las cepas FsH, FsC1 y FsC7 inoculadas en agave, provocaron una severidad del 16.35,
15.10 y 14.65% respectivamente, sin diferencia estadísticas entre ellas. Sin embargo,
las plantas inoculadas con la cepa FsCA, no evidenciaron mayor severidad de necrosis en tejido radicular respecto al control no inoculado (
| >Cepas de F. solani | Severidad (%) | PRMDz |
|---|---|---|
| FsH N. pseudoradicicola | 16.35 | A |
| FsC1 N. falciformis | 15.10 | A |
| FsC7 N. martii | 14.65 | A |
| FsCA Xenoacremonium sp. | 8.45 | B |
| NI | 8.33 | B |
Al inocular las cepas FsC7, FsC1 y FsH y FsCA, sobre cuatro variedades de maíz, las cepas FsC7 y FsH, indujeron necrosis más severas en plantas de maíz “Morado”, promediando 9.9 y 8.1% respectivamente. En un segundo nivel de significancia la cepa C1 provoco necrosis radicular de un 4.8 y 4.7% en maíz Magno y “Morado” respectivamente. Sin embargo, las cepas FsH, FsC7 y FsC1, cuando se inocularon en los híbridos Ocelote® y Faisán®, que se comercializan como resistentes a pudrición radicular inducida por Fusarium en maíz, no evidenciaron mayor severidad de pudrición de raíz que el control no inoculado (
| Cultivar de maíz | Cepa inoculada | Severidad (%) | PRMDz |
|---|---|---|---|
| Morado | FsC7 | 9.9 | A |
| Morado | FsH | 8.1 | AB |
| Magno | FsC1 | 4.8 | BC |
| Morado | FsC1 | 4.7 | BC |
| Morado | FsCA | 4.2 | CD |
| Magno | FsC7 | 3.3 | CD |
| Magno | FsH | 2.9 | CD |
| Faisán | FsH | 2.8 | CD |
| Faisán | FsCA | 2.8 | CD |
| Ocelote | FsC7 | 2.5 | CD |
| Magno | FsCA | 1.7 | CD |
| Faisán | FsC7 | 1.7 | CD |
| Ocelote | FsC1 | 1.5 | CD |
| Ocelote | FsH | 1.4 | CD |
| Faisán | FsC1 | 1.1 | CD |
| Ocelote | FsCA | 1.0 | CD |
| Ocelote | NI | 0.7 | CD |
| Morado | NI | 0.7 | CD |
| Faisán | NI | 0.5 | D |
| Magno | NI | 0.5 | D |
En las plantas de frijol “Flor de Mayo”, la inoculación de las cepas FsC1, FsC7 y FsH, no indujeron más necrosis radicular, que la observada en el tratamiento control no inoculado, ni la cuantificada con la inoculación de la cepa FsCa de Xenoacremonium sp de 0.28 y 0.17% de severidad respectivamente (
| Cepa inoculada | Severidad (%) | PRMDz |
|---|---|---|
| FsC1 N. falciformis | 0.43 | A |
| NI | 0.28 | AB |
| FsC7 N. martii | 0.21 | AB |
| FsCA Xenoacremonium sp. | 0.17 | AB |
| FsH N. pseudoradicicola | 0.03 | B |
Conclusiones
De plantas de agave tequilero con síntomas de marchitez y necrosis en la base del tallo y corona, se aislaron principalmente cepas identificadas morfológicamente como F. solani.
Al comparar sus secuencias ITS1-5.8S-ITS2 de cepas obtenidas de Agave tequilana, en la base de datos del GenBank, se identificaron molecularmente como Fusarium solani y se incluían en el complejo de especies F. solani (FSSC).
Al comparar estas mismas secuencias con la base de datos FUSAROID-ID se determinó alta similitud con las de las especies filogenéticas Neocosmospora martii, N. pseudoradicicola, N. solani y N. falciformis, que se reportan como sinónimas de Fusarium martii, F. pseudoradicicola, F. solani y F. falciformis, evidenciando su variabilidad genética.
Secuencias del fragmento ITS1-5.8S-ITS2 de los aislados obtenidos de Agave tequilana fueron molecularmente diferentes de las f. spp. de F. solani, excepto de las f. spp. eumartii que es muy similar a N. martii y la f. sp. radicicola que es muy similar N. falciformis. Esta información, adicionada a la ausencia de intrones en la secuencia de la fracción 18S (SSU), soporta que entre las cepas obtenidas de A. tequilana ninguna es de la f. sp. phasioli.
Cepas representativas de Neocosmospora aisladas de A. tequilana, fueron fitopatógenas a agave, a maíz morado y a maces sin resistencia a Fusarium. En cambio, maíces resistentes a Fusarium, no fueron susceptibles
En pruebas de patogenicidad, ninguna de las cepas fue patogénica a las plantas
de frijol inoculadas lo que parece confirmar los hallazgos moleculares al respecto.