Introducción
La caracterización y evaluación de los recursos fitogenéticos del aguacate (Per- sea americana) (Lauraceae) constituye un área de investigación estratégica que puede responder a retos en sistemas productivos actuales y futuros (
El nivel de resistencia a P. cinnamomi en germoplasma de aguacate puede ser evaluado de forma indirecta a través de la técnica de inoculación por herida al tallo. Esta técnica de selección emplea la propagación vegetativa de germoplasma de aguacate a través de yemas injertadas sobre portainjertos desarrollados por semilla sexual. Cuando el brote injertado obtiene el desarrollo adecuado, se realiza una pe- queña herida en el tallo en la que se inserta un disco de PDA (Agar-Papa-Dextrosa) con micelio del patógeno, sobre el cual se evalúa el progreso de la lesión durante un tiempo determinado (
El objetivo de este trabajo fue comparar y caracterizar dos métodos de desarro- llo de brotes en injertos de aguacate para determinar niveles de resistencia indirecta a P. cinnamomi a través de la técnica de inoculación por herida al tallo, esto con el propósito de disponer de un método adecuado de multiplicación y de desarrollo de brotes, que permita la mayor fiabilidad al momento de evaluar y seleccionar de forma preliminar genotipos de aguacate con atributos de resistencia al patógeno.
Materiales y Métodos
Área de estudio. El trabajo fue realizado en las instalaciones del Centro de Inves- tigación Palmira de AGROSAVIA, Valle del Cauca, Colombia (03°30’43.6’’ LN y 76°18’53.5’’ LO; 1001 msnm), durante octubre de 2019 a marzo de 2020.
Acondicionamiento de semillas y producción de portainjertos. Para la produc- ción de portainjertos se utilizaron semillas de aguacate antillano (P. americana var. americana) provenientes de árboles reconocidos como donadores de semilla del centro productor de Alvarado (Tolima, Colombia) (
El sustrato utilizado para la germinación fue arena fina previamente solarizada y desinfestada con 2 cm3 L-1 Fosetyl + Propamocard. Las semillas una vez sembradas permanecieron bajo cubierta plástica y polisombra color negro con reducción de luz del 50 % hasta obtener emergencia del epicótilo mayor a 1 cm, el cual marcaba el momento óptimo de trasplante a bolsa de vivero con sustrato. El sustrato utiliza- do en el trasplante fue turba, cascarilla de arroz, arena y vermiculita en relaciones 4:2:1:1, respectivamente, previamente solarizado y desinfestado con 2 cm3 L-1 Fo- setyl + Propamocard.
Propagación vegetativa de germoplasma de aguacate. Se seleccionaron dos ge- notipos de aguacate con diferente grado de resistencia y susceptibilidad a P. cinna- momi de la Colección Colombiana de Germoplasma de Aguacate (AGROSAVIA, Centro de Investigación Palmira). Los genotipos seleccionados fueron aguacate var. ‘Hass’ identificado como genotipo susceptible (
Método convencional de desarrollo de injertos. El método se tomó a partir de las recomendaciones establecidas por Bernal-Estrada y Díaz-Díez (2020), en donde se dan los lineamientos para la propagación de material de siembra en vivero. En este método, las semillas germinadas de aguacate antillano fueron trasplantadas a bol- sas de vivero color negro con capacidad volumétrica de 6 L de sustrato. El injerto de las yemas de aguacate Hass y Duke-7 se realizó a la altura de 20 cm con respecto a la base del tallo del portainjerto, garantizando como mínimo diámetro en el por- tainjerto ≥ 6 mm. Las plántulas injertadas permanecieron bajo cubierta plástica y polisombra color negro con reducción de luz del 50 % hasta obtener prendimiento y alturas de brotes mayor a 30 cm y diámetros de tallo ≥ 6 mm a la altura de 8 cm por encima del punto de injertación (
Método de desarrollo de injertos etiolados. El método fue ajustado a partir del protocolo descrito por
La etiolación de los brotes fue de aproximadamente 25 días, durante este pro- ceso la cámara de etiolación presentó temperatura promedio de 25.8 °C (Intervalo: 23.9-26.9 °C) y humedad relativa promedio del 88.1 % (Intervalo: 76.1-93.5 %). Las plántulas etioladas fueron trasladadas a condiciones de casa malla con cubierta plástica y polisombra color negro con reducción de luz del 50 % cuando registraron
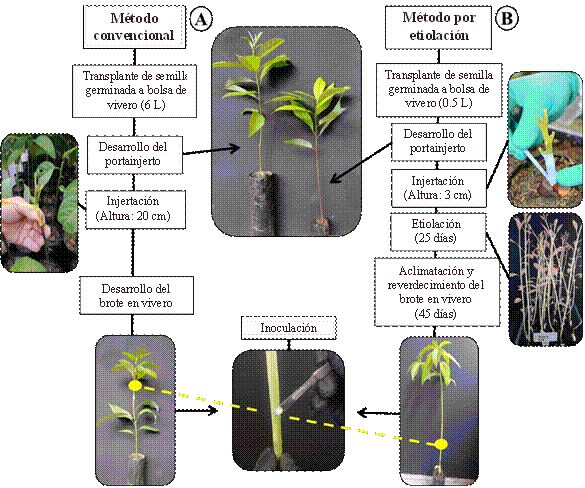
tamaño mayor a 30 cm de alto y diámetros de tallo ≥ 6 mm a la altura de 8 cm por encima del punto de injertación. El tiempo de aclimatación y reverdecimiento de los brotes etiolados fue de 45 días (
La reactivación de los aislamientos se realizó en manzanas verdes de acuerdo con la metodología de
A partir de las necrosis observadas en las manzanas, se tomaron pequeños frag- mentos de tejido sano y necrosado (5 mm2) que fueron sembrados en cajas Petri con un medio de cultivo selectivo para Phytophthora (PDA + fungicidas + antibióticos) (
Inoculación. La inoculación con P. cinnamomi se realizó por medio de la técnica de herida al tallo (
Parámetros de comparación y análisis de datos. En cada método se cuantificó el número de días que tardaron los injertos en alcanzar el diámetro de inoculación (≥ 6 mm) a la altura de 8 cm por encima del punto de injertación.
El área de las lesiones generadas por P. cinnamomi se determinó mediante la medición del largo y ancho cada tres días hasta completar 24 días de evaluación.
Con los datos obtenidos se determinó el Área Bajo la Curva del Progreso de la En- fermedad (ABCPE) y sus respectivos Coeficientes de Variación (CV). Durante todo el periodo de evaluación se documentó la aparición de síntomas de enfermedad a través de la identificación de necrosis, clorosis, marchitez y muerte de los injertos. Las condiciones climáticas de temperatura (°C) y humedad relativa (%) en casa malla fueron monitoreadas con una Miniestación WatchDog 2475.
Se realizaron cortes histológicos de tallos en injertos de aguacate Hass y Duke- 7 con el fin de conocer la estructura tisular de los brotes en cada método antes de realizar la inoculación con P. cinnamomi. Los cortes histológicos fueron realizados con la metodología de
El estudio se evaluó bajo un diseño experimental completamente al azar (DCA) con arreglo factorial 2*2*3, donde el primer factor correspondió a los métodos de desarrollo de brotes evaluados, el segundo factor a los genotipos de aguacate y el tercer factor a los tres aislamientos de P. cinnamomi. Por tratamiento se conside- raron tres repeticiones y por repetición tres plantas como unidad experimental. Se realizaron análisis de varianzas (ANOVA) y las comparaciones de medias se de- terminaron con la prueba de Duncan (p≤0.05). Los datos fueron procesados con el programa estadístico SAS versión 9.4 (Statistical Analysis System) para Windows.
Resultados y Discusión
Se encontraron diferencias estadísticas altamente significativas entre los tiem- pos de desarrollo de los brotes de acuerdo con los métodos evaluados (F=12.18; p≤0.05). En los dos genotipos de aguacate (Hass y Duke-7), los brotes sometidos a etiolación y posterior reverdecimiento en condiciones de vivero presentaron rápido crecimiento y desarrollo en comparación con el método convencional.
El desarrollo del diámetro mínimo estimado (6 mm) a la altura de 8 cm por en- cima del punto de injertación en brotes etiolados de aguacate Hass, se obtuvo a los 101 días y en Duke-7 a los 107 días en promedio; mientras que, en brotes propaga- do por el método convencional el diámetro mínimo en aguacate Hass se obtuvo a los 141 días y en Duke-7 a los 159 días en promedio (
Los diámetros adecuados para inoculación (≥ 6 mm) en cámara de etiolación se obtuvieron entre los 19 y 25 días posterior a la injertación en ambos genotipos.
| Desarrollo vegetativo (días) | |||
|---|---|---|---|
| Método | Genotipo | ||
| Promedio ± D.E.x | CVy (%) | ||
| Convencional | Hass | 141 ± 12.8 a* | 9.07 |
| Duke-7 | 159 ± 14.1 a | 8.86 | |
| Etiolación | Hass | 101 ± 5.2 b | 5.14 |
| Duke-7 | 107 ± 5.9 b | 5.51 | |
| DMSz = 38.2 | |||
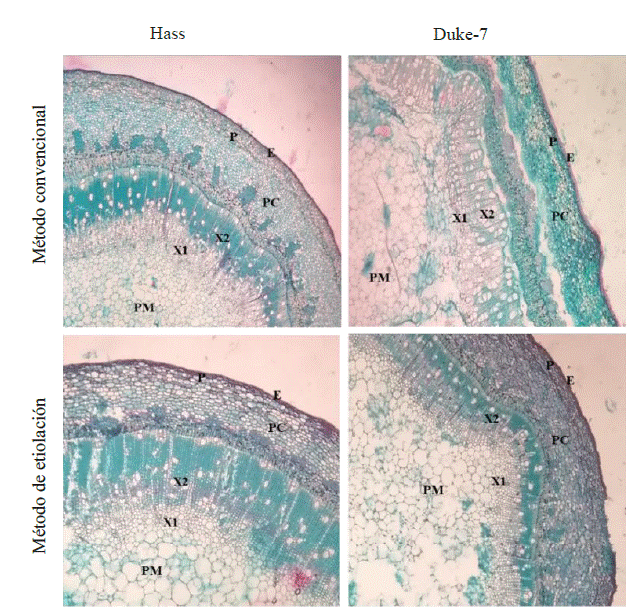
Además, se corroboró que la aclimatación y reverdecimiento por 45 días de los tejidos etiolados, fue adecuado para garantizar la lignificación y anchura de corteza en los brotes de aguacate Hass y Duke-7 (
La etiolación de los tejidos es una respuesta de crecimiento natural de las plan- tas de aguacate que se produce en ausencia de luz, este estado proporciona cambios estructurales a nivel morfológico y anatómico que promueven el desarrollo celular (Hiti-Bandaralage et al., 2017). Los brotes etiolados de los genotipos Hass y Duke- 7 presentaron aumentos estructurales de diámetros de tallo, especialmente en el ancho cortical y de los radios del xilema, favorecido por un agrandamiento celu- lar (
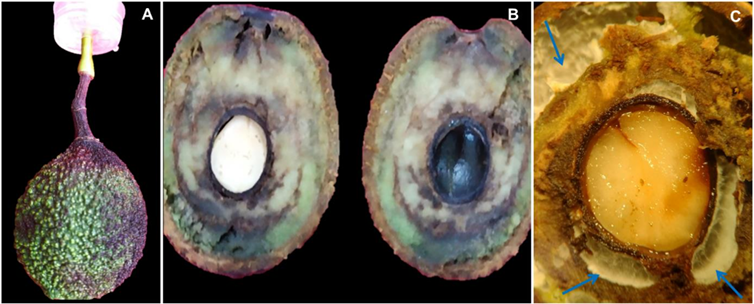
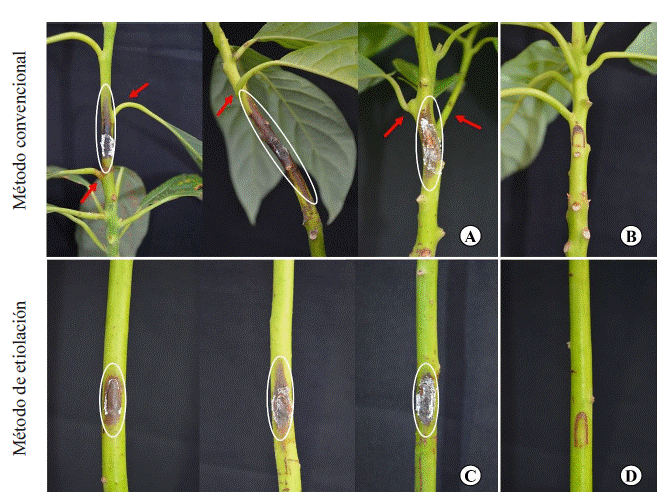
Para los dos métodos de desarrollo de brotes y para los dos genotipos de agua- cate, los tres aislamientos de P. cinnamomi causaron pudriciones en corteza externa en forma de manchas o cancros color café oscuro con exudaciones de apariencia blanquecina; mientras que, en la corteza interna se observó el avance de lesiones y decoloraciones de tejido con pudriciones color marrón o rojizo. Estas observacio- nes son consistentes con lo informado por
infecciones tan efectivas como las generadas con la inoculación de zoosporas en tallos de aguacate (
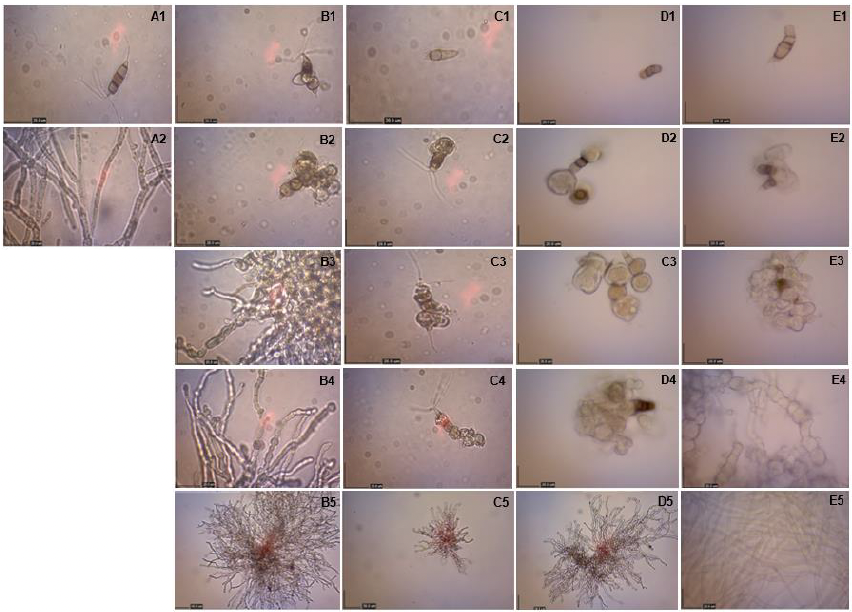
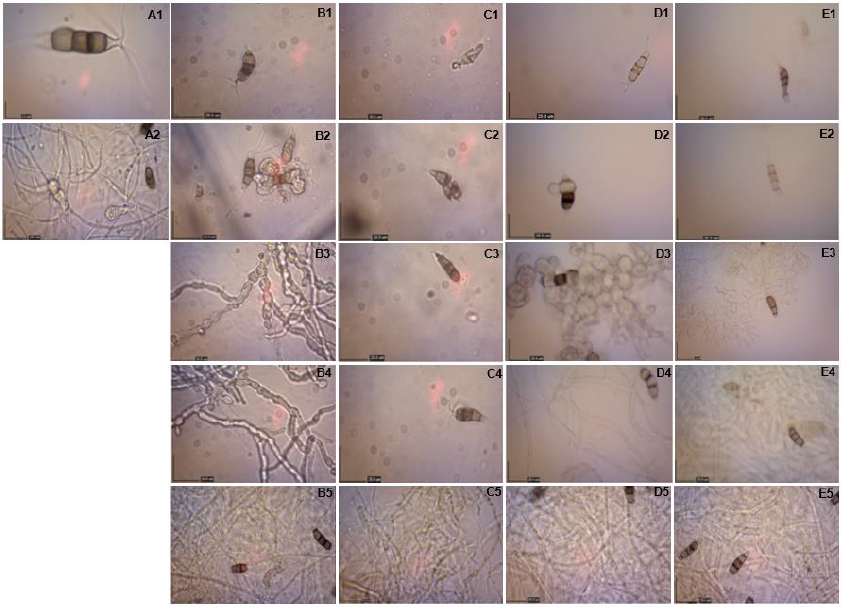
En todas las plantas inoculadas fue posible el reaislamiento de P. cinnamomi como el agente causal del incremento de necrosis en los brotes de aguacate. Los tres aislamientos de P. cinnamomi en medio de cultivo PDA presentaron patrones similares de crecimiento de colonia tipo petaloide con coloración blanca y mice- lio con crecimiento rastrero (
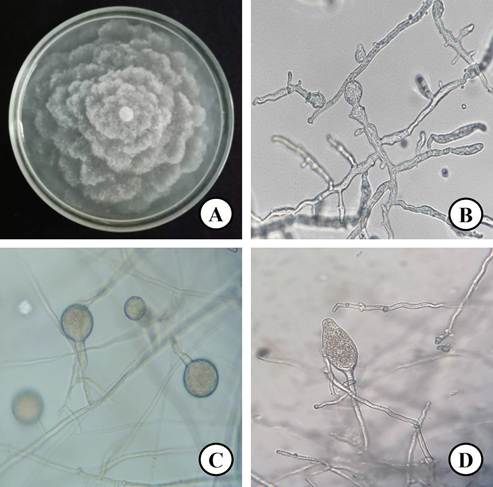
clamidosporas globosas terminales de pared gruesa (
P. cinnamomi.
Síntomas de clorosis, marchitez y decaimiento de hojas y tallos se observaron a partir de los 9 días posteriores a la inoculación (dpi) en ambos métodos de desa- rrollo de brotes. Sin embargo, la muerte de brotes en plántulas propagadas por el método convencional fue evidente a partir de los 15 dpi; mientras que, en brotes etiolados se presentó a los 22 dpi. La mayor mortalidad de brotes ocurrió en Hass y fue mayor en brotes propagados por el método convencional (
| Hass | Duke-7 | ||||
|---|---|---|---|---|---|
| Método | Número de plantas inoculadas | Número de plantas inoculadas | |||
| Mortalidad | Mortalidad | ||||
| Convencional | 27 | 5 (18 %) | 27 | 2 (7 %) | |
| Etiolación | 27 | 3 (11 %) | 27 | 0 (0 %) | |
| Total | 54 | 8 (14.8 %) | 54 | 2 (3.7 %) |
Las condiciones climáticas de la casa malla fueron adecuadas para el desarro- llo de síntomas de enfermedad. En el experimento, la temperatura promedio fue de 23.3 °C (Intervalo: 17.2-31.2 °C) y la humedad relativa promedio del 71.6 % (Intervalo: 42.7-97.8 %), lo cual coincide con condiciones climáticas informadas por
El análisis de varianza para los valores medios del ABCPE no mostró diferencias significativas entre métodos (F=1.84; p=0.1881); sin embargo, se presentaron dife- rencias entre genotipos (F=13.52; p=0.001), aislamientos (F=3.47; p=0.047) y en- tre las interacciones de genotipo*método (F=4.22; p=0.05) y genotipo*aislamiento (F=3.34; p=0.037), esto hizo que cada tratamiento fuera analizado de forma inde- pendiente en cada método y por cada genotipo de aguacate.
En brotes desarrollados por el método convencional, se observó solapamiento en las curvas de crecimiento promedio de las lesiones entre aislamientos a través del tiempo (
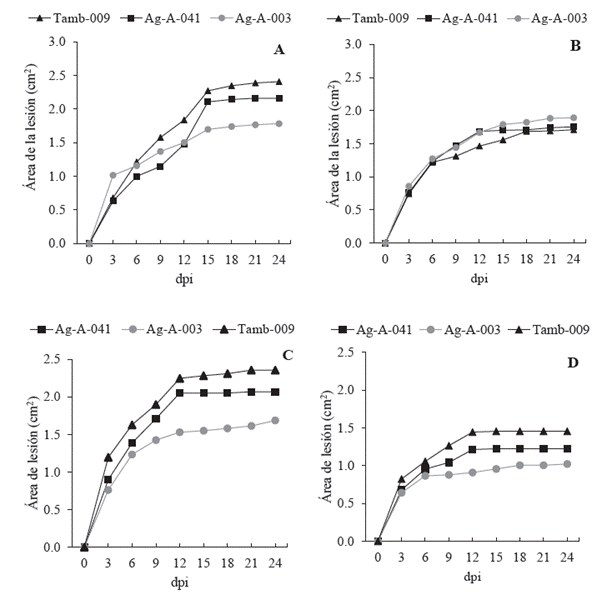
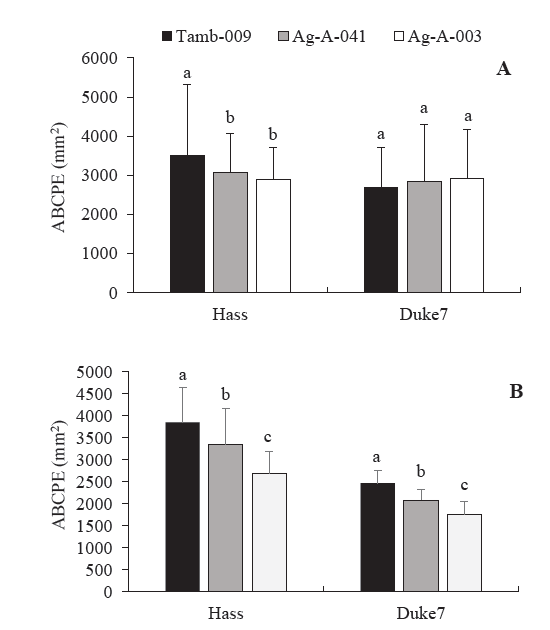
En brotes desarrollados por el método de etiolación, el tamaño de las lesiones (24 dpi) en aguacate Hass para los tres aislamientos varió entre 1.68 y 2.35 cm; mientras que en Duke-7 varió entre 1.02 y 1.45 cm. En este método, se encontraron diferencias estadísticas altamente significativas entre genotipos (F=4.22; p<0.05) y entre aislamientos de P. cinnamomi de acuerdo con los valores medios de ABCPE (p≤0.05). El desarrollo de las lesiones para los tres aislamientos fue mayor en el genotipo Hass comparado con Duke-7. En los dos genotipos el tamaño de la lesión tuvo un crecimiento exponencial durante los primeros 12 dpi, y a partir de los 15 dpi se observó un patrón de crecimiento relativamente estable hasta finalizar el estudio (
Independiente del método de desarrollo de brotes evaluado, el genotipo ‘Hass’ fue el de mayor desarrollo de lesión, ABCPE (3231.7 mm2) y muerte de injertos (14.8 %), lo cual confirma la alta susceptibilidad de este genotipo a P. cinnamo- mi (
Por otro lado, se confirma la alta capacidad infectiva del aislamiento Tamb-009 en los ensayos evaluados, inclusive mayor al aislamiento Ag-A-041, de quien se ha corroborado alta patogenicidad y agresividad en estudios previos de inoculación en tallos de aguacate. Por ejemplo,
La uniformidad del tamaño de las lesiones generadas por los tres aislamientos de P. cinnamomi en los dos genotipos de aguacate, fue mayor en brotes desarrolla- dos por el método de etiolación (
| Método | Genotipo | Aislamiento | ABCPE | CV (%) |
|---|---|---|---|---|
| Convencional | Hass | Tamb-009 | 3504.4 | 60.0 |
| Ag-A-041 | 3081.6 | 64.4 | ||
| Ag-A-003 | 2890.9 | 38.9 | ||
| Duke-7 | Tamb-009 | 2698.1 | 37.6 | |
| Ag-A-041 | 2846.4 | 51.4 | ||
| Ag-A-003 | 2915.6 | 43.3 | ||
| Etiolación | Hass | Tamb-009 | 3853.8 | 20.0 |
| Ag-A-041 | 3358.7 | 24.2 | ||
| Ag-A-003 | 2700.8 | 17.8 | ||
| Duke-7 | Tamb-009 | 2471.4 | 11.1 | |
| Ag-A-041 | 2089.5 | 11.6 | ||
| Ag-A-003 | 1760.5 | 17.2 |
porcentajes de variación fluctuaron entre el 38.9 y el 64.4 % para ambos genotipos (
Conclusiones
Los resultados presentados muestran que las plantas de aguacate obtenidas a partir de la injertación y posterior etiolación de brotes, presentaron rápido cre- cimiento (101-107 días), mayor uniformidad en el diámetro de tallos (6 mm) (CV=5.14-5.51 %) y mayor uniformidad en el desarrollo de las lesiones dentro de las unidades experimentales de cada genotipo al momento de ser inoculadas con P. cinnamomi (CV=11.1-24.2 %), lo que genera una mayor confiabilidad en los resul- tados a la hora evaluar resistencia-susceptibilidad en germoplasma de aguacate. El método de brotes etiolados también permitió discriminar diferencias en los niveles de resistencia entre genotipos y en el grado de agresividad entre aislamientos de P. cinnamomi.
En el método convencional de desarrollo de injertos, la respuesta de infección con P. cinnamomi presentó mayor variabilidad en el crecimiento de las lesiones (CV=38.9-64.4 %), logrando discriminar grados parciales de agresividad entre ais- lamientos, pero no niveles de resistencia entre genotipos.