Introducción
El arroz (Oryza sativa) es uno de los cultivos de mayor importancia a nivel mundial, debido a que es un alimento básico para más de 3.5 billones de personas (
A nivel mundial, el cultivo de arroz es afectado por diferentes patógenos; sin embargo, Acidovorax avenae subsp. avenae, Burkholderia glumae y Xanthomonas oryzae pv. oryzae se ubican entre los principales patógenos bacterianos que se transmiten por semilla (
B. glumae se ha reportado en más de 18 países como un patógeno altamente destructivo en el cultivo de arroz (
75 % en el rendimiento y calidad del grano en climas tropicales y subtropicales, especialmente en regiones con alta temperatura y humedad relativa (
B. glumae puede sobrevivir en semillas, proliferar en tejidos vegetales, colonizar diferentes microambientes en la planta y causar severas epidemias en el cultivo de arroz, debido a su alta eficiencia de transmisión y diseminación por semillas (
Investigadores del Instituto Nacional de Investigaciones Forestales, Agrícolas y Pecuarias (INIFAP), campo experimental Zacatepec, Morelos, son líderes nacionales en el mejoramiento genético de arroz contra diversos agentes patógenos bióticos y abióticos. Desde el 2016, en experimentos de campo en el INIFAP, Zacatepec, Morelos, se han observado semillas de diferentes variedades de arroz con manchas en las glumas. En esta investigación, se asume que estos síntomas son causados por Burkholderia glumae, por la similitud con las manchas en glumas de semilla de arroz reportados para este patógeno como agente causal de la enfermedad del TBP (
El objetivo de esta investigación fue caracterizar e identificar el agente causal de los síntomas de manchado de glumas de variedades de arroz cultivadas en México. La identificación del agente causal de estos síntomas en glumas en semillas de arroz es fundamental para desarrollar futuras estrategias de prevención, manejo y mejoramiento genético en el cultivo de arroz en México.
Materiales y métodos
Material vegetal. En 2022, se analizaron 37 muestras de semillas con diferente porcentaje de daño de manchado y necrosis de glumas de 11 variedades de arroz cultivadas en México (
| Variedad de arroz | Número de muestras | |
|---|---|---|
| Azteca | 4 | |
| Azteca 84 | 1 | |
| GOLFO FL-16 | 1 | |
| INIFLAR R | 2 | |
| INIFLAR RT | 2 | |
| IRGA | 13 | |
| Milagro Filipino | 7 | |
| Morelos A-98 | 2 | |
| Pacífico B1 | 1 | |
| PACÍFICO FL-15 | 3 | |
| Sauta | 1 | |
| TOTAL | 11 | 37 |
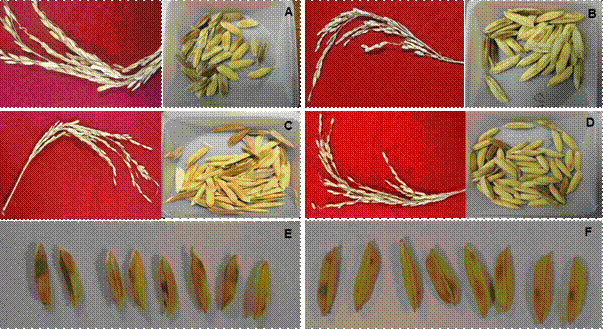
Aislamiento de bacterias. De cada muestra, se desinfestó 1 g de semilla con hipoclorito de sodio (0.5 % v/v) por 5 min y se enjuagó tres veces con agua destilada estéril. Las semillas se colocaron en matraces con 5 mL de amortiguador PBS (Buffer salino de Fosfato) (pH 7.2) y se mantuvieron en agitación a 125 rpm (ORBIT 1900, Labnet) durante 1 h. Posteriormente, se maceraron en un mortero estéril con 5 mL de amortiguador PBS y se realizaron diluciones seriadas hasta 10-2. De cada dilución, se sembraron 20 µL con un asa Digralsky en placas Petri con medio de cultivo sacarosa-fosfato-glutamato (S-PG) semi-selectivo para B. glumae (
Caracterización fisiológica y bioquímica. Los aislados bacterianos se caracterizaron fisiológica y bioquímicamente mediante API 20E (Biomerieux, Durhan, NC, U.S.A.) siguiendo las instrucciones del fabricante. Así mismo, se evaluó su actividad pectinolítica en papa (Solanum tuberosum) y la hipersensibilidad (RH) en tabaco (Nicotiana tabacum cv. xanthi) (
Identificación molecular. El ADN genómico de los aislados bacterianos se obtuvo por el método CTAB 2 % (
| Iniciador | Secuencia (5´-3´) | Gen | Tamaño del amplicón (pb) | Referencia | Temperatura de alineamiento |
|---|---|---|---|---|---|
| 8F | AGAGTTTGATCCTGGCTCAG | 16S rRNA | 1500 | Galkiewicz y Kellogg, 2008 | 57 °C |
| 1492R | GGTTACCTTGTTACGACTT | ||||
| Bglu3F | GTCACGATCGCTCTGTTGTT | Proteína putativa | 174 | Lee et al., 2018 | 54 °C |
| Bglu3R | CATGAATCCACGAAGCCGAG | ||||
| Og-F | CACCTGGGTAGTCTCTGTAGG | Espacio intergénico 16S-23S rRNA | 402 | Kang et al., 2016 | 63 °C |
| Og-R | ACGAGTCTGTCTCGCTCT |
Las condiciones de PCR para los iniciadores 8F-1492R fueron desnaturalización inicial de 94 °C por 5 min, seguido de 35 ciclos de 94 °C por 60 s, 57 °C por 45 s, 72 °C por 60 s y una extensión final de 72 °C por 8 min. Para los iniciadores específicos Bglu3F- Bglu3R, las condiciones de PCR fueron desnaturalización inicial de 95 °C por 2 min, seguido de 35 ciclos de 95 °C por 30 s, 54 °C por 30 s, 72 °C por 30 s y una extensión final de 72 °C por 7 min. Para los iniciadores OgF-OgR, desnaturalización inicial de 95
°C por 2 min, seguido de 35 ciclos de 95 °C por 20 s, 63 °C por 30 s, 72 °C por 30 s y una extensión de 72 °C por 7 min.
Los productos amplificados se detectaron en un gel de agarosa de ácido tris-borato- etileno-diaminotetraacético (EDTA) al 1.5 %, los cuales se purificaron y secuenciaron bidireccionalmente con los tres pares de iniciadores en la empresa Macrogen Inc. (Seúl, Corea del Sur). Las secuencias remitidas se analizaron y se editaron con el programa BioEdit para generar las secuencias consenso de cada cepa. Las secuencias consenso se compararon con las secuencias nucleotídicas de la base de datos del National Center for Biotechnology Information (NCBI; https://
Patogenicidad en semilla de arroz. Se utilizó un cultivo puro de la cepa CPM01 de B. glumae, identificada en este estudio, con 48 h de crecimiento en B de King. Las pruebas de patogenicidad se realizaron en semillas de la variedad Milagro Filipino sin síntomas de manchado de glumas. La inoculación se realizó de acuerdo con los protocolos descritos por
Patogenicidad en plántulas de arroz. Las pruebas de patogenicidad se realizaron en plántulas sanas de las variedades Milagro Filipino e INIFLAR-R, las cuales se cultivan extensivamente en México (SIAP, 2023). Las plántulas se obtuvieron a partir de semillas sanas y desinfestadas como se describió previamente. Las semillas se sembraron en vasos de unicel (1 kg) con tierra estéril (NUTRIGARDEN). La inoculación se llevó a cabo cuando las plántulas desarrollaron la cuarta hoja (
Resultados
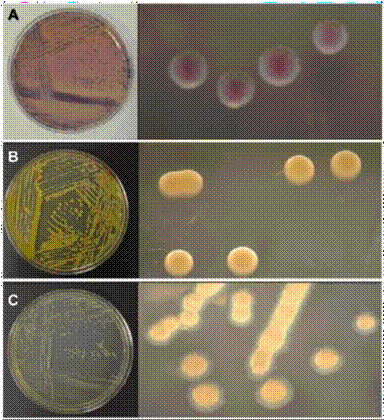
De las 11 variedades de arroz analizadas, las cepas bacterianas con fenotipo similar a
B. glumae se aislaron de siete (63.6 %) variedades: GOLFO FL-16, INIFLAR R, INIFLAR RT, IRGA, Milagro Filipino, Morelos A-98 y PACÍFICO FL-15. No se aislaron cepas con este fenotipo de cuatro (36.3 %) variedades: Azteca, Azteca 84, Pacífico B1 y Sauta (
| Variedad | No. de aislados | ID cepa |
|---|---|---|
| Azteca | 0 | - |
| Azteca 84 | 0 | - |
| GOLFO FL-16 | 1 | CPM04 |
| INIFLAR-R | 1 | CPM01 |
| INIFLAR-RT | 2 | CPM02, CPM03 |
| IRGA | 1 | CPJ01 |
| Milagro Filipino | 3 | CPN01, CPN03, CPJ02 |
| Morelos A-98 | 1 | CPN02 |
| PACÍFICO B1 | 0 | - |
| PACÍFICO FL-15 | 2 | CPM05, CPM06 |
| Sauta | 0 | - |
| TOTAL | 11 |
Caracterización fisiológica y bioquímica. Las 11 cepas fueron Gram negativas, causaron pudrición blanda en papa e indujeron RH en tabaco. Los resultados de la caracterización mediante API 20E distinguieron dos grupos en función del perfil metabólico. El grupo 1 diferenció las cepas (n= 8) aisladas de las variedades GOLFO FL- 16 (CPM04), INIFLAR R (CPM01), INIFLAR-RT (CPM02 y CPM03), Milagro Filipino (CPN01), Morelos A-98 (CPN02) y PACÍFICO FL-15 (CPM05 y CPM06). El grupo 2 diferenció las cepas (n= 3) aisladas de las variedades IRGA (CPJ01) y Milagro Filipino (CPN03 y CPJ02) (
| Prueba | Reacción | Cepas grupo 1y (n= 8) | Cepas grupo 2z (n=3) |
|---|---|---|---|
| ONPG | β-Galactosidasa | + | + |
| ADH | Arginina dihidrolasa | - | + |
| LDC | Lisina descarboxilasa | - | + |
| ODC | Ornitina descarboxilasa | - | + |
| CIT | Utilización de citrato | - | + |
| H2S | Producción de H2S | - | - |
| URE | Hidrólisis de urea | - | + |
| GEL | Hidrólisis de gelatina | + | + |
| GLU | Fermentación de glucosa | + | + |
| MAN | Manitol | + | - |
| INO | Inositol | + | + |
| SOR | Sorbitol | + | - |
| RHA | Ramnosa | - | - |
| SAC | Sacarosa | - | - |
| MEL | Melibiosa | + | + |
| AMY | Amigdalina | + | - |
| ARA | Arabinosa | + | + |
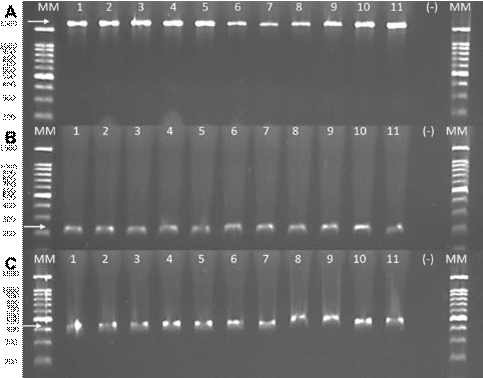
El análisis bioinformático de los fragmentos de los genes 16S rRNA, proteína putativa y del espacio intergénico 16S-23S rRNA de las 11 cepas indicaron una identidad con valor mayor entre 99-100 % con la secuencia CPO23203.1. de B. glumae reportada en el banco de genes del NCBI (
| Gen | No. de secuencias | Cobertura (%) | Identidad (%) | Tamaño del amplicón (pb) | Especie | No. de accesión NCBI |
|---|---|---|---|---|---|---|
| 16S rRNA | 11 | 100 | 99-100 | 1500 | B. glumae | CP023203.1 |
| Proteína putativa | 11 | 100 | 99-100 | 174 | B. glumae | CP023203.1 |
| Espacio intergénico 16S-23S rRNA | 11 | 100 | 99-100 | 402 | B. glumae | CP023203.1 |
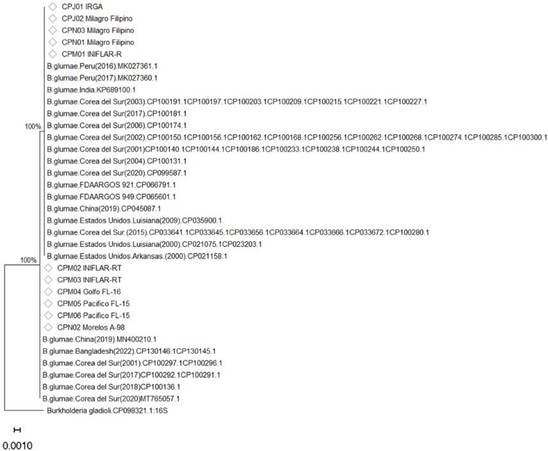
Las secuencias de nucleótidos 16S rRNA de las 11 cepas de B. glumae se registraron en el GenBank del NCBI con los números de acceso: CPM01 (PV435843), CPM02 (PV435844), CPM03 (PV435845), CPM04 (PV435846), CPM05 (PV435847), CPM06 (PV435848), CPN01 (PV435849), CPN02 (PV435850), CPN03 (PV435851), CPJ01 (PV435852), CPJ02 (PV435853).
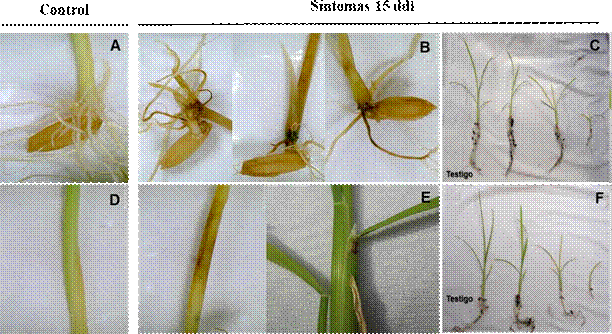
Las bacterias inoculadas en semillas y plántulas se reaislaron e identificaron por PCR como B. glumae con los iniciadores específicos Bglu3 y Og descritos previamente confirmando la patogenicidad de la bacteria.
Discusión
El arroz es un cultivo básico para más del 50 % de la población mundial. En esta investigación, se aisló e identificó a B. glumae en semillas de arroz con síntomas de manchado de glumas. De 37 muestras de semillas analizadas, en nueve de ellas (24.3%) se aislaron colonias bacterianas. Las bacterias desarrollaron colonias redondas, convexas, lisas, de color amarillo y centro rojo-púrpura en el medio semiselectivo S-PG, lo que coincide con la morfología descrita para B. glumae en otras investigaciones (Quesada- González y García-Santamaría, 2014;
La identificación de B. glumae se confirmó por PCR con iniciadores universales y específicos. Con base en las secuencias parciales de los genes 16S rRNA, proteína putativa y espacio intergénico 16S-23S rRNA, las 11 cepas aisladas mostraron 100 % de cobertura e identidad con la cepa CP023203.1 de B. glumae depositada en el NCBI. El análisis de secuencias específicas para esta bacteria, como la del gen de proteína putativa (Bglu3), posibilita la identificación precisa de B. glumae y su discriminación entre poblaciones de B. gladioli, las cuales exhiben una elevada similitud fenotípica con las colonias de B. glumae, así como en el mecanismo de biosíntesis de toxoflavina, causando síntomas idénticos a los de B. glumae en semillas y panículas de arroz (
En esta investigación, B. glumae se aisló de semillas de siete (63.6 %) variedades de arroz: GOLFO FL-16, INIFLAR-R, INIFLAR-RT, IRGA, Milagro Filipino, Morelos A- 98 y PACÍFICO FL-15. La bacteria se aisló con mayor frecuencia (43 %) de las semillas de la variedad Milagro Filipino, lo que resulta de gran relevancia, ya que esta variedad actualmente registra el 86.8 % de la superficie sembrada en México y se cultiva en ocho de los 12 estados productores de arroz, seguida de la variedad tipo Morelos, con 7.6 % de la superficie total cultivada a nivel nacional (SIAP, 2023).
Hasta ahora, los métodos de control químico, biológico y prácticas culturales no han sido eficientes para el óptimo manejo del TBP (
La inoculación de la cepa CPM01 de B. glumae, identificada en este estudio, confirmó la patogenicidad de la bacteria en semillas y plántulas de arroz de las variedades Milagro Filipino e INIFLAR- R, ambas cultivadas extensivamente en México. Se observó una mayor severidad en semillas, raíces y tallos de la variedad Milagro Filipino, lo que sugiere que podrían existir diferentes respuestas de susceptibilidad a la infección de B. glumae en plántulas de las variedades de arroz cultivadas en México.
Hasta la fecha, no existe algún reporte de B. glumae causando la enfermedad del TBP en el cultivo de arroz en México. Sin embrago, en este estudio se evidencia la presencia de B. glumae en semillas con síntomas de manchado de glumas en siete de las 11 variedades de arroz que se cultivan en México; entre ellas, la variedad Milagro Filipino, la cual registra el 86.8 % de la superficie nacional cultivada (SIAP, 2023). Por lo anterior, es necesario profundizar en el conocimiento acerca del origen y vía de ingreso al país, así como la variabilidad genética y virulencia de las poblaciones de B. glumae identificadas en este estudio. En países altamente productores de arroz como Tailandia, Malasia e India, el conocimiento sobre la variabilidad genética y virulencia de B. glumae ha sido importante para el desarrollo de estrategias de manejo del TBP (
En 2016, se evaluaron materiales genéticos de arroz en condiciones del trópico seco y húmedo de México. De esta evaluación, se seleccionaron las variedades INIFLAR- RT, INIFLAR-R, Pacífico FL-15 y Golfo FL-16 al mostrar alto potencial de rendimiento, buena calidad industrial del grano y moderada resistencia a Magnaporthe oryzae (sinónimo de Pyricularia oryzae), al rice hoja blanca virus (RHBV) y a Bipolaris oryzae, agentes causales de las enfermedades “quema del arroz”, “hoja blanca del arroz” y “mancha marrón del arroz”, respectivamente (INIFAP-Fondo Sectorial SAGARPA- CONACyT, 2016); no obstante, en esta evaluación no se consideró a B. glumae.
La incorporación de la resistencia a B. glumae en las variedades de arroz requiere de una evaluación minuciosa de la respuesta de los materiales genéticos disponibles contra el patógeno, con el fin de identificar aquellos con mayor resistencia (
B. glumae en semilla se considera un prerrequisito fundamental para el desarrollo de estudios epidemiológicos, limitar su diseminación, así como para la implementación oportuna de estrategias de contención, prevención y mejoramiento genético de variedades de arroz con resistencia a este patógeno (
Conclusiones
Burkholderia glumae es el agente causal del manchado de glumas en semillas de arroz, se detectó en siete de las once variedades de arroz que se cultivan en México (GOLFO FL- 16, INIFLAR-R, INIFLAR-RT, IRGA, Milagro Filipino, Morelos A-98 y PACÍFICO FL-15 de11). La bacteria se presentó con mayor prevalencia en la variedad Milagro Filipino, la cual es una de las variedades más extensivamente cultivadas en diferentes regiones del país. En esta investigación se reporta, por primera vez, la presencia de B. glumae en México en semillas de arroz con síntomas de manchado de glumas. Estos resultados son de gran importancia para el desarrollo de investigaciones futuras enfocadas en el establecimiento de estrategias de contención y manejo, y en el mejoramiento genético de variedades de arroz cultivadas en México con resistencia a B. glumae.