
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
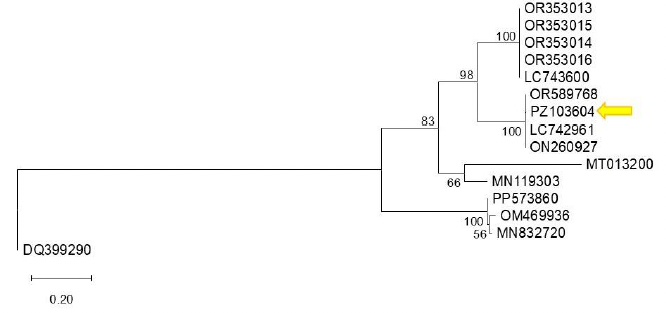
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2024, 42(4)
  • Artículo Científico
  • Número Especial

Potenciales mecanismos de control biológico de Bacillus paralicheniformis TRQ65 contra hongos fitopatógenos

PorValeria Valenzuela Ruiz, Fannie Isela Parra Cota, Gustavo Santoyo, María Isabel Estrada Alvarado, Luis Alberto Cira Chávez, Ernestina Castro Longoria, Sergio de los Santos Villalobos*

Recibido: 01/julio/2024 – Publicado: 18/diciembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-18

Resumen Antecedentes/Objetivo.Bacillus paralicheniformis TRQ65 fue aislada de la rizósfera del trigo (Triticum turgidum subsp. durum) en campos comerciales en el Valle del Yaqui, México. El objetivo del presente estudio es explorar los posibles mecanismos de acción de control biológico de Bacillus paralicheniformis TRQ65 contra hongos fitopatógenos de importancia agrícola, por medio de la secuenciación y explotación del genoma.

Materiales y Métodos. La actividad de biocontrol de esta cepa se cuantificó mediante ensayos in vitro de cultivos duales, evaluando zonas de inhibición contra 11 hongos de importancia agronómica. Se realizó un análisis del genoma completo como minería genómica para evaluar su potencial de control biológico.

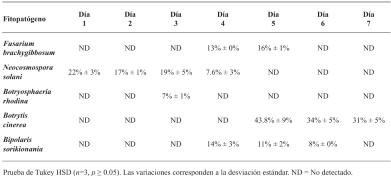
Resultados. La cepa TRQ65 mostró actividad de biocontrol contra el 45% de los hongos estudiados, con la mayor inhibición observada contra Botrytis cinerea (43.8% ± 9% al día 5). Basado en la secuenciación y análisis del genoma (antiSMASH), esta bioactividad podría estar asociada con la biosíntesis de lichenisina, bacilibactina y/o fengicina.

Conclusión. Esta investigación proporciona el primer acercamiento al potencial de actividad de control biológico de la cepa TRQ65. Se necesitan estudios adicionales para validar el uso de Bacillus paralicheniformis TRQ65 como ingrediente activo en inoculantes bacterianos sostenibles para una agricultura amigable con el medio ambiente.

Mostrar Figuras y/o Cuadros
Figura 1. Distribución por categorías de subsistemas de las secuencias de ADN codificantes (CDS) en el genoma de <em>B. paralicheniformis</em> TRQ65, siguiendo el pipeline RAST.
Figura 1. Distribución por categorías de subsistemas de las secuencias de ADN codificantes (CDS) en el genoma de B. paralicheniformis TRQ65, siguiendo el pipeline RAST.
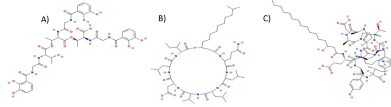
Figura 2. A) Estructura de la bacilibactina (National Center for Biotechnology Information, 2024). La bacilibactina se construye alrededor de un núcleo de trilactona formado por la ciclización de tres moléculas de ácido 2,3-dihidroxi-benzoico (DHB) enlazadas a un andamiaje central de residuos de treonina. El anillo trilactona se forma mediante enlaces de éster entre los grupos hidróxilo de la treonina y los grupos carboxilo del DHB. Cada parte del DHB en la bacilibactina contiene grupos funcionales de catecol (2,3-dihidroxi-benzoato). Estos grupos de catecol son responsables de la unión de alta afinidad dal Fe³⁺. B) Estructura de la Lichenisina (National Center for Biotechnology Information, 2024). La lichenisina contiene un anillo peptídico cíclico formado por 13 residuos de aminoácidos. A este núcleo peptídico cíclico se le une una cola lipídica, típicamente una cadena de ácido graso β-hidroxilado. La cadena peptídica forma una estructura cíclica mediante un enlace amídico entre el grupo carboxilo de un aminoácido y el grupo amina de otro, lo cual lleva a formar una estructural anular estable. C) Estructura de la Fengicina (National Center for Biotechnology Information, 2024). La fengicina consiste en un decapéptidoque forma una estructura cíclica mediante un enlace lactona. A este anillo peptídico se le une un ácido graso β-hidroxilado, cuya longitud puede variar, generalmente entre 14 y 18 átomos de carbono. La secuencia exacta de aminoácidos puede variar ligeramente dependiendo de la isoforma específica de la fengicina.
Cuadro 1. Zona de inhibición (porcentaje) de <em>Bacillus paralicheniformis</em> TRQ65 contra patógenos fúngicos de plantas de <br />importancia agrícola.
Cuadro 1. Zona de inhibición (porcentaje) de Bacillus paralicheniformis TRQ65 contra patógenos fúngicos de plantas de
importancia agrícola.
  • Vol. 2024, 42(4)
  • Artículo Científico
  • Número Especial

Reducción de la marchitez del chile: sinergia de los hongos micorrízicos arbusculares y nanopartículas de plata

PorHilda Karina Sáenz Hidalgo, Esteban Sánchez Chávez, Nuvia Orduño Cruz, Mahendra Rai, Víctor Olalde Portugal, Graciela Dolores Ávila Quezada*

Recibido: 17/junio/2024 – Publicado: 13/diciembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-8

Resumen Antecedentes/Objetivo.El cultivo de chile chilaca (Capsicum annuum) es seriamente afectado por el ataque del oomiceto Phytophthora capsici causante de la marchitez del chile. Los métodos actuales para control de esta enfermedad son ineficientes, por lo que la búsqueda de alternativas más respetuosas con el medio ambiente es de gran importancia. El objetivo de esta investigación fue evaluar el efecto de los hongos micorrízicos arbusculares (HMA) y nanopartículas de plata (AgNPs) para tratar de reducir o postergar la marchitez del chile por P. capsici.

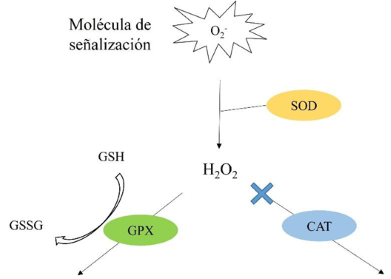
Materiales y Métodos. Se midieron parámetros de crecimiento en plantas de chile inoculadas y sin inocular con HMA de un consorcio comercial TM-73 (Biotecnología Microbiana) y se evaluó el efecto protector de los HMA y AgNPs (NanoID®) contra P. capsici utilizando una escala de severidad para síntomas de marchitez. La respuesta de la planta a la infección del patógeno se evaluó midiendo las actividades de enzimas antioxidantes: PER, SOD, CAT y H2O2.

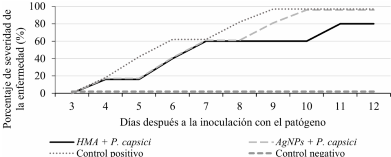
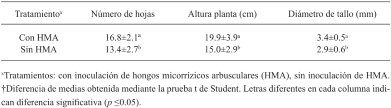
Resultados. Los resultados indicaron que la aplicación de HMA mejoró los parámetros de crecimiento del cultivo de chile chilaca, mientras que la interacción planta-patógeno indujo una respuesta enzimática antioxidante. Los HMA mantuvieron los síntomas de marchitez en o por debajo del 80%, evitando la muerte de la planta. Mientras que las AgNPs (50ppm) retrasaron la mortalidad de las plantas en comparación con el tratamiento control.

Conclusión. El uso combinado de HMA y AgNPs abre opciones para futuras investigaciones en el manejo de enfermedades del chile.

Mostrar Figuras y/o Cuadros
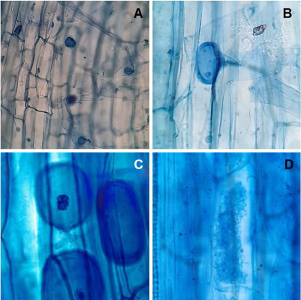
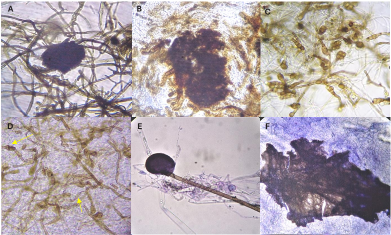
Figura 1. Estructuras micorrízicas en raíces de chile chilaca inoculadas con HMA: A, B, C) Hifas (H) y Vesículas (V), d) Arbúsculos (A).
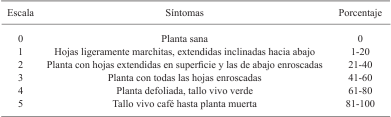
Figura 2. Porcentaje de severidad de la enfermedad causada por <em>P. capsici</em> en chile chilaca. La severidad se evaluó con una escala, durante 12 días después de la inoculación del patógeno.
Figura 2. Porcentaje de severidad de la enfermedad causada por P. capsici en chile chilaca. La severidad se evaluó con una escala, durante 12 días después de la inoculación del patógeno.
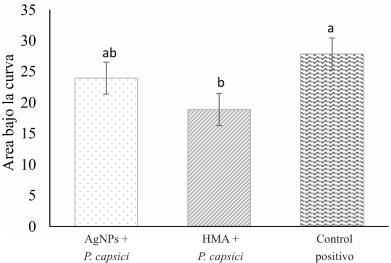
Figura 3. Comparación de medias del área bajo la curva de la escala de síntomas de severidad de la enfermedad causados por <em>P. capsici</em> en chile chilaca. Error estándar 5%. Letras diferentes en cada columna indican una diferencia significativa (p ≤0.05).
Figura 3. Comparación de medias del área bajo la curva de la escala de síntomas de severidad de la enfermedad causados por P. capsici en chile chilaca. Error estándar 5%. Letras diferentes en cada columna indican una diferencia significativa (p ≤0.05).
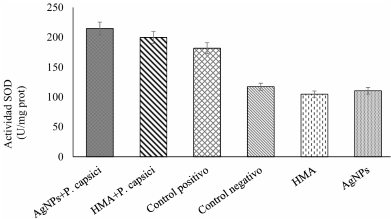
Figura 4. Actividad de Superoxido dismutasa (SOD) en plantas de chile chilaca inoculadas con <em>P. capsici</em> tratadas con HMA y AgNPs.
Figura 4. Actividad de Superoxido dismutasa (SOD) en plantas de chile chilaca inoculadas con P. capsici tratadas con HMA y AgNPs.
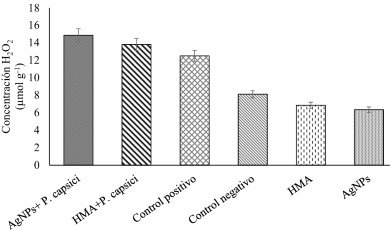
Figura 5. Concentración de H<sub>2</sub>O<sub>2</sub> en plantas de chile chilaca inoculadas con <em>P. capsici</em> tratadas con HMA y Ag-NPs.
Figura 5. Concentración de H2O2 en plantas de chile chilaca inoculadas con P. capsici tratadas con HMA y Ag-NPs.
Figura 6. Actividad de catalasa (CAT) en plantas de chile chilaca inoculadas con <em>P. capsici</em> tratadas con HMA y AgNPs.
Figura 6. Actividad de catalasa (CAT) en plantas de chile chilaca inoculadas con P. capsici tratadas con HMA y AgNPs.
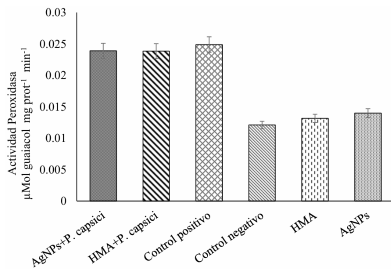
Figura 7. Actividad de peroxidasa (PER) en plantas de chile chilaca inoculadas con <em>P. capsici</em> tratadas con HMA y AgNPs.
Figura 7. Actividad de peroxidasa (PER) en plantas de chile chilaca inoculadas con P. capsici tratadas con HMA y AgNPs.
Figura 8. Efecto en la actividad enzimática en chile chilaca en plantas inoculadas con <em>P. capsici</em>. Superóxido Dismutasa (SOD), Catalasa (CAT), Peroxidasa (PER).
Figura 8. Efecto en la actividad enzimática en chile chilaca en plantas inoculadas con P. capsici. Superóxido Dismutasa (SOD), Catalasa (CAT), Peroxidasa (PER).
Cuadro 1. Escala de severidad de marchitez por <em>P. capsici</em> en <em>C. annuum</em>.
Cuadro 1. Escala de severidad de marchitez por P. capsici en C. annuum.
Cuadro 2. Efecto de HMA en el desarrollo de plantas de chile chilaca (<em>Capsicum annuum</em>).
Cuadro 2. Efecto de HMA en el desarrollo de plantas de chile chilaca (Capsicum annuum).
  • Vol. 2024, 42(4)
  • Nota Fitopatológica
  • Número Especial

Evaluación in vitro de la capacidad micoparásita de Irpex lacteus P7B contra hongos y oomicetes asociados a enfermedades de planta

PorFrancisco Palemón Alberto, Santo Ángel Ortega Acosta*, Erubiel Toledo Hernández, Cesár Sotelo Leyva, Guadalupe Reyes García, Elizabeth Tecomulapa Acatitlán

Recibido: 07/julio/2024 – Publicado: 04/diciembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-21

Resumen Antecedentes/Objetivo.Las enfermedades de los cultivos agrícolas afectan los rendimientos y la calidad de los productos, para su control generalmente se utilizan compuestos químicos sintéticos, éstos causan impactos nocivos al medio ambiente, así como a la salud del ser humano. En este sentido, los microorganismos benéficos pueden ser utilizados en la agricultura como agentes de biocontrol, y contribuir a obtener alimentos en cantidades suficientes e inocuos. El hongo Irpex lacteus se ha reportado como potencial agente de biocontrol. El presente trabajo de investigación tuvo como objetivo evaluar la capacidad micoparásita in vitro del hongo endófito I. lacteus P7B frente a 22 hongos y un oomicete asociados a enfermedades de plantas.

Materiales y Métodos. Se utilizó el aislamiento P7B, previamente detectado como micoparásito, el cual fue identificado molecularmente mediante amplificación y se­cuenciación de la región espaciador transcrito interno (ITS) del ADN ribosómico, con el uso de primers ITS1/ITS4. Las confrontaciones del micoparásito (P7B) con­tra los microorganismos fitopatógenos se realizaron en medio de cultivo PDA, para cada microorganismo se utilizaron tres repeticiones, además de los controles, que consistió en colocar de forma individual a los microorganismos.

Resultados. Los análisis moleculares determinaron que el aislamiento P7B corres­pondió a Irpex lacteus (GenBank: PP922180). Los resultados de los ensayos in vitro indicaron que I. lacteus P7B inhibió a todos los agentes fitopatógenos con los que fue confrontado, la inhibición al 100% por I. lacteus ocurrió aproximadamente en 14 días, excepto para Rhizopus spp., esto fue a los 23 días después de las con­frontaciones.

Conclusión. El presente estudio demuestra que el hongo I. lacteus presentó ca­pacidad micoparásita in vitro de 100% contra los diversos hongos y un oomicete evaluados, por lo que trabajos futuros podrían enfocarse en evaluar su actividad micoparásita en condiciones de campo.

Mostrar Figuras y/o Cuadros
Figura 1. Efecto de la confrontación en cultivo dual en PDA en condiciones <em>in vitro</em> entre <em>I. lacteus</em> P7B contra hongos y un oomicete asociado a enfermedades de plantas.
Figura 1. Efecto de la confrontación en cultivo dual en PDA en condiciones in vitro entre I. lacteus P7B contra hongos y un oomicete asociado a enfermedades de plantas.
Figura 2. Efecto de la confrontación en cultivo dual en PDA en condiciones <em>in vitro</em> entre <em>I. lacteus</em> P7B contra hongos y un oomicete asociado a enfermedades de plantas. P7B = <em>Irpex lacteus</em>. CC47GRO = <em>Corynespora cassiicola</em>. COLTOR1 = <em>Colletotrichum gloeosporioides</em>. PAP-4 = <em>Phytophthora</em> sp. C4 = <em>Macrophomina</em> sp. RIZOPAP = <em>Rhizopus</em> sp. Ddc=días después de la confrontación.
Figura 2. Efecto de la confrontación en cultivo dual en PDA en condiciones in vitro entre I. lacteus P7B contra hongos y un oomicete asociado a enfermedades de plantas. P7B = Irpex lacteus. CC47GRO = Corynespora cassiicola. COLTOR1 = Colletotrichum gloeosporioides. PAP-4 = Phytophthora sp. C4 = Macrophomina sp. RIZOPAP = Rhizopus sp. Ddc=días después de la confrontación.
Figura 3. Efecto de la confrontación <em>in vitro</em> de <em>I. lacteus</em> P7B contra hongos y un oomicete. A= <em>Macrophomina</em> sp. (aislamiento C4) control; B= <em>Macrophomina</em> sp. (aislamiento C4) confrontado con <em>I. lacteus</em> P7B, se observa degradación de esclerocio e hifas. C = <em>Alternaria</em> sp. (aislamiento AL1) control; D = <em>Alternaria</em> sp. (aislamiento AL1) confrontado con <em>I. lacteus</em> P7B, en el que se observa degradación de conidios e hifas. E = <em>Rhizopus</em> sp. (aislamiento RIZOPAP) control; F = Rhizopus sp. (aislamiento RIZOPAP) confrontado con <em>I. lacteus</em> P7B, se observa el esporangio degradado. Imágenes capturadas con el microscopio óptico con el objetivo de 10X (A, B, E y F) y 40X (C y D).
Figura 3. Efecto de la confrontación in vitro de I. lacteus P7B contra hongos y un oomicete. A= Macrophomina sp. (aislamiento C4) control; B= Macrophomina sp. (aislamiento C4) confrontado con I. lacteus P7B, se observa degradación de esclerocio e hifas. C = Alternaria sp. (aislamiento AL1) control; D = Alternaria sp. (aislamiento AL1) confrontado con I. lacteus P7B, en el que se observa degradación de conidios e hifas. E = Rhizopus sp. (aislamiento RIZOPAP) control; F = Rhizopus sp. (aislamiento RIZOPAP) confrontado con I. lacteus P7B, se observa el esporangio degradado. Imágenes capturadas con el microscopio óptico con el objetivo de 10X (A, B, E y F) y 40X (C y D).
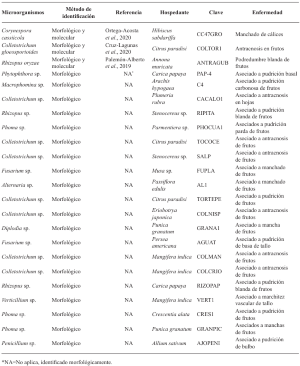
Cuadro 1. Microorganismos utilizados en la evaluación para la confrontación con <em>Irpex lacteus</em> P7B, provenientes de la colección de hongos fitopatógenos del Laboratorio de Fisiología y Biotecnología Vegetal, FCAA-UAGro.
Cuadro 1. Microorganismos utilizados en la evaluación para la confrontación con Irpex lacteus P7B, provenientes de la colección de hongos fitopatógenos del Laboratorio de Fisiología y Biotecnología Vegetal, FCAA-UAGro.
  • Vol. 2024, 42(4)
  • Artículo Científico
  • Número Especial

Aislamiento y caracterización de Exserohilum turcicum, y su inhibición in vitro por compuestos orgánicos volátiles producidos por rizobacterias

PorEstefanía Fonseca Chávez, Irvin Alonso Molina Marañón, Luz Irela Lugo Zambrano, Juan Carlos Martínez Álvarez, Guadalupe Arlene Mora Romero, Jesús Damián Cordero Ramírez, Karla Yeriana Leyva Madriga*

Recibido: 01/julio/2024 – Publicado: 04/diciembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-14

Resumen Antecedentes/Objetivo.El control biológico es una estrategia promisoria para el manejo de enfermedades en la agricultura. En el presente estudio, se evaluó el potencial antifúngico de los compuestos orgánicos volátiles emitidos por rizobacte­rias, en el crecimiento y capacidad infectiva de cuatro aislamientos de E. turcicum obtenidos de plantas de maíz sintomáticas, en Sinaloa.

Materiales y Métodos. Los aislamientos fúngicos fueron caracterizados morfo­lógica y molecularmente, y su patogenicidad se corroboró en un ensayo de hoja desprendida. La capacidad de los COV para inhibir el crecimiento micelial y la infección de hojas de maíz por E. turcicum, se evaluó en ensayos in vitro en placas Petri divididas. Se determinó cualitativamente la producción de ácido cianhídrico bacteriano.

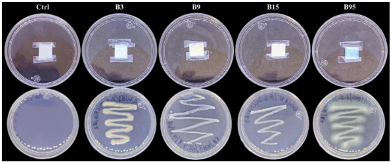
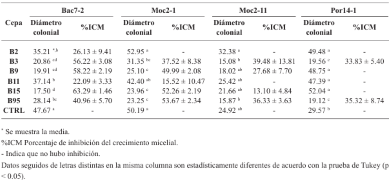
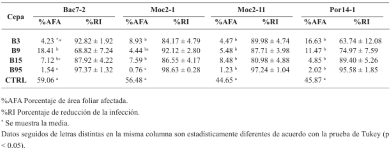
Resultados. El crecimiento micelial de E. turcicum, se redujo por los COV de al menos una rizobacteria, con inhibiciones entre 22 y 63%. La infección de hojas de maíz se redujo entre 63 y 98% en presencia de los COV de las rizobacterias. Se detectó la producción de ácido cianhídrico en las cepas B3 y B9.

Conclusión. La cepa B95 fue más efectiva en la reducción del crecimiento mice­lial e infección por E. turcicum. La producción de ácido cianhídrico podría estar implicada en su efecto antagónico. Se requieren ensayos in planta, para corroborar su efectividad, así como caracterizar su perfil de volátiles.

Mostrar Figuras y/o Cuadros
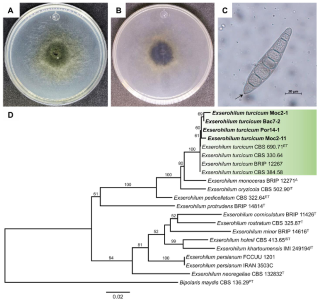
Figura 1. Caracterización de los aislamientos de <em>Exserohilum turcicum</em>. <strong>A-C</strong> Características morfológicas del aislado representativo Bac7-2. <strong>A)</strong> Vista frontal del cultivo en PDA; <strong>B)</strong> Vista trasera del cultivo en PDA; <strong>C)</strong> conidio; <strong>D)</strong> Filograma de Máxima Verosimilitud inferido a partir de la matriz combinada de los marcadores act+ITS+rpb2 de <em>Exserohilum</em>.
Figura 1. Caracterización de los aislamientos de Exserohilum turcicum. A-C Características morfológicas del aislado representativo Bac7-2. A) Vista frontal del cultivo en PDA; B) Vista trasera del cultivo en PDA; C) conidio; D) Filograma de Máxima Verosimilitud inferido a partir de la matriz combinada de los marcadores act+ITS+rpb2 de Exserohilum.
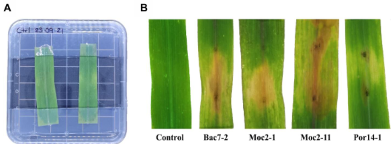
Figura 2. Prueba de patogenicidad. <strong>A)</strong> Sistema de hoja desprendida empleado para la confirmación de patogenicidad. <strong>B)</strong> Síntomas ocasionados por los aislamientos de <em>Exserohilum turcicum</em> en hojas desprendidas de maíz.
Figura 2. Prueba de patogenicidad. A) Sistema de hoja desprendida empleado para la confirmación de patogenicidad. B) Síntomas ocasionados por los aislamientos de Exserohilum turcicum en hojas desprendidas de maíz.
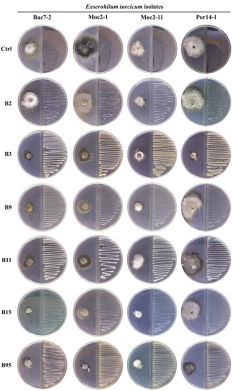
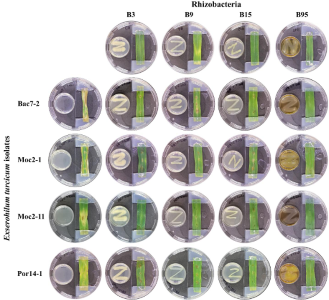
Figura 3. Efecto de los compuestos orgánicos volátiles bacterianos, sobre el crecimiento micelial de <em>Exserohilum turcicum</em>, en placas de Petri divididas.
Figura 3. Efecto de los compuestos orgánicos volátiles bacterianos, sobre el crecimiento micelial de Exserohilum turcicum, en placas de Petri divididas.
Figura 4. Efecto de los compuestos orgánicos volátiles bacterianos, sobre la capacidad infectiva de <em>Exserohilum turcicum</em>, en hojas desprendidas de maíz.
Figura 4. Efecto de los compuestos orgánicos volátiles bacterianos, sobre la capacidad infectiva de Exserohilum turcicum, en hojas desprendidas de maíz.
Figura 5. Detección de ácido cianhídrico volátil, emitido por rizobacterias.
Cuadro 1. Efecto de los compuestos orgánicos volátiles (COV) bacterianos, en el crecimiento micelial de <em>Exserohilum turcicum</em>, en placas divididas.
Cuadro 1. Efecto de los compuestos orgánicos volátiles (COV) bacterianos, en el crecimiento micelial de Exserohilum turcicum, en placas divididas.
Cuadro 2. Efecto de los compuestos orgánicos volátiles (COV) bacterianos, en la capacidad infectiva de <em>Exserohilum turcicum</em> en hojas desprendidas de maíz.
Cuadro 2. Efecto de los compuestos orgánicos volátiles (COV) bacterianos, en la capacidad infectiva de Exserohilum turcicum en hojas desprendidas de maíz.
  • Vol. 2024, 42(4)
  • Artículo Científico
  • Número Especial

Efectividad biológica de extractos de Agave striata y Fouquieria splendens sobre Pythium aphanidermatum y Rhizoctonia solani in vitro

PorJesús Eduardo Ramírez Méndez, Francisco Daniel Hernández Castillo, Gabriel Gallegos Morales, Diana Jasso Cantú, Roberto Arredondo Valdés, Marco Antonio Tucuch Pérez*

Recibido: 02/julio/2024 – Publicado: 23/noviembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-23

Resumen Antecedentes/Objetivo.Pythium aphanidermatum y Rhizoctonia solani son pa­tógenos que afectan cultivos agrícolas. Este estudio tuvo como objetivo evaluar extractos metanólicos de Agave striata y Fouquieria splendens del desierto chihu­ahuense sobre estos hongos, buscando alternativas de control biológico.

Materiales y Métodos. Se aislaron los patógenos de plantas de chile, identificán­dolos por métodos morfológicos y moleculares. Se prepararon extractos metanó­licos de ambas plantas, y se analizó la capacidad antioxidante (CA), contenido de polifenoles totales (CPT), y compuestos antifúngicos por HPLC-MS. La efectivi­dad antifúngica se evaluó en concentraciones de 3.9 a 2000 mg L-1 mediante medio envenenado y se observó el daño en las estructuras de los hongos.

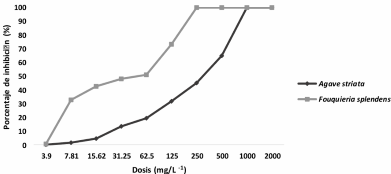
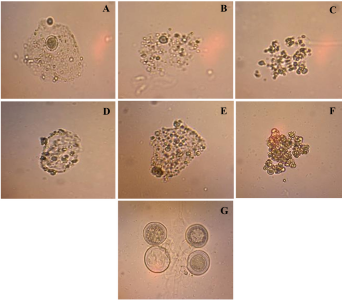
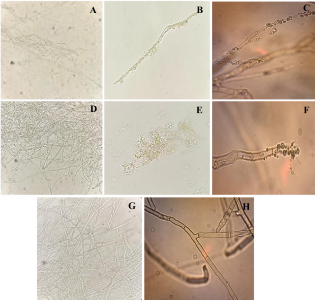
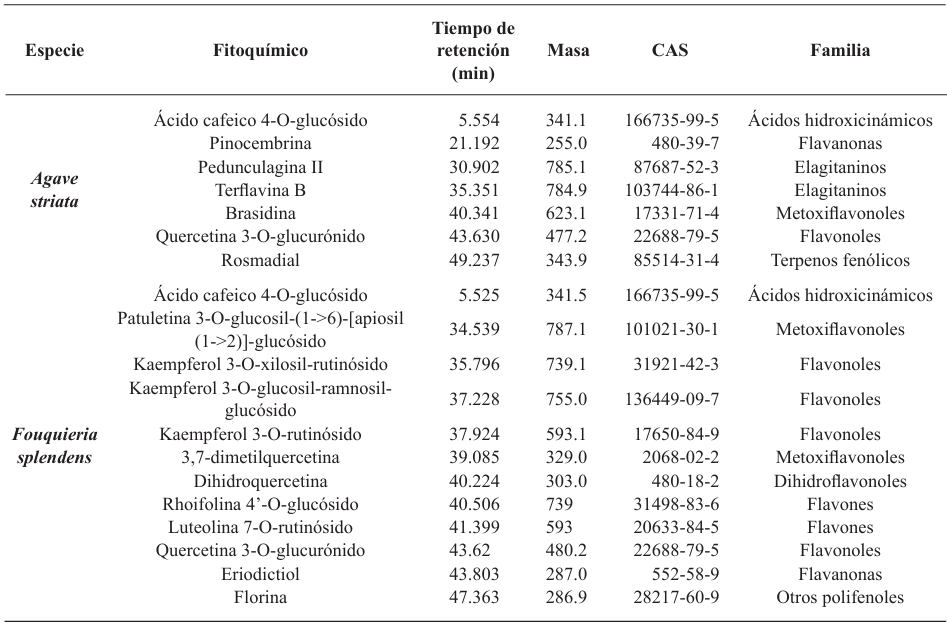
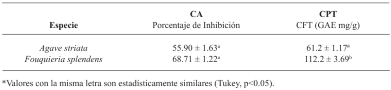
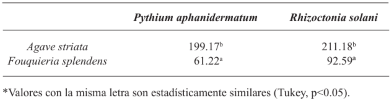
Resultados. Los extractos de F. splendens y A. striata mostraron una CA de 55% y 68%, respectivamente, y CPT de 61 mg/g y 112 mg/g. Ambos contenían áci­do cafeico y quercetina, mientras que F. splendens también presentaba eridictiol, kaempferol, y luteolina; A. striata contenía pinocembrina y terflavina B. F. splen­dens logró 100% de inhibición de P. aphanidermatum a 250 mg L-1 y de R. solani a 500 mg L-1, mientras que A. striata alcanzó 100% de inhibición a 1000 mg L-1 en ambos casos. Los extractos provocaron lisis en oogonios de P. aphanidermatum y fragmentación en el micelio de R. solani.

Conclusión. Los extractos metanólicos de F. splendens y A. striata muestran acti­vidad antifúngica prometedora contra P. aphanidermatum y R. solani, sugiriendo que estos compuestos naturales pueden ser útiles como alternativa biológica para el control de estos patógenos en cultivos agrícolas.

Mostrar Figuras y/o Cuadros
Figura 1. Inhibición de <em>Pythium aphanidermatum</em> por extractos metanólicos de <em>Agave striata</em> y <em>Fouquieria splendens</em> por el método de medio envenenado.
Figura 1. Inhibición de Pythium aphanidermatum por extractos metanólicos de Agave striata y Fouquieria splendens por el método de medio envenenado.
Figura 2. Inhibición de <em>Rhizoctonia solani</em> por extractos vegetales <em>Agave striata</em> y <em>Fouquieria splendens</em> por el método de medio envenenado.
Figura 2. Inhibición de Rhizoctonia solani por extractos vegetales Agave striata y Fouquieria splendens por el método de medio envenenado.
Figura 3. Efecto de extractos vegetales sobre oogonios de <em>Pythium aphanidermatum</em> a 100X. A, B y C) <em>Fouquieria splendens</em>, D, E y F) <em>Agave striata</em>, y G) Control negativo.
Figura 3. Efecto de extractos vegetales sobre oogonios de Pythium aphanidermatum a 100X. A, B y C) Fouquieria splendens, D, E y F) Agave striata, y G) Control negativo.
Figura 4. Efecto de extractos vegetales sobre estructuras miceliales de <em>Rhizoctonia solani</em> a 40X y 100X. A, B, C) <em>Fouquieria splendens</em>, D, E, F) <em>Agave striata</em>, y G), H) Control negativo.
Figura 4. Efecto de extractos vegetales sobre estructuras miceliales de Rhizoctonia solani a 40X y 100X. A, B, C) Fouquieria splendens, D, E, F) Agave striata, y G), H) Control negativo.
Cuadro 1. Compuestos fitoquímicos identificados en extractos metanólicos de <em>Agave striata</em> y <em>Fouquieria splendens</em> caracteri zados mediante cromatografía de líquidos de fase inversa (HPLC-MS).
Cuadro 1. Compuestos fitoquímicos identificados en extractos metanólicos de Agave striata y Fouquieria splendens caracteri zados mediante cromatografía de líquidos de fase inversa (HPLC-MS).
Cuadro 2. Capacidad Antioxidante y Capacidad de Polifenoles Totales de extractos metanólicos de <em>Agave striata</em> y <em>Fouquieria splendens</em>.
Cuadro 2. Capacidad Antioxidante y Capacidad de Polifenoles Totales de extractos metanólicos de Agave striata y Fouquieria splendens.
Cuadro 3. Concentración inhibitoria al 50 % (CI<sub>50</sub>) de extractos metanólicos de <em>Agave striata</em> y <em>Fouquieria splendens</em> sobre <em>Pythium aphanidermatum</em> y <em>Rhizoctonia solani</em>.
Cuadro 3. Concentración inhibitoria al 50 % (CI50) de extractos metanólicos de Agave striata y Fouquieria splendens sobre Pythium aphanidermatum y Rhizoctonia solani.
  • Vol. 2024, 42(4)
  • Artículo de Revisión
  • Número Especial

El género Bacillus como agente de control biológico de plagas y patógenos para una agricultura sostenible

PorFannie Isela Parra Cota, Isabeli Bruno, Mónica García Montelongo, Sebastián González Villarreal, María Fernanda Villarreal Delgado, Liliana Carolina Córdova Albores, Alina Escalante Beltrán, Sergio de los Santos Villalobos*

Recibido: 10/julio/2024 – Publicado: 19/noviembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-34

Resumen Antecedentes/Objetivo. Las bacterias del género Bacillus han sido estudiadas desde su descubrimiento en 1872, por su capacidad de sintetizar metabolitos de interés como las proteínas utilizadas para el control fitopatógenos. El objetivo de la presente investigación fue analizar las especies más destacadas del género Bacillus, así como los principales compuestos producidos por éstas, y las perspectivas en el empleo de este género bacteriano para el control de plagas y enfermedades. 

Materiales y Métodos. Se realizó una exhaustiva búsqueda en artículos y libros científicos para reunir y analizar críticamente la información más relevante respecto al género Bacillus sobre su papel como agente de control biológico.

Resultados. El género Bacillus incluye más de 427 taxones, los cuales pueden clasificarse en distintos grupos, destacando entre los agentes de control biológico (ACB) el grupo de Bacillus cereus, que incluye a B. cereus, B. anthracis, y B. thuringiensis y el grupo B. subtilis, comprendido por B. subtilis, B. licheniformis y B. pumilus, principalmente. B. thuringiensis, a través de genes cry, posee mecanismos moleculares para sintetizar una inclusión cristalina durante la esporulación, que contiene proteínas conocidas como endotoxinas o proteínas Cry. Bacillus subtilis produce sustancias con un alto potencial de control biológico, como lo son los compuestos orgánicos volátiles, así como metabolitos secundarios bioactivos.

Conclusión. Es evidente el potencial del género Bacillus para ser empleados como agentes de control biológico, son muy utilizados para el desarrollo de distintos bioplaguicidas que presentan ventajas sobre otros productos, sin embargo, es necesario continuar realizando investigaciones desde el área in vitro en el laboratorio hasta el campo, para contribuir a garantizar su bioseguridad y efectividad.

Mostrar Figuras y/o Cuadros
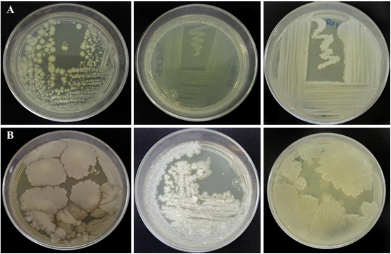
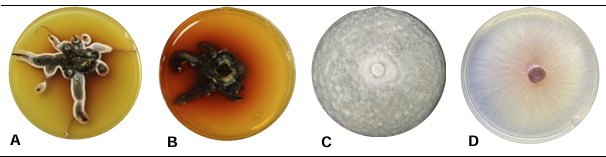
Figura 1. Características macroscópicas de <em>Bacillus cereus</em> (<strong>A</strong>) y <strong>B</strong>. <em>subtilis</em> (<strong>B</strong>), pertenecientes a la Colección de Microorganismos Edáficos y Endófitos Nativos, crecidas a 28 °C en agar nutritivo (COLMENA) (www.itson.edu.mx/COLMENA) (de los Santos-Villalobos <em>et al</em>., 2018).
Figura 1. Características macroscópicas de Bacillus cereus (A) y B. subtilis (B), pertenecientes a la Colección de Microorganismos Edáficos y Endófitos Nativos, crecidas a 28 °C en agar nutritivo (COLMENA) (www.itson.edu.mx/COLMENA) (de los Santos-Villalobos et al., 2018).
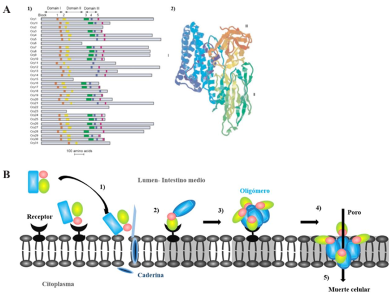
Figura 2. Proteínas Cry. 1-A) Estructura primaria, mostrando la organización de los dominios de miembros representativos de cada familia Cry, 2-A) Estructura terciaria conservada, mostrando las posiciones de los tres dominios. B) Mecanismo de acción de las proteínas Cry en insectos, iniciando una vez que las proteínas Cry son procesadas proteolíticamente por proteasas en el intestino medio del hospedero, separando una sección de aminoácidos en la región N-terminal y en el extremo C-terminal (dependiendo de la naturaleza de la proteína Cry), liberando así fragmentos activos y tóxicos que interactúan con las proteínas receptoras presentes en células intestinales del insecto. Modificado de Villarreal-Delgado <em>et al</em>., 2018.; de Maagd <em>et al</em>., 2001; Xu <em>et al</em>., 2014.
Figura 2. Proteínas Cry. 1-A) Estructura primaria, mostrando la organización de los dominios de miembros representativos de cada familia Cry, 2-A) Estructura terciaria conservada, mostrando las posiciones de los tres dominios. B) Mecanismo de acción de las proteínas Cry en insectos, iniciando una vez que las proteínas Cry son procesadas proteolíticamente por proteasas en el intestino medio del hospedero, separando una sección de aminoácidos en la región N-terminal y en el extremo C-terminal (dependiendo de la naturaleza de la proteína Cry), liberando así fragmentos activos y tóxicos que interactúan con las proteínas receptoras presentes en células intestinales del insecto. Modificado de Villarreal-Delgado et al., 2018.; de Maagd et al., 2001; Xu et al., 2014.
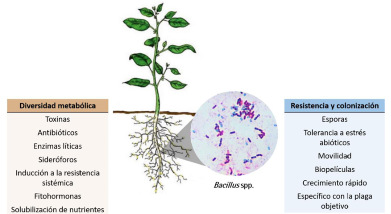
Figura 3. Características de interés de <em>Bacillus</em> spp. para la formulación de bioinoculantes.
Figura 3. Características de interés de Bacillus spp. para la formulación de bioinoculantes.
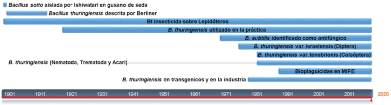
Figura 4. Evolución del género <em>Bacillus</em> como bioplaguicida en la industria.
Figura 4. Evolución del género Bacillus como bioplaguicida en la industria.
  • Vol. 2024, 42(4)
  • Artículo Científico
  • Número Especial

Control biológico y químico in vitro de hongos asociados a la gomosis en cítricos en Yucatán, México

PorCélida Aurora Hernández Castillo, Patricia Rivas Valencia*, Leticia Robles Yerena, Mariana Guadalupe Sánchez Alonso, Emiliano Loeza Kuk

Recibido: 31/mayo/2024 – Publicado: 05/noviembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-03

Resumen Antecedentes/Objetivo. En todas las regiones productoras de cítricos en el mundo la gomosis es una enfermedad que ha causado pérdidas en la producción de cítricos. Esta enfermedad es causada por varios patógenos. Los objetivos fueron, identificar los hongos asociados a la gomosis en huertas de cítricos de Plan Chac, Sacalum, Yucatán; y evaluar alternativas químicas y biológicas para el control de los hongos asociados a la gomosis.

Materiales y Métodos. A partir de tejido vegetal y suelo, se aislaron los hongos asociados. Los aislamientos se identificaron morfológicamente en el tejido vegetal como Lasiodiplodia pseudotheobromae y en suelo como Fusarium solani y Pestalotia spp. La prueba de patogenicidad determinó que L. pseudotheobromae es un agente asociado a ésta enfermedad. Los aislamientos fueron sometidos a pruebas in vitro con fungicidas químicos y agentes antagonistas.

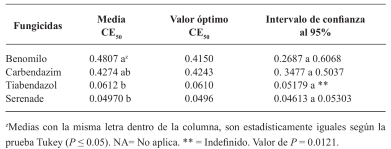
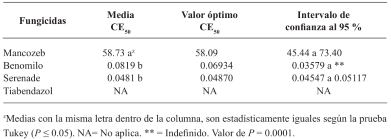
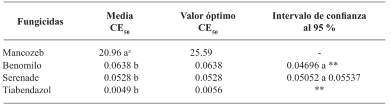
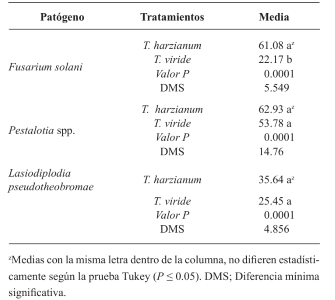
Resultados y Discusión. El Tiabendazol mostró efectividad para F. solani con una concentración efectiva para inhibir el 50 % de la población (CE50) de 0.0612 mg L-1, para Pestalotia spp. se inhibió el crecimiento a todas las concentraciones evaluadas y para L. pseudotheobromae, mostró una CE50 de 0.0049 mg L-1. En el caso de Bacillus subtilis cepa QST 713, disminuyó el crecimiento de F. solani (CE50 0.0496 mg L-1), Pestalotia spp. (CE50 0.0487 mg L-1) y L. pseudotheobromae (CE50 0.0528 mg L-1). Por otro lado, Trichoderma harzianum mostró una mayor inhibición contra F. solani, Pestalotia spp. y L. pseudotheobromae del 61.08, 62.93 y 35.64 %, respectivamente.

Conclusión. En el manejo de gomosis en cítricos se puede incluir con eficiencia el uso de agentes biológicos como Trichoderma y B. subtilis ofreciendo alternativas con menor impacto en el medio ambiente.

Mostrar Figuras y/o Cuadros
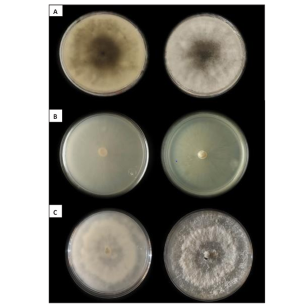
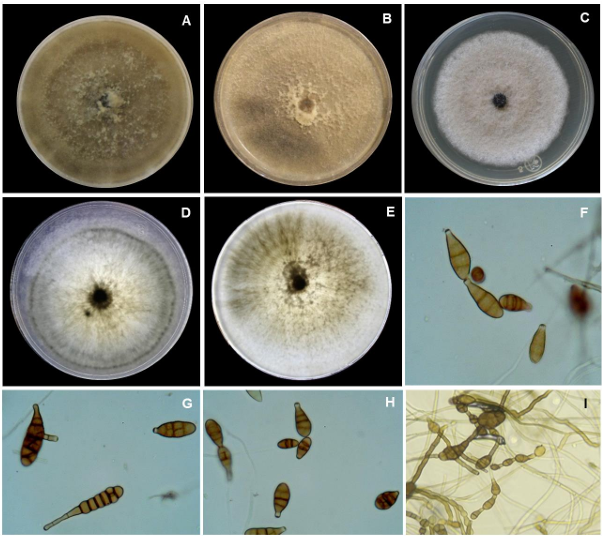
Figura 1. Anverso y reverso de aislamientos en medio de cultivo PDA de hongos asociados a la gomosis de los cítricos. <strong>A)</strong> Colonia de <em>Lasiodiplodia pseudotheobromae</em> de seis días de edad, obtenida de tejido de la corteza. <strong>B)</strong> Colonia de <em>Fusarium solani</em> de seis días de edad. <strong>C)</strong> Colonia de <em>Pestalotia</em> spp. de seis días de edad, ambos obtenidos del suelo.
Figura 1. Anverso y reverso de aislamientos en medio de cultivo PDA de hongos asociados a la gomosis de los cítricos. A) Colonia de Lasiodiplodia pseudotheobromae de seis días de edad, obtenida de tejido de la corteza. B) Colonia de Fusarium solani de seis días de edad. C) Colonia de Pestalotia spp. de seis días de edad, ambos obtenidos del suelo.
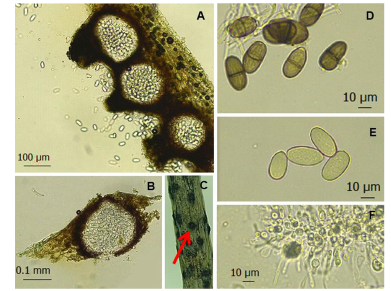
Figura 2. Morfología microscópica de cuerpos fructíferos de <em>Lasiodiplodia pseudotheobromae</em>. <strong>A</strong>, <strong>B</strong> y <strong>C)</strong> Conidiomas picnidiales globosos, <strong>D)</strong> conidios maduros septados con estriados longitudinales, <strong>E)</strong> células conidiógenas y paráfisis y <strong>F)</strong> conidios aseptados inmaduros.
Figura 2. Morfología microscópica de cuerpos fructíferos de Lasiodiplodia pseudotheobromae. A, B y C) Conidiomas picnidiales globosos, D) conidios maduros septados con estriados longitudinales, E) células conidiógenas y paráfisis y F) conidios aseptados inmaduros.
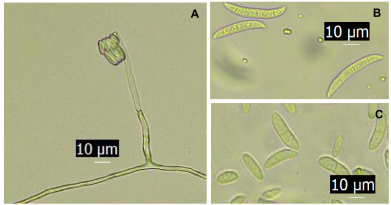
Figura 3. Morfología microscópica de <em>Fusarium solani</em> asociado a la gomosis de los cítricos. <strong>A)</strong> Fiálides y conidios agrupados en cabezuelas, <strong>B)</strong> Macroconidios maduros septados, <strong>C)</strong> Microco nidios maduros.
Figura 3. Morfología microscópica de Fusarium solani asociado a la gomosis de los cítricos. A) Fiálides y conidios agrupados en cabezuelas, B) Macroconidios maduros septados, C) Microco nidios maduros.
Figura 4. Síntomas y signos ocasionados por <em>Lasiodiplodia pseudotheobromae</em> en cítricos, <strong>A)</strong> necrosamiento de tallos, <strong>B)</strong> presencia de picnidios en tallos, y <strong>C)</strong> producción de exudado o goma.
Figura 4. Síntomas y signos ocasionados por Lasiodiplodia pseudotheobromae en cítricos, A) necrosamiento de tallos, B) presencia de picnidios en tallos, y C) producción de exudado o goma.
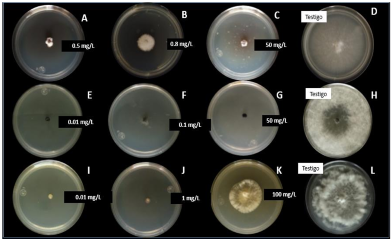
Figura 5. Efecto <em>in vitro</em> de fungicidas contra hongos asociados a la gomosis de los cítricos en cinco días. Crecimeinto de <em>Fusarium solani</em>: <strong>A)</strong> Medio con Tiabendazol al 0.5 mg L<sup>-1</sup>. <strong>B)</strong> Medio con Carbendazim al 0.8 mg L<sup>-1</sup>. <strong>C)</strong> Medio con Benomil al 50 mg L<sup>-1</sup>. <strong>D)</strong> Testigo. Crecimiento de <em>Lasiodiplodia pseudotheobromae</em>: <strong>E)</strong> Medio con Tiabendazol al 0.01 mg L<sup>-1</sup>. <strong>F)</strong> Medio con Benomil al 0.1 mg L<sup>-1</sup>. <strong>G)</strong> Medio con Mancozeb al 50 mg L<sup>-1</sup>. H) Testigo. Crecimiento de <em>Pestalotia</em> spp.:  <strong>I)</strong> Medio con Tiabendazol al 0.01 mg L<sup>-1</sup>. J) Medio con Benomil al 1 mg L<sup>-1</sup>. K) Medio con Mancozeb al 100 mg L<sup>-1</sup>. L) Testigo.
Figura 5. Efecto in vitro de fungicidas contra hongos asociados a la gomosis de los cítricos en cinco días. Crecimeinto de Fusarium solani: A) Medio con Tiabendazol al 0.5 mg L-1. B) Medio con Carbendazim al 0.8 mg L-1. C) Medio con Benomil al 50 mg L-1. D) Testigo. Crecimiento de Lasiodiplodia pseudotheobromae: E) Medio con Tiabendazol al 0.01 mg L-1. F) Medio con Benomil al 0.1 mg L-1. G) Medio con Mancozeb al 50 mg L-1. H) Testigo. Crecimiento de Pestalotia spp.: I) Medio con Tiabendazol al 0.01 mg L-1. J) Medio con Benomil al 1 mg L-1. K) Medio con Mancozeb al 100 mg L-1. L) Testigo.
Figura 6. Efecto de <em>Trichoderma</em> spp. en el desarrollo de hongos asociados a la gomosis de los cítricos. <strong>A)</strong> <em>Fusarium solani</em> vs T. <em>harzianum</em>.  <strong>B)</strong> <em>F. solani</em> vs <em>T. viride</em>. <strong>C)</strong> <em>Pestalotia</em> spp vs <em>T. harzianum</em>. <strong>D)</strong> <em>Pestalotia</em> vs <em>T. viride</em>. <strong>E)</strong> <em>Lasiodiplodia pseudotheobromae</em> vs <em>T. harzianum</em>. <strong>F)</strong> L. <em>pseudotheobromae</em> vs <em>T. viride</em>.
Figura 6. Efecto de Trichoderma spp. en el desarrollo de hongos asociados a la gomosis de los cítricos. A) Fusarium solani vs T. harzianum. B) F. solani vs T. viride. C) Pestalotia spp vs T. harzianum. D) Pestalotia vs T. viride. E) Lasiodiplodia pseudotheobromae vs T. harzianum. F) L. pseudotheobromae vs T. viride.
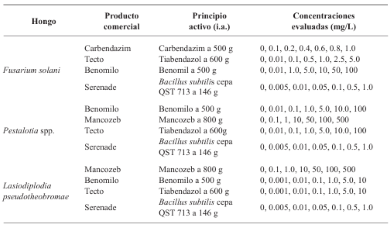
Cuadro 1. Tratamientos evaluados para el control de hongos fitopatógenos asociados a la gomosis de los cítricos en Plan Chac, Sacalum, Yucatán.
Cuadro 2. Concentración media efectiva (CE<sub>50</sub>) (mg L<sup>-1</sup>) de cada fungicida probado para la inhibición del crecimiento micelial <em>in vitro</em> de <em>Fusarium solani</em> obtenidos de huertas de cítricos en Plan Chac, Sacalum, México.
Cuadro 2. Concentración media efectiva (CE50) (mg L-1) de cada fungicida probado para la inhibición del crecimiento micelial in vitro de Fusarium solani obtenidos de huertas de cítricos en Plan Chac, Sacalum, México.
Cuadro 3. Concentración media efectiva (CE<sub>50</sub>) (mg L<sup>-1</sup>) de cada fungicida probado para la inhibición del crecimiento micelial <em>in vitro</em> de <em>Pestalotia</em> spp. obtenidos de huertas  de cítricos en Plan Chac, Sacalum, Yucatán.
Cuadro 3. Concentración media efectiva (CE50) (mg L-1) de cada fungicida probado para la inhibición del crecimiento micelial in vitro de Pestalotia spp. obtenidos de huertas de cítricos en Plan Chac, Sacalum, Yucatán.
Cuadro 4. Concentración media efectiva (CE<sub>50</sub>) (mg L<sup>-1</sup>) de cada fungicida probado para la inhibición del crecimiento micelial <em>in vitro</em> de <em>Lasiodiplodia pseudotheobromae</em> obtenidos de huertas de cítricos en Plan Chac, Sacalum, Yucatán.
Cuadro 4. Concentración media efectiva (CE50) (mg L-1) de cada fungicida probado para la inhibición del crecimiento micelial in vitro de Lasiodiplodia pseudotheobromae obtenidos de huertas de cítricos en Plan Chac, Sacalum, Yucatán.
Cuadro 5. Porcentaje de inhibición de crecimiento micelial por efecto de <em>Trichoderma</em> en contra <em>F. solani</em>, <em>Pestalotia</em> spp. y <em>L</em>. <em>pseudotheobromae</em>.
Cuadro 5. Porcentaje de inhibición de crecimiento micelial por efecto de Trichoderma en contra F. solani, Pestalotia spp. y L. pseudotheobromae.
  • Vol. 2024, 42(4)
  • Nota Fitopatológica
  • Número Especial

Evaluación in vitro de resinas de Jatropha curcas y Bursera linanoe en el control de hongos fitopatógenos aislados de jamaica (Hibiscus sabdariffa)

PorLeonardo Miguel Nava Eugenio, Dolores Vargas Álvarez, Eleuterio Campos Hernández, Flaviano Godínez Jaimes, Roxana Reyes Ríos, Mairel Valle de la Paz*, Daniel Perales Rosas

Recibido: 31/mayo/2023 – Publicado: 05/noviembre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-04

Resumen Antecedentes/Objetivos. Guerrero es importante productor de jamaica (Hibiscus sabdariffa); por lo que el objetivo fue evaluar el efecto inhibitorio de resinas in vitro utilizando cuatro factores: técnica (disco en agar o Kirby Bauer y pozo en agar), resinas (B. linanoe, J. curcas, mezcla de ambas y Tiabendazol), volumen (10, 20 y 30 μL) y hongos fitopatógenos (C. cassiicola, F. oxysporum y F. solani) en el diámetro del halo de inhibición.

Materiales y Métodos. El análisis estadístico se realizó con un diseño factorial completamente al azar de efectos fijos para comparar los 72 tratamientos se usó la prueba de Kruskal-Walis.

Resultados. Se encontró que todos los términos fueron significativos, los efectos principales de técnica, resinas, volumen y hongos en el diámetro del halo de inhibición, pero también las interacciones dobles, triples y cuádruples. .

Conclusión. La resina de B. linanoe mostró mayor inhibición para C. cassiicola y F. oxysporum, en las dos técnicas (técnica de pozo en agar y disco en agar o técnica Kirby Bauer), esto la convierte en el tipo de resina con mayor potencial biocontrolador.

Mostrar Figuras y/o Cuadros
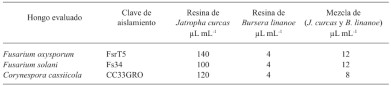
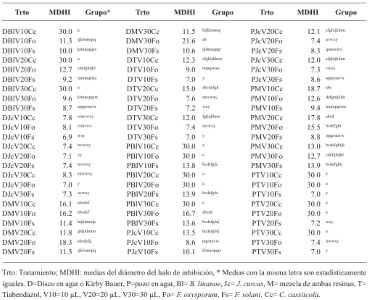
Cuadro 1. Dosis Mínima Inhibitoria (DMI) de resinas de <em>Jatropha curcas</em>, <em>Bursera linanoe</em> y Mezcla de (<em>J. curcas y B. linanoe</em>) contra los hongos asociados a enfermedades de jamaica.
Cuadro 1. Dosis Mínima Inhibitoria (DMI) de resinas de Jatropha curcas, Bursera linanoe y Mezcla de (J. curcas y B. linanoe) contra los hongos asociados a enfermedades de jamaica.
Cuadro 2. Agrupaciones de los 72 tratamientos después de usar la prueba de Kruskal-Wallis
  • Vol. 2025, 43(1)
  • Artículo Científico

Diversidad y taxonomía de Fusarium solani aislado de plantas marchitas de Agave tequilana var azul

PorViviana Montaño Becerrra, Norma Alejandra Mancilla Margalli, Cristina Chávez Sánchez, Martin Eduardo Avila Miranda*

Recibido: 30/noviembre/2023 – Publicado: 25/octubre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2310-5

Resumen Antecedentes/Objetivo. El objetivo del trabajo fue identificar 24 cepas de F. solani aisladas de agave con marchitez, respecto a las nuevas especies filogenéticas; determinar su semejanza molecular con f. spp. de F. solani; determinar su diversidad genética y su capacidad patogénica en agave, frijol (Phaseolus vulgaris) y maíz (Zea mays).

Materiales y Métodos. Secuencias del fragmento ITS1-5.8S-ITS2 de 24 aislados de agave y de las f. spp. de F. solani, se compararon con el GenBank y FUSAROIDID. Secuencias amplificadas del 18S rRNA, se alinearon con secuencias reportadas de F. solani f. spp. phaseoli y batatas, definiendo presencia de intrones. Se determinó diversidad genética con el marcador de DNA RepPCR. Cepas representativas se confrontaron con plántulas de agave, frijol y maíz, evaluando su patogenicidad como severidad de pudrición radicular.

Resultados. Aislados morfológicamente identificados como F. solani, el GenBank los ubicó como F. solani o incluidos en el FSSC, tres cepas se identificaron como Xenoacremonium sp. FUSAROID-ID definió que las secuencias de F. solani eran altamente similares a las de Neocosmospora martii, N. pseudoradicicola, N. solani y N. falciformis. Las secuencias ITS1-5.8S-ITS2 y ausencia de intrones en su SSU, indicó que ninguno es F. solani f. sp. phaseoli. Aislados obtenidos de agave fueron patogénicos a A. tequilana y a un cv de maíz criollo, pero no a maíces con resistencia a Fusarium. Ningún aislado de agave fue patogénico a frijol.

Conclusiones. Cuatro especies filogenéticas del FSSC provocan pudrición radicular en agave; aislados de F. solani de agave no afectaron a maíces resistentes a Fusarium. Es seguro intercalar frijol en el cultivo de agave.

Mostrar Figuras y/o Cuadros
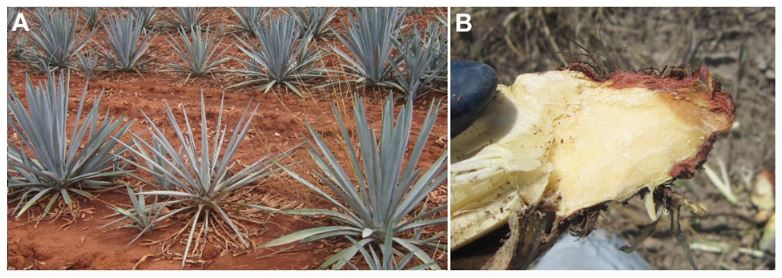
Figura 1. Apariencia de las plantas de las que se obtuvieron los aislados <em>Fusarium solani</em> A) Planta de <em>Agave tequilana</em> var. azul, con síntomas de marchitez del agave. B) Tejido necrótico rojizo típico en la corona y base del tallo.
Figura 1. Apariencia de las plantas de las que se obtuvieron los aislados Fusarium solani A) Planta de Agave tequilana var. azul, con síntomas de marchitez del agave. B) Tejido necrótico rojizo típico en la corona y base del tallo.
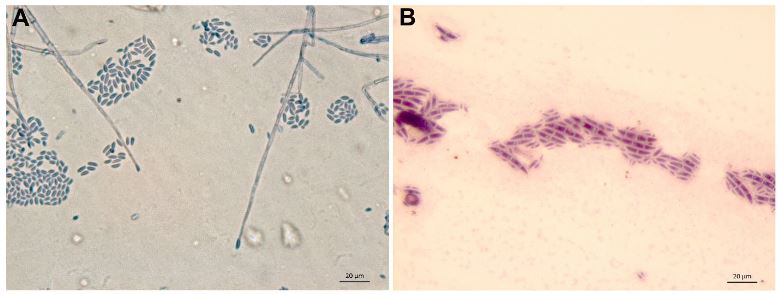
Figura 2. Microfotografía de las principales características morfológicas usadas para identificar aislados de <em>Fusarium solani</em> obtenidos de tejido necrótico en corona o base del tallo de plantas de <em>Agave tequilana</em> var. azul. A). Conidioforos largos con solo un microconidio. B) Macroconidios tipo <em>Fusarium</em>
Figura 2. Microfotografía de las principales características morfológicas usadas para identificar aislados de Fusarium solani obtenidos de tejido necrótico en corona o base del tallo de plantas de Agave tequilana var. azul. A). Conidioforos largos con solo un microconidio. B) Macroconidios tipo Fusarium
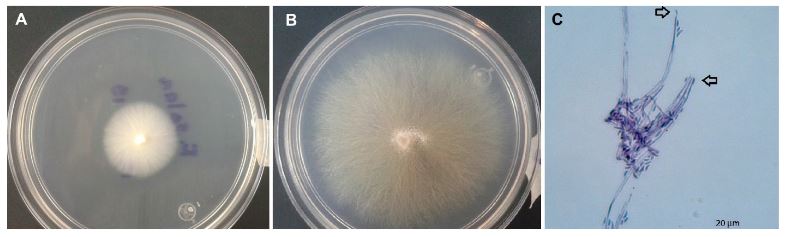
Figura 3. Apariencia de colonias fúngicas después de cinco días de crecimiento en PDA a 28 °C. A) Cepa FsDr molecularmente identificada como <em>Xenoacremonium</em> sp. y B) Cepa FsP de <em>Fusarium solani</em>. C) Microfotografía de micelio y conidióforos de la cepa FsDr con ausencia de macroconidios.
Figura 3. Apariencia de colonias fúngicas después de cinco días de crecimiento en PDA a 28 °C. A) Cepa FsDr molecularmente identificada como Xenoacremonium sp. y B) Cepa FsP de Fusarium solani. C) Microfotografía de micelio y conidióforos de la cepa FsDr con ausencia de macroconidios.
  • Vol. 2024, 42(4)
  • Nota Fitopatológica
  • Número Especial

Actividad antifúngica in vitro de extractos acuosos de Datura discolor obtenidos por procesamiento de alta presión

PorDiana Angelina Urias Lugo, Octavio Ernesto Martínez Ereva, Cecilia de Los Ángeles Romero Urías, Carlos Ramiro Ibarra Sarmiento, Sylvia Adriana Estrada Díaz, Rubén Félix Gastélum, Karla Yeriana Leyva Madrigal, Guadalupe Arlene Mora Romero*

Recibido: 24/mayo/2024 – Publicado: 24/octubre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-01

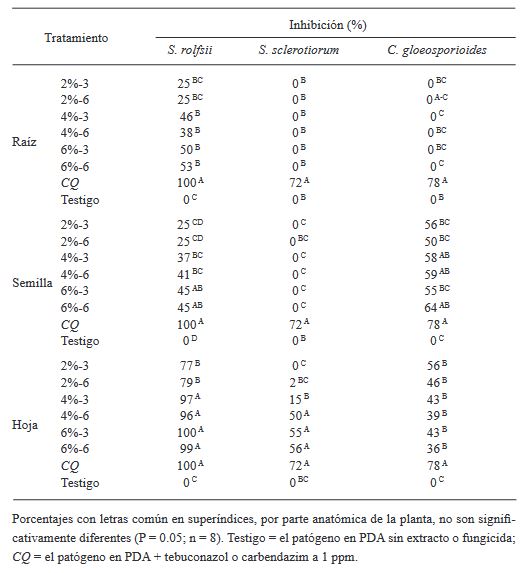
Resumen Antecedentes/Objetivo. El presente trabajo reporta el efecto in vitro de extractos acuosos (2, 4 y 6% p/v) de raíz, semilla y hoja de Datura discolor obtenidos en dos tiempos (3 y 6 minutos) por procesamiento de alta presión, contra Sclerotium rolfsii, Sclerotinia sclerotiorum y Colletotrichum gloeosporioides.

Materiales y Métodos. Se prepararon extractos de raíces, semillas y hojas de D. discolor en una proporción de 1:10 p/v con agua destilada. Se consideraron dos tratamientos continuos de alta presión (600 MPa) manteniendo la presión durante 3 min y otro con presión (600 MPa) mantenida durante 6 min. Los extractos se evaluaron contra S. rolfsii, S. sclerotiorum y C. gloeosporioides. Los experimentos se realizaron en cajas Petri con medio PDA. Se evaluó la eficiencia de los extractos obteniendo el porcentaje de inhibición.

Resultados. Los resultados mostraron porcentajes variables de inhibición de los extractos en las distintas partes de la planta y concentraciones; los extractos de hoja al 6%, independientemente del tiempo de extracción mostraron efectividad contra los tres patógenos, con inhibición de 99 y 100%, de 55 y 56%, y de 43 y 36%, para S. rolfsii, S. sclerotiorum y C. gloeosporioides, a los 3 y 6 minutos respectivamente.

Conclusión. La efectividad del extracto de hoja al 6%, seis meses posteriores a la preparación fue similar al de los extractos en fresco. Estos resultados abren a futuras líneas de investigación orientadas hacia el manejo sustentable de fitopatógenos. Se sugieren estudios sobre efectividad biológica de los extractos en invernadero y campo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Inhibición in vitro del crecimiento micelial de <em>Sclerotium rolfsii</em>, <em>Sclerotinia sclerotiorum</em> y <em>Colletotrichum gloeosporioides</em>. Los tratamientos mostrados son con extractos acuosos de raíz, semilla y hoja de Datura discolor al 2, 4 y 6%, obtenidos por procesamiento a alta presión en dos tiempos 3 y 6.
Cuadro 1. Inhibición in vitro del crecimiento micelial de Sclerotium rolfsii, Sclerotinia sclerotiorum y Colletotrichum gloeosporioides. Los tratamientos mostrados son con extractos acuosos de raíz, semilla y hoja de Datura discolor al 2, 4 y 6%, obtenidos por procesamiento a alta presión en dos tiempos 3 y 6.
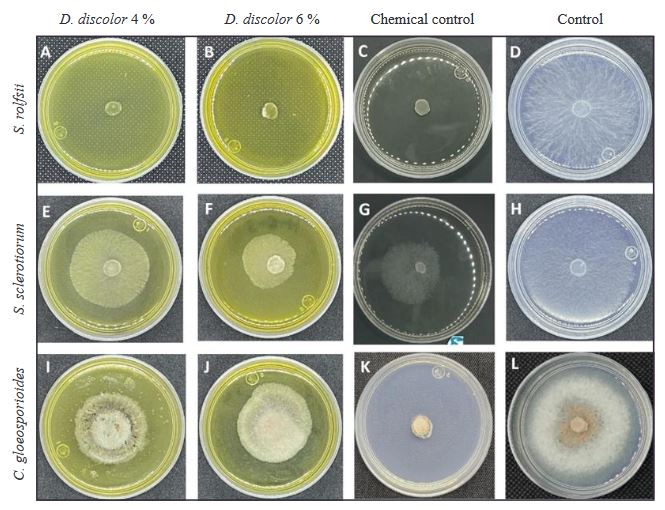
Figura 1. Efecto de extracto acuso de <em>Datura discolor</em> obtenido por procesamiento a alta presión durante 6 minutos. A-D <em>Sclerotium rolfsii</em>, E-H <em>Sclerotinia sclerotiorum</em>, I-L <em>Colletotrichum gloeosporioides</em>. Control químico = tebuconazol o carbendazim 1 ppm).
Figura 1. Efecto de extracto acuso de Datura discolor obtenido por procesamiento a alta presión durante 6 minutos. A-D Sclerotium rolfsii, E-H Sclerotinia sclerotiorum, I-L Colletotrichum gloeosporioides. Control químico = tebuconazol o carbendazim 1 ppm).

Página 10 de 16