
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
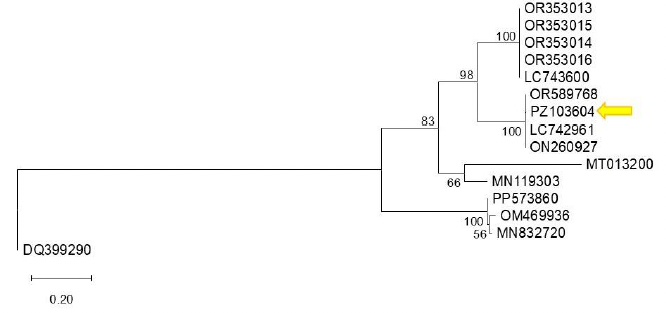
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2024, 42(3)
  • Artículo Científico

Fusarium solani asociado a Cedrela odorata y Swietenia macrophylla y su sensibilidad a fungicidas convencionales

PorAlejo Jairo Cristóbal*, José María Tun Suárez, Arturo Reyes Ramírez, Alberto Uc Várguez, Silvia Edith García Díaz

Recibido: 01/mayo/2024 – Publicado: 12/julio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-5

Resumen Antecedentes/Objetivo. En el estado de Yucatán, México, en los últimos cinco años se produjeron 10 millones de plantas forestales para diversas acciones de conservación y restauración. Las principales limitantes en la producción de estas plantas en vivero, son las enfermedades inducidas por Fusarium spp., que causan pudriciones de tallo y raíz y pérdidas de producción de plantas hasta el 50%. El objetivo del trabajo fue identificar el agente causal asociado con la pudrición y necrosis de tallo y raíz de cedro (Cedrela odorata) y caoba (Swietenia macrophylla) y su sensibilidad in vitro a fungicidas convencionales.

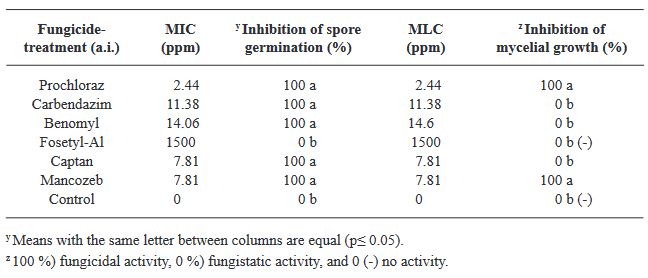
Materiales y Métodos. Se colectaron plantas de C. odorata y S. macrophylla de tres y seis semanas de germinación, respectivamente, con síntomas de necrosis y pudrición indicados; de donde se obtuvieron cinco aislados fúngicos y se identificaron morfológica y molecularmente. Se determinó in vitro por el método de microdilución, la Concentración Mínima Inhibitoria (CMI) de esporas y la Concentración Mínima Letal (CML) de seis fungicidas convencionales de aplicación recurrente en la región (Procloraz, Carbendazim, Benomilo, Fosetyl Al, Captan y Mancozeb) y validar su efectividad y viabilidad en el manejo de esta problemática.

Resultados. La morfología y secuencias moleculares de los aislados, fueron similares a las reportadas para Fusarium solani. La CMI de las esporas de F. solani para Procloraz, Carbendazim, Benomilo, Captan y Mancozeb fueron de 2.44. 11.38, 14.06, 7.81 y 7.81 ppm, respectivamente; Fosetyl Al, no inhibió la germinación de esporas ya que se observó crecimiento micelial normal del hongo en las concentraciones evaluadas.

Conclusión. El Procloraz y el Mancozeb, tuvieron la menor CML con 2.44 y 7.81 ppm, respectivamente.

Mostrar Figuras y/o Cuadros
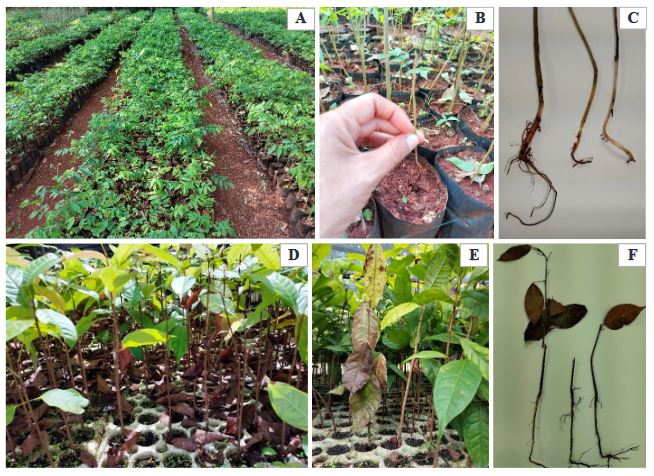
Figura 1. Plantas con síntomas de necrosis y pudrición en tallo y raíz. A, B y C) Plantas de <em>Cedrela odorata</em>. D, E y F) Plantas de <em>Swietenia macrophylla</em>.
Figura 1. Plantas con síntomas de necrosis y pudrición en tallo y raíz. A, B y C) Plantas de Cedrela odorata. D, E y F) Plantas de Swietenia macrophylla.
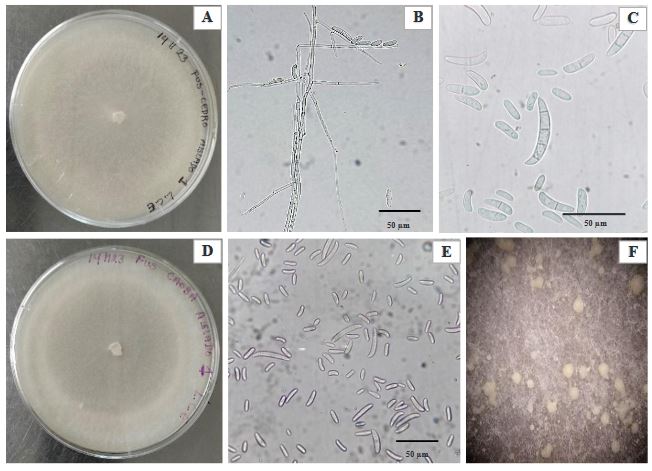
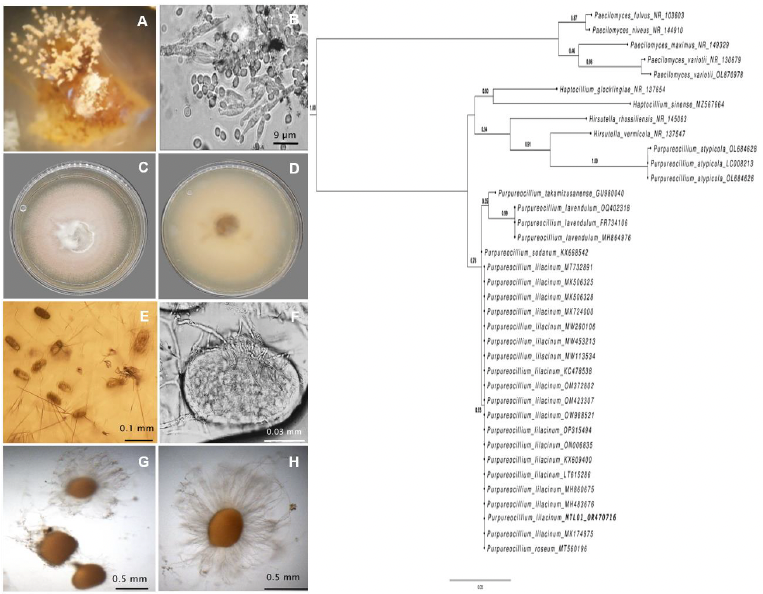
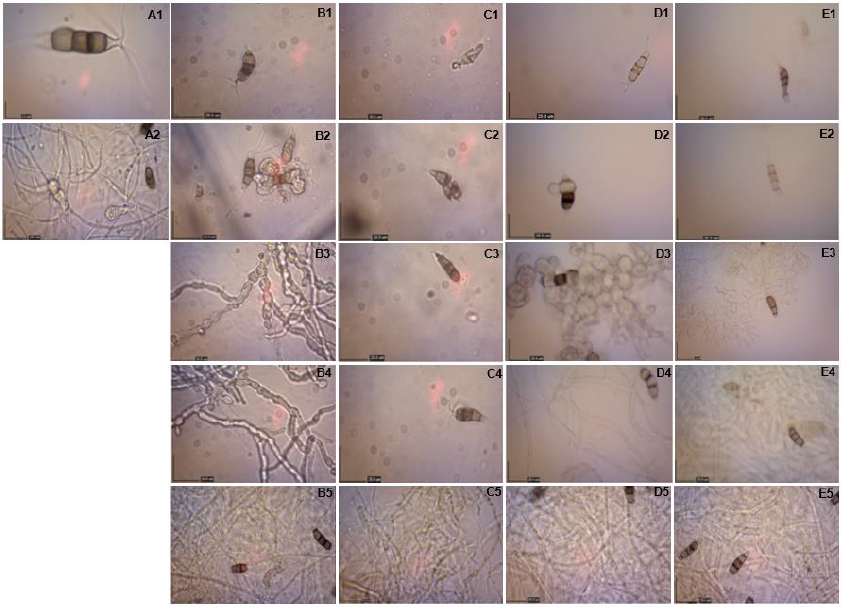
Figura 2. Vista de <em>Fusarium solani</em> de 14 días de desarrollo aislado de <em>Cedrela odorata</em> y <em>Swietenia macrophylla</em>, B) Micelio septado y microconidios de <em>F. solani</em>, C) Macroconidios (3-4 septos) y microconidios (0-1 septo) de <em>F. solani</em> observadas al objetivo 100X, E) Macroconidios y microconidios observadas a 40X y F) Esporodoquios.
Figura 2. Vista de Fusarium solani de 14 días de desarrollo aislado de Cedrela odorata y Swietenia macrophylla, B) Micelio septado y microconidios de F. solani, C) Macroconidios (3-4 septos) y microconidios (0-1 septo) de F. solani observadas al objetivo 100X, E) Macroconidios y microconidios observadas a 40X y F) Esporodoquios.
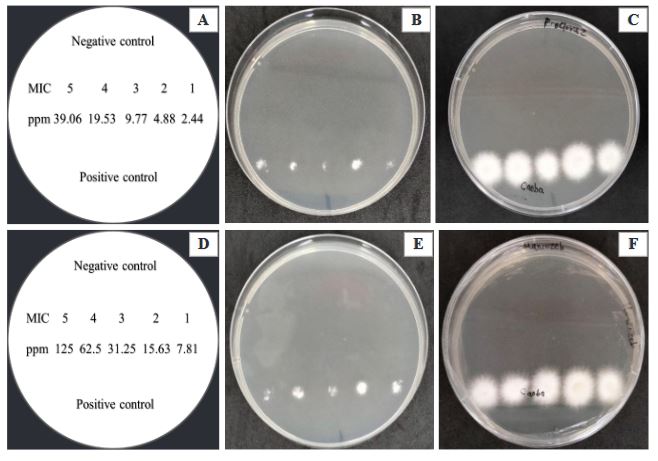
Figura 3. Efecto fungicida de <em>Procloraz</em> y Mancozeb sobre la solución de esporas de <em>Fusarium solani</em> provenientes de la microdilución en placa después de dos días de evaluación. A) Distribución en cajas petri con medio PDA de cinco CMI obtenidas de <em>Procloraz</em>, B y C) Sin crecimiento micelial de <em>F. solani</em> en las CMI de <em>Procloraz</em> evaluadas después de 24 y 48 h, D) Distribución en cajas petri con medio PDA de cinco CMI obtenidas de Mancozeb, E y F) Sin crecimiento micelial de <em>F. solani</em> en las CMI de Mancozeb evaluadas después de 24 y 48 h.
Figura 3. Efecto fungicida de Procloraz y Mancozeb sobre la solución de esporas de Fusarium solani provenientes de la microdilución en placa después de dos días de evaluación. A) Distribución en cajas petri con medio PDA de cinco CMI obtenidas de Procloraz, B y C) Sin crecimiento micelial de F. solani en las CMI de Procloraz evaluadas después de 24 y 48 h, D) Distribución en cajas petri con medio PDA de cinco CMI obtenidas de Mancozeb, E y F) Sin crecimiento micelial de F. solani en las CMI de Mancozeb evaluadas después de 24 y 48 h.
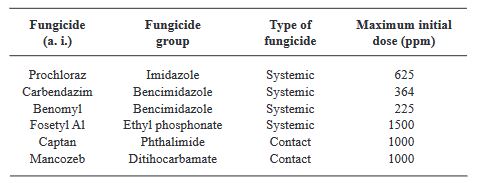
Cuadro 1. Fungicidas convencionales evaluados sobre la germinación de esporas y el crecimiento micelial de <em>Fusarium solani</em> aislado de <em>Cedrela odorata</em> y <em>Swietenia macrophylla</em>
Cuadro 1. Fungicidas convencionales evaluados sobre la germinación de esporas y el crecimiento micelial de Fusarium solani aislado de Cedrela odorata y Swietenia macrophylla
Cuadro 2. Concentración mínima inhibitoria (CMI) y Concentración mínima letal (CML) de fungicidas convencionales sobre <em>Fusarium solani</em> aislado de <em>Cedrela odorata</em> y <em>Swietenia macrophylla</em>
Cuadro 2. Concentración mínima inhibitoria (CMI) y Concentración mínima letal (CML) de fungicidas convencionales sobre Fusarium solani aislado de Cedrela odorata y Swietenia macrophylla
  • Vol. 2024, 42(3)
  • Artículo Científico

Composición química de hidrolatos de Tagetes y evaluación in vitro e in vivo contra hongos asociados a enfermedades en fresa (Fragaria x ananassa)

PorMiguel Ángel Ruíz González, Miguel Ángel Serrato Cruz*, Ernestina Valadez Moctezuma, Roney Solano Vidal

Recibido: 28/enero/2024 – Publicado: 09/julio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2401-5

Resumen Antecedentes/Objetivo. Las plantas aromáticas contienen compuestos químicos con potencial para formular productos antifúngicos. El objetivo de esta investigación fue caracterizar la composición química en hidrolatos de especies de Tagetes y evaluar su efecto in vitro e in vivo contra hongos asociados a enfermedades en fresa.

Materiales y Métodos. Los hidrolatos de T. coronopifolia, T. minuta, T. parryi y T. terniflora fueron analizados mediante cromatografía de gases acoplado a detector selectivo de masas. Se evaluaron in vitro hidrolatos al 100, 75, 50 y 25 % y fungicidas comerciales Promyl contra Botrytis cinerea, Fusarium oxysporum, Rhizoctonia solani y Ridomil Gold contra Phytophthora capsici. En la evaluación in vivo las plantas de fresa se asperjaron con hidrolatos y 24 h después fueron inoculadas con suspensión de esporas 1 x 10⁶. Los datos se analizaron mediante análisis de varianza y pruebas de medias de Tukey (p ≤ 0.05).

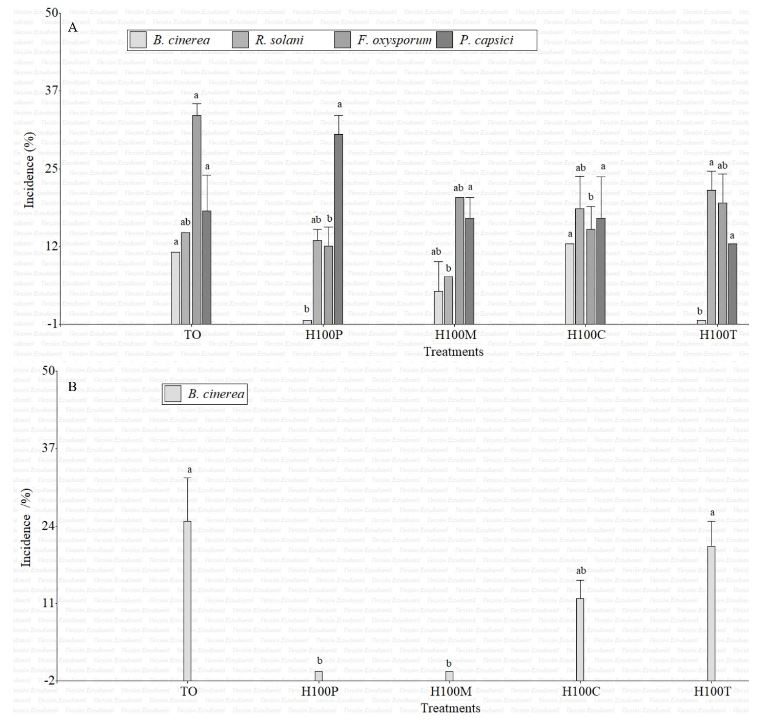
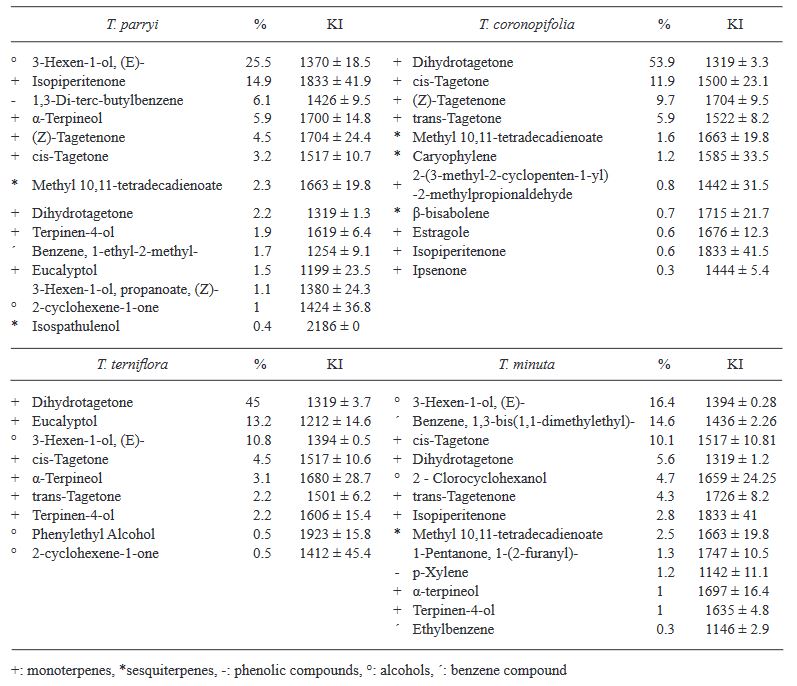
Resultados. Los monoterpenos fueron los compuestos mayoritarios en las cuatro especies. El hidrolato de T. parryi in vitro inhibió totalmente el crecimiento de B. cinerea y fue efectivo como tratamiento preventivo en la evaluación in vivo. F. oxysporum, P. capsici y R. solani fueron menos susceptibles a todos los hidrolatos.

Conclusión. El hidrolato de T. parryi se puede aplicar como preventivo contra B. cinerea en plantas de fresa

Mostrar Figuras y/o Cuadros
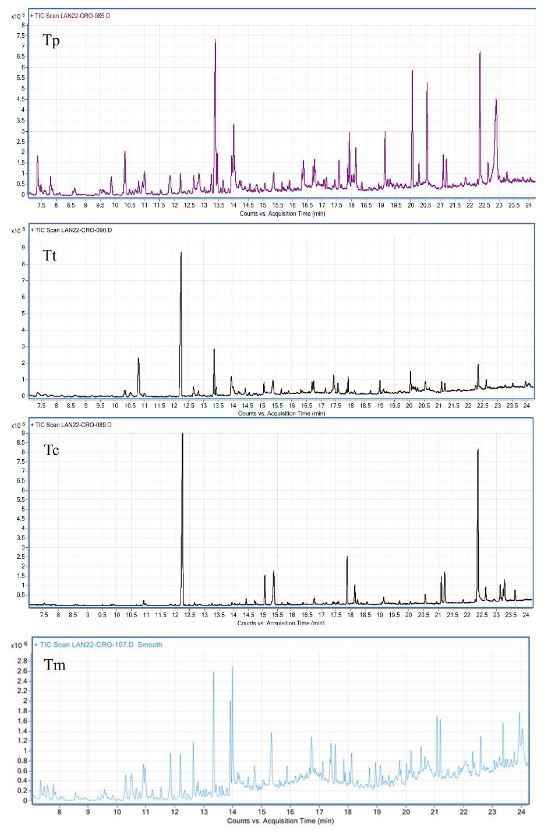
Figura 1. Cromatogramas de hidrolatos de <em>Tagetes</em> parryi (Tp), <em>T. terniflora</em> (Tt), <em>T. coronopifolia</em>, (Tc) y <em>T. minuta</em> (Tm), donde se observan los picos de los compuestos identificados.
Figura 1. Cromatogramas de hidrolatos de Tagetes parryi (Tp), T. terniflora (Tt), T. coronopifolia, (Tc) y T. minuta (Tm), donde se observan los picos de los compuestos identificados.
Figura 2. Incidencia de <em>B. cinerea</em>, R. solani, <em>F. oxysporum</em> y <em>P. capsici</em> en frutos (A) y flores (B) de fresa a los tres días posteriores a su inoculación en plantas testigo (TO) y sometidas a tratamientos con hidrolatos al 100 % de <em>Tagetes</em> coronopifolia (H100C), <em>T. minuta</em> (H100M), <em>T. parryi</em> (H100P) y <em>T. terniflora</em> (H100T).
Figura 2. Incidencia de B. cinerea, R. solani, F. oxysporum y P. capsici en frutos (A) y flores (B) de fresa a los tres días posteriores a su inoculación en plantas testigo (TO) y sometidas a tratamientos con hidrolatos al 100 % de Tagetes coronopifolia (H100C), T. minuta (H100M), T. parryi (H100P) y T. terniflora (H100T).
Cuadro 1. Abundancia relativa (%) e índices de Kovats (IK) ± desviación estándar de compuestos químicos encontrados en hidrolatos de <em>Tagetes</em> coronopifolia, <em>T. minuta</em>, <em>T. parryi</em> y <em>T. terniflora</em> analizados por GC/MSD
Cuadro 1. Abundancia relativa (%) e índices de Kovats (IK) ± desviación estándar de compuestos químicos encontrados en hidrolatos de Tagetes coronopifolia, T. minuta, T. parryi y T. terniflora analizados por GC/MSD
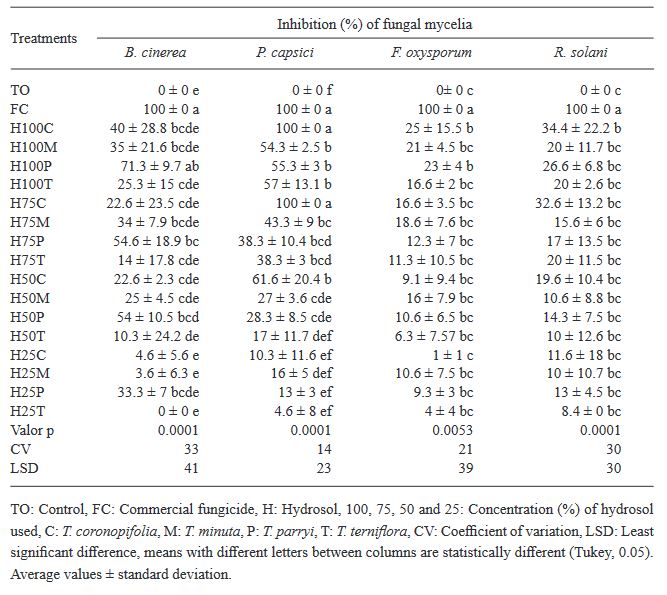
Cuadro 2. Porcentaje de inhibición <em>in vitro</em> de micelio de hongos después de la aplicación de hidrolatos de especies de <em>Tagetes</em>
Cuadro 2. Porcentaje de inhibición in vitro de micelio de hongos después de la aplicación de hidrolatos de especies de Tagetes
  • Vol. 2024, 42(2)
  • Nota Fitopatológica

Agentes fúngicos causales de la enfermedad de la Mancha Negra en cactus (Opuntia ficus-indica) en Colima, México

PorZoila Lizbeth Chavarría Cervera, Andrés Quezada Salinas, Pedro Valadez Ramírez, Wilberth Chan Cupul, Jesús Enrique Castrejón Antonio, Juan Carlos Sánchez Rangel*

Recibido: 16/enero/2024 – Publicado: 02/abril/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2401-2

Resumen Antecedentes/Objetivo. El nopal verdura (Opuntia ficus-indica) es una planta de importancia económica, social y cultural en México, sin embargo, una de las enfermedades recurrentes a esta especie vegetal es la Mancha Negra (MN), la cual se genera por el ataque de diferentes hongos fitopatógenos, de ahí que la identificación de los agentes causales de la MN en los cultivos comerciales de nopal sea una etapa relevante para el manejo agronómico eficiente de la MN. El objetivo de este estudio fue identificar los hongos fitopatógenos causales de la MN en plantaciones de nopal verdura en el estado de Colima, México.

Materiales y Métodos: Se recolectaron 50 cladodios de 50 plantas con síntomas de MN en plantaciones comerciales de Colima, de los hongos aislados se comprobó la patogenicidad de ellos mediante los postulados de Koch, así mismo se identificaron molecularmente aquellos hongos que generaron los síntomas más severos de MN.

Resultados. Se aislaron 35 hongos de plantas sintomáticas de MN, de los cuales 20 presentaron un crecimiento micelial distinto. Solo seis hongos generaron síntomas de MN; siendo tres de ellos los responsables de generar síntomas severos en cladodios: Alternaria alternata, Corynespora cassiicola, and Neoscytalidium dimidiatum.

Conclusión. La MN es generada por diferentes hongos fitopatógenos, pero este es el primer reporte de C. cassiicola y N. dimidiatum como agentes causales de la MN en nopal verdura.

Mostrar Figuras y/o Cuadros
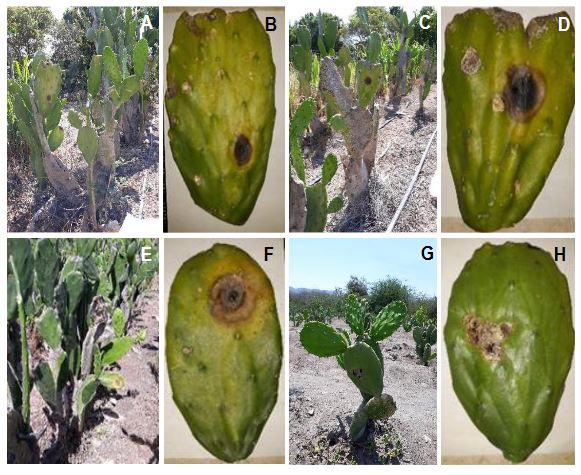
Figura 1. Plantas y cladodios con síntomas de Mancha Negra en cultivos de nopal verdura (O. ficus-indica) en diversas plantaciones en el estado de Colima, México. A) El Espinal, B) Agua Dulce, C) Las Guásimas, D) Juluapan
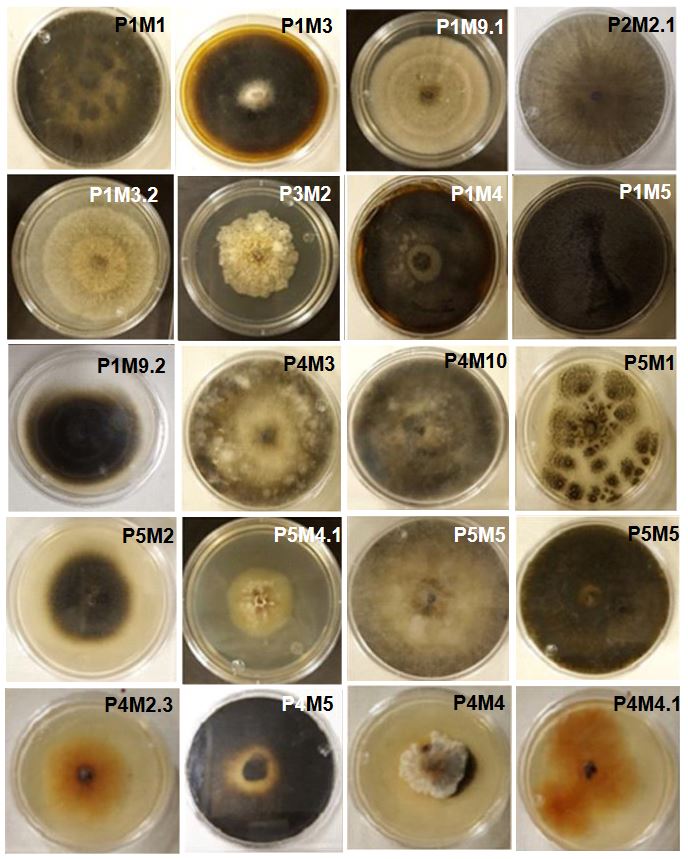
Figura 2. Hongos aislados de los cladodios de nopal verdura con síntomas de Mancha Negra. Los aislamientos se encuentran depositados en la colección micológica de la Facultad de Ciencias Biológicas y Agropecuarias de la Universidad de Colima para una caracterización morfológica y molecular posterior.
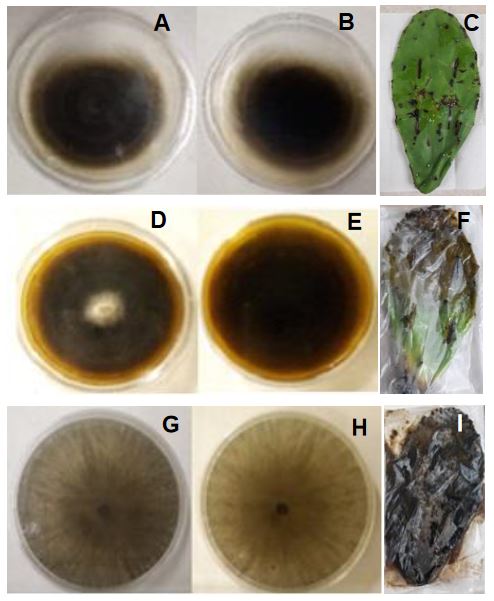
Figura 3. Hongos aislados de cladodios con síntomas de Mancha Negra que indujeron lesiones severas en la prueba de patogenicidad. Crecimiento en PDA de <em>Alternaria alternata</em> (anverso, A; reverso, B) y síntomas inducidos en el cladodio (E), <em>Corynespora cassiicola</em> (D, E, F), y <em>Neoscytalidium dimidiatum</em> (G, H, I).
Figura 3. Hongos aislados de cladodios con síntomas de Mancha Negra que indujeron lesiones severas en la prueba de patogenicidad. Crecimiento en PDA de Alternaria alternata (anverso, A; reverso, B) y síntomas inducidos en el cladodio (E), Corynespora cassiicola (D, E, F), y Neoscytalidium dimidiatum (G, H, I).
  • Vol. 2024, 42(2)
  • Nota Fitopatológica

Armillaria gallica asociado a la pudrición de raíz del aguacate en Michoacán

PorJeny Michua Cedillo*, Daniel Téliz Cedillo, Salvador Ochoa Ascencio, María del Pilar Rodríguez, Alejandro Alarcón, Carlos de León, Gerardo Vázquez Marrufo

Recibido: 30/julio/2023 – Publicado: 21/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2307-7

Resumen Antecedentes/Objetivo. La pudrición de la raíz y muerte de árboles de aguacate asociada a Armillaria es una enfermedad emergente con alto impacto económico en huertos establecidos en áreas previamente forestales de Michoacán. Actualmente se desconoce con precisión las especies asociadas con síntomas típicos de marchites, amarillamiento, producción excesiva de frutos y micelio subcortical en raíz. El objetivo de esta investigación fue caracterizar molecularmente las especies de Armillaria asociadas a la pudrición de la raíz del aguacate.

Materiales y Métodos. Para la caracterización morfológica y molecular, en extracto de malta-agar, se procesaron 60 muestras de raíz de árboles provenientes de tres huertos comerciales con presencia putativa de Armillaria. ADN de aislados purificados se amplificaron por PCR con genes rpb2 y TEF α-1. Las secuencias se alinearon con MAFFT y se realizaron las filogenias con algoritmo de máxima verosimilitud en IQ-TREE.

Resultados. Se identificaron dos especies de forma consistente: A. gallica (20%) con 100% de homología y A. mexicana (25%) con 98%. Otra especie que representó el 55% de los aislados no se alineo con ningún grupo. Morfológicamente, los basidiocarpos de A. gallica concuerdan con las características de esta especie. Conclusiones. Este es el primer reporte de A. gallica asociado a la pudrición de la raíz del aguacate en Michoacán.

Mostrar Figuras y/o Cuadros
Figura 1. Morfotipos de <em>Armillaria</em> obtenidos de huertas de aguacate de diferentes municipios de la franja aguacatera de Michoacán. A. Anverso, B. Reverso.
Figura 1. Morfotipos de Armillaria obtenidos de huertas de aguacate de diferentes municipios de la franja aguacatera de Michoacán. A. Anverso, B. Reverso.
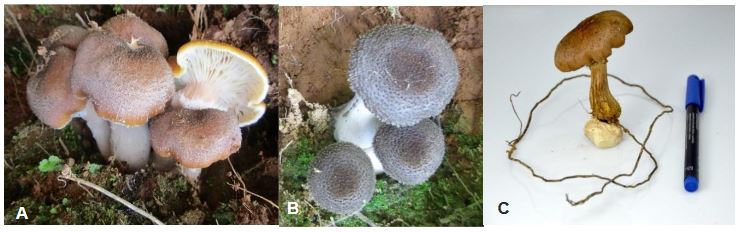
Figura 2. Basidiocarpos de <em>Armillaria gallica</em> colectados en Charapan, Michoacán. A. Basidiocarpos maduros de <em>Armillaria gallica</em> (píleo amarillo con escamas); B. Basidiocarpos de <em>A. gallica</em> inmaduros con coloración grisácea y escamas; C. Basidiocarpo solitario con rizomorfo en la base.
Figura 2. Basidiocarpos de Armillaria gallica colectados en Charapan, Michoacán. A. Basidiocarpos maduros de Armillaria gallica (píleo amarillo con escamas); B. Basidiocarpos de A. gallica inmaduros con coloración grisácea y escamas; C. Basidiocarpo solitario con rizomorfo en la base.
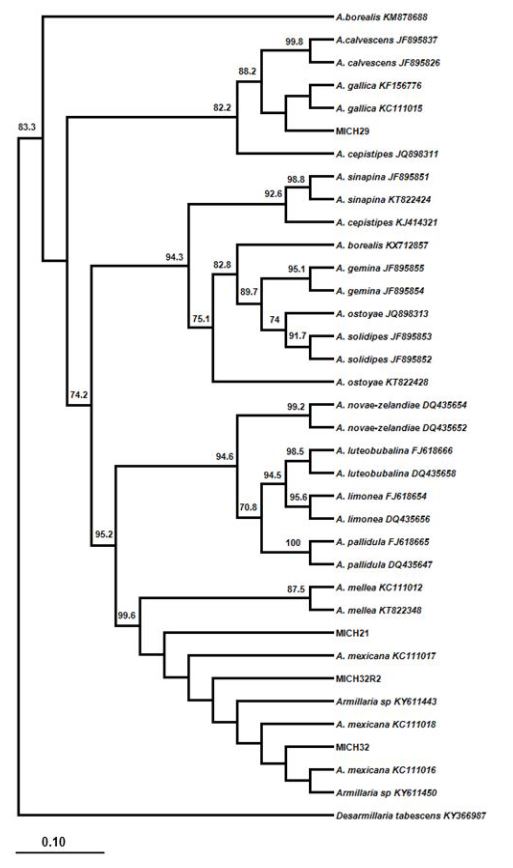
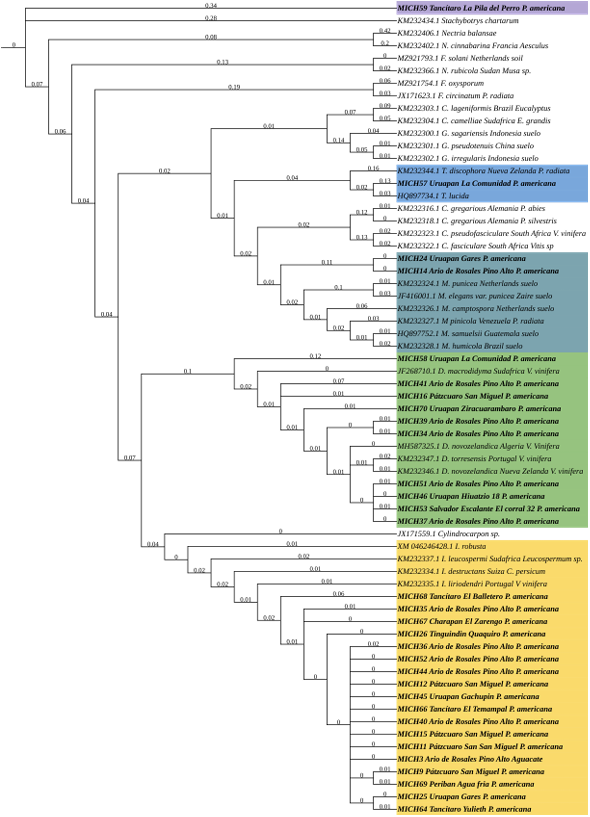
Figura 3. Análisis filogenético con secuencias de especies de <em>Armillaria</em> provenientes de aguacate y del GenBank amplificadas con el gen tef α-1. El aislado MICH29 se agrupó directamente con la especie <em>Armillaria gallica</em>. Las cepas MICH32 y MICH32R están estrechamente relacionadas con <em>Armillaria</em> mexicana, mientras que MICH21 se agrupó entre el clado de A. mellea y <em>A. mexicana</em>
Figura 3. Análisis filogenético con secuencias de especies de Armillaria provenientes de aguacate y del GenBank amplificadas con el gen tef α-1. El aislado MICH29 se agrupó directamente con la especie Armillaria gallica. Las cepas MICH32 y MICH32R están estrechamente relacionadas con Armillaria mexicana, mientras que MICH21 se agrupó entre el clado de A. mellea y A. mexicana
Figura 4. Análisis filogenético de secuencias de especies de <em>Armillaria</em> provenientes de aguacate y del GenBank amplificadas con el gen rpb2. La cepa MICH29 y MICH29R se agrupan directamente con la especie <em>Armillaria gallica</em>, mientras que MICH21 está relacionada con A. mellea
Figura 4. Análisis filogenético de secuencias de especies de Armillaria provenientes de aguacate y del GenBank amplificadas con el gen rpb2. La cepa MICH29 y MICH29R se agrupan directamente con la especie Armillaria gallica, mientras que MICH21 está relacionada con A. mellea
  • Vol. 2024, 42(2)
  • Artículo de Revisión

Conservación de enemigos naturales de Diaphorina citri y su impacto en Huanglongbing: Análisis y perspectivas

PorHipolito Cortez Madrigal*

Recibido: 30/julio/2023 – Publicado: 11/abril/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2307-3

Resumen Diaphorina citri es un importante vector de Candidatus Liberibacter asiaticus (CLas), agente causal del HLB, la enfermedad más devastadora de los cítricos. Aunque se reconoce la importancia del control biológico, los insecticidas son la principal herramienta de control. Sin embargo, su empleo debería ser cauteloso, pues pudiera interferir con el control de plagas reguladas biológicamente. Diaphorina citri cuenta con un amplio abanico de enemigos naturales; sin embargo, solo se aprovecha de forma inundativa al parasitoide Tamarixia radiata y algunas especies de hongos entomopatógenos. Aunque los principales depredadores del vector ocurren de manera natural, pocos estudios abordan su conservación in situ. Esta revisión abona a la idea de que la conservación de enemigos naturales debería ser base del manejo integrado de D. citri y de CLas. Se propone la conservación de hospederos alternos, la inclusión de plantas nectaríferas, conservación de parasitoides in situ, y la autodiseminación de hongos entomopatógenos. Se analizan y discuten estudios sobre conservación de enemigos naturales desarrollados en D. citri y plagas cercanas, su probable impacto en la enfermedad, y perspectivas de implementación en México. Las estrategias propuestas pudieran potenciar, no solo el control biológico de D. citri-CLas, sino también la autorregulación de plagas de cítricos en general

Mostrar Figuras y/o Cuadros
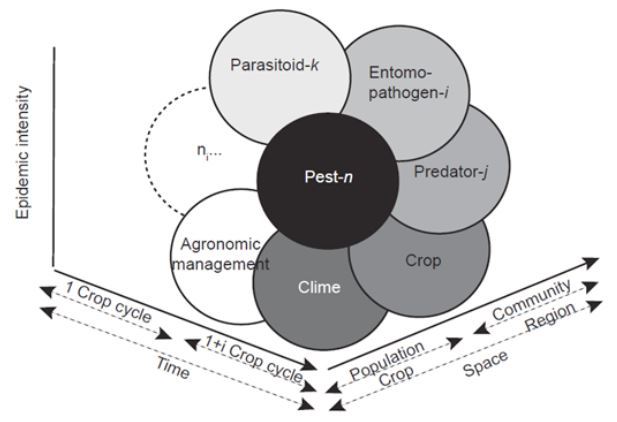
Figura 1. Sistema Epidemiológico definido por la interacción de factores determinantes de un proceso epidémico: especie plaga, entomopatógeno, depredador (predator) y parasitoide, cultivo, manejo agronómico, clima, y algún otro factor específico (ni) y los cuales operan a distintos niveles espacio-temporal (Tomado de Mora-Aguilera <em>et al.,</em> 2017).
Figura 1. Sistema Epidemiológico definido por la interacción de factores determinantes de un proceso epidémico: especie plaga, entomopatógeno, depredador (predator) y parasitoide, cultivo, manejo agronómico, clima, y algún otro factor específico (ni) y los cuales operan a distintos niveles espacio-temporal (Tomado de Mora-Aguilera et al., 2017).
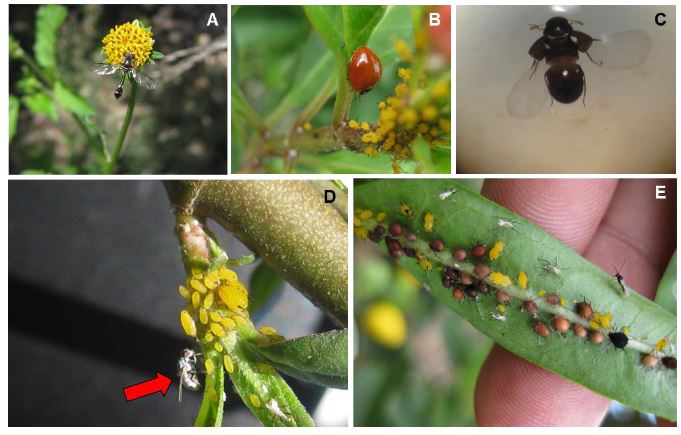
Figura 2. Aphis nerii en Asclepias curassavica y algunos enemigos naturales asociados. A) Pseudodorus clavatus, B) Cycloneda sanguínea, C) Adulto de Oligota, D) Adulto de Chamaemyiidae, E) Momias y adultos de Lyciphlebus testaceipes
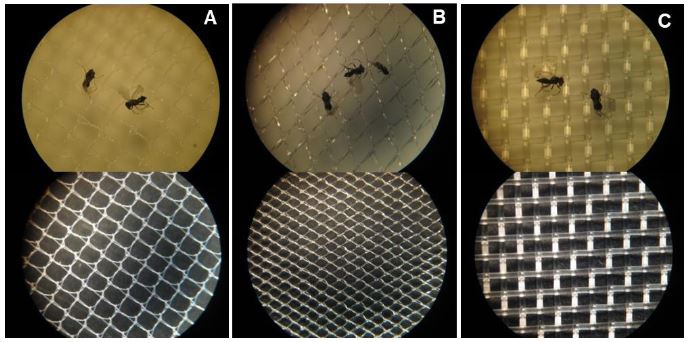
Figura 3. Diferentes tipos de malla evaluadas en la emergencia selectiva de Tamarixia triozae, parasitoide de Bactericera cockerelli como modelo para implementar con D. citri y su parasitoide. A) Mallas de 700 x 700 μm, B) 700 x 900 μm, C) 500 μm
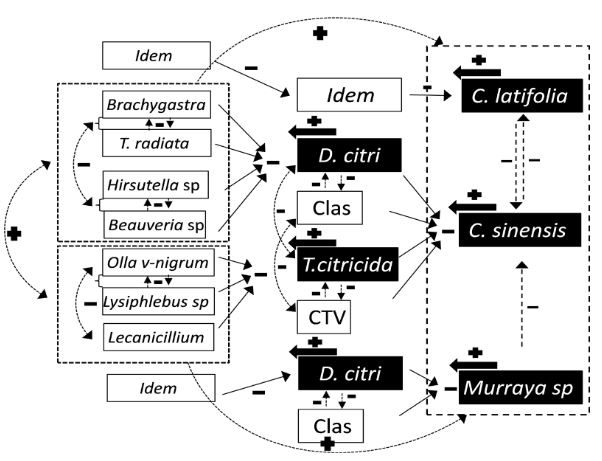
Figura 4. Sistema trófico fitosanitario en dos especies de cítricos (limón persa y naranja dulce) y la limonaria M. paniculata, los que son infestados diferencialmente con dos especies plaga-vector (D. citri y T. citricida) y dos patógenos (Citrus tristeza virus y <em>Candidatus Liberibacter asiaticus</em>). Tomado de Mora et al. (2017).
Figura 4. Sistema trófico fitosanitario en dos especies de cítricos (limón persa y naranja dulce) y la limonaria M. paniculata, los que son infestados diferencialmente con dos especies plaga-vector (D. citri y T. citricida) y dos patógenos (Citrus tristeza virus y Candidatus Liberibacter asiaticus). Tomado de Mora et al. (2017).
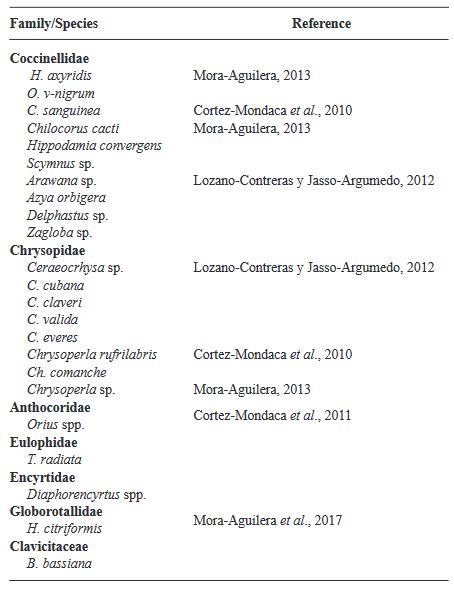
Cuadro 1. Enemigos naturales asociados a D. citri en huertas citrícolas de México
  • Vol. 2024, 42(2)
  • Artículo de Revisión

Patosistema de Iris yellow spot orthotospovirus, hospederos del virus y el vector (Thrips tabaci)

PorNorma Ávila Alistac*, Erika J Zamora Macorra, Héctor Lozoya Saldaña

Recibido: 30/octubre/2023 – Publicado: 10/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2310-8

Resumen Iris yellow spot Orthotospovirus (IYSV) causa graves problemas en el cultivo de cebolla (Allium cepa) y está ampliamente distribuido en las zonas productoras del país. En México se reportó en 2010 como “mancha amarilla” en cebolla y en otros miembros del género Allium. Su principal vector Thrips tabaci, que ocasiona daños directos por alimentación y por ser vector de otros virus como Tomato spotted wilt Orthotospovirus e Impatiens necrotic spot Orthotospovirus. El conocimiento del patosistema de IYSV-Thrips tabaci-Allium cepa-arvenses puede coadyuvar a un manejo integral y concientización del uso de pesticidas. La versatilidad de IYSV de infectar a más de 60 especies de plantas (>20 familias), de las cuales en su mayoría están presentes en México; aunado al amplio rango de hospedantes del vector, vuelve compleja la interacción y conlleva a comprender mejor sobre la diversidad de hospedantes alternos del vector y/o el IYSV. En la actualidad, información sobre arvenses como hospederos de IYSV y el vector es limitado, pero su conocimiento proporcionará mayor comprensión de la enfermedad. Es importante tener un conocimiento integral del virus, hospedante principal, hospedantes alternos y vector en el país, para encausar investigaciones futuras para contrarrestar este problema y minimizar pérdidas causadas por IYSV en el cultivo de cebolla principalmente.

Mostrar Figuras y/o Cuadros
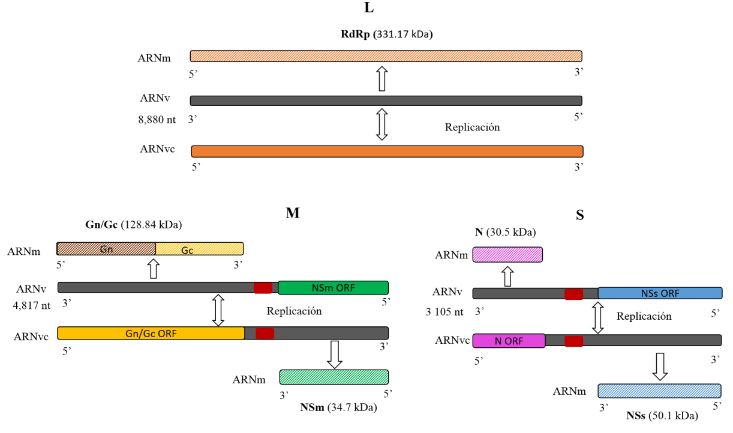
Figura 1. Representación de la organización segmentada del genoma de ARN de <em>Iris yellow spot Orthotospovirus</em> (L, M y S). Modificado de Bag et al. (2015).
Figura 1. Representación de la organización segmentada del genoma de ARN de Iris yellow spot Orthotospovirus (L, M y S). Modificado de Bag et al. (2015).
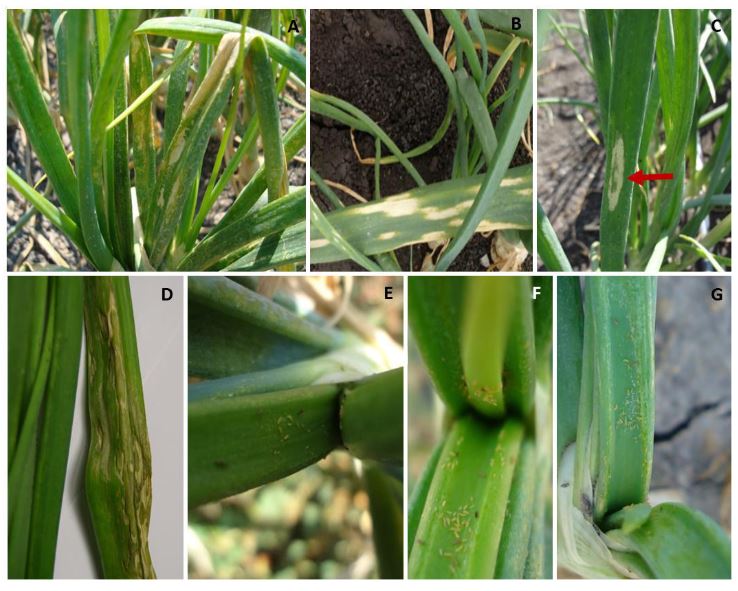
Figura 2. A y B) Síntomas asociados a la infección de <em>Iris yellow spot Orthotospovirus</em> consistentes en lesiones cloróticas de color blanco pajizo en forma elongada; C y D) Lesiones cloróticas de color blanco pajizo con presencia de una isla verde en el centro de la lesión; E-G) Presencia de altas poblaciones de T. tabaci (inmaduros y adultos) en el cultivo de la cebolla.
Figura 2. A y B) Síntomas asociados a la infección de Iris yellow spot Orthotospovirus consistentes en lesiones cloróticas de color blanco pajizo en forma elongada; C y D) Lesiones cloróticas de color blanco pajizo con presencia de una isla verde en el centro de la lesión; E-G) Presencia de altas poblaciones de T. tabaci (inmaduros y adultos) en el cultivo de la cebolla.
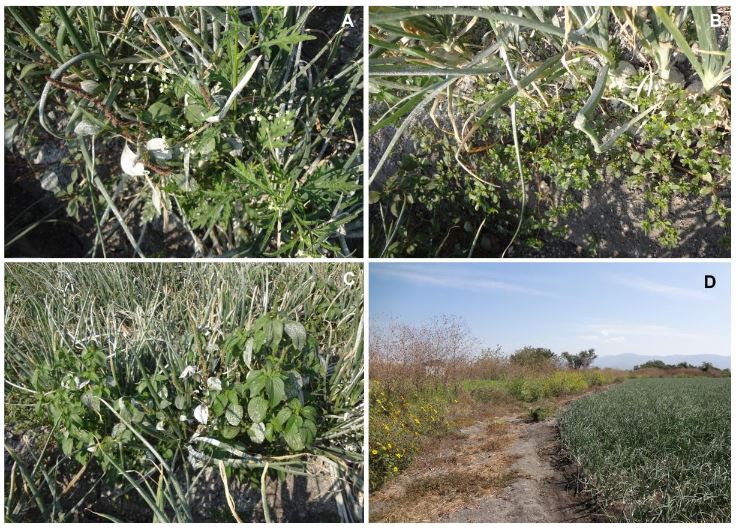
Figura 3. Arvenses interaccionando dentro y fuera del cultivo de cebolla (<em>Allium cepa</em>). A) Escoba amarga (Parthenium hysterophorus); B) Verdolaga (Portulaca oleracea); C) Plantas de acalifa (Acalypha ostryifolia); D) Acahual o falso girasol (Tithonia tubiformis) en el borde del cultivo de cebolla.
Figura 3. Arvenses interaccionando dentro y fuera del cultivo de cebolla (Allium cepa). A) Escoba amarga (Parthenium hysterophorus); B) Verdolaga (Portulaca oleracea); C) Plantas de acalifa (Acalypha ostryifolia); D) Acahual o falso girasol (Tithonia tubiformis) en el borde del cultivo de cebolla.
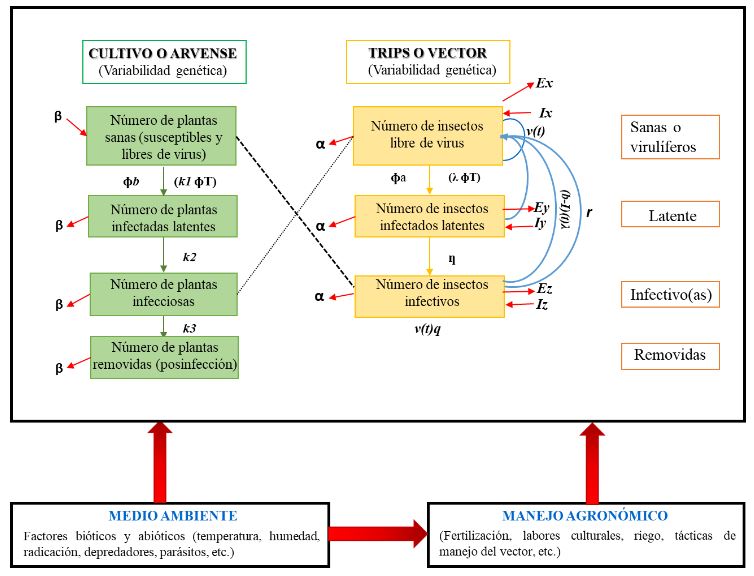
Figura 4. Sistema epidemiológico de un patosistema viral encauzado a <em>Iris yellow spot Orthotospovirus</em> (basado y modificado de Madden <em>et al.,</em> 2000). Acotaciones utilizadas: v(t)= Tasa de fecundidad total de la población del insecto por día dentro del cultivo. Ґ= Tiempo de incubación del virus dentro del vector. q= Probabilidad de que la descendencia del vector sea virulifera. β= Tasa de mortalidad de plantas y recuperación (resiembra). α= Tasa de mortalidad y natalidad del insecto. ɸb= (Plantas visitadas por insectos al día) (Probabilidad de que el insecto virulífero inocule al virus en una planta por una visita). 1/k1= Tiempo en que el vector inocula la planta. 1/k2= Periodo de latencia del virus en la planta. 1/k3= Periodo infeccioso del virus en la planta. ɸT= (Plantas visitadas por insectos al día) (Tiempo en que el insecto prueba la planta en una visita). Ex= Tasa de emigración de insectos libres de virus. Ix= Tasa de inmigración de insectos libres de virus. Ey= Tasa de emigración de insectos latentes. Ez= Tasa de emigración de insectos infectivos. Iy= Tasa de inmigración de insectos latentes. Iz= Tasa de inmigración de insectos infectivos. 1/λ = Tiempo de adquisición del vector. ɸa= (Plantas visitadas por insectos al día) (Probabilidad de que un insecto adquiera al virus con una sola visita a la planta infectada). 1/ƞ= Tiempo en que el virus pasa de latente a infectivo dentro del vector (periodo de latencia). Para mayor información consultar a Madden et al. (2000).
Figura 4. Sistema epidemiológico de un patosistema viral encauzado a Iris yellow spot Orthotospovirus (basado y modificado de Madden et al., 2000). Acotaciones utilizadas: v(t)= Tasa de fecundidad total de la población del insecto por día dentro del cultivo. Ґ= Tiempo de incubación del virus dentro del vector. q= Probabilidad de que la descendencia del vector sea virulifera. β= Tasa de mortalidad de plantas y recuperación (resiembra). α= Tasa de mortalidad y natalidad del insecto. ɸb= (Plantas visitadas por insectos al día) (Probabilidad de que el insecto virulífero inocule al virus en una planta por una visita). 1/k1= Tiempo en que el vector inocula la planta. 1/k2= Periodo de latencia del virus en la planta. 1/k3= Periodo infeccioso del virus en la planta. ɸT= (Plantas visitadas por insectos al día) (Tiempo en que el insecto prueba la planta en una visita). Ex= Tasa de emigración de insectos libres de virus. Ix= Tasa de inmigración de insectos libres de virus. Ey= Tasa de emigración de insectos latentes. Ez= Tasa de emigración de insectos infectivos. Iy= Tasa de inmigración de insectos latentes. Iz= Tasa de inmigración de insectos infectivos. 1/λ = Tiempo de adquisición del vector. ɸa= (Plantas visitadas por insectos al día) (Probabilidad de que un insecto adquiera al virus con una sola visita a la planta infectada). 1/ƞ= Tiempo en que el virus pasa de latente a infectivo dentro del vector (periodo de latencia). Para mayor información consultar a Madden et al. (2000).
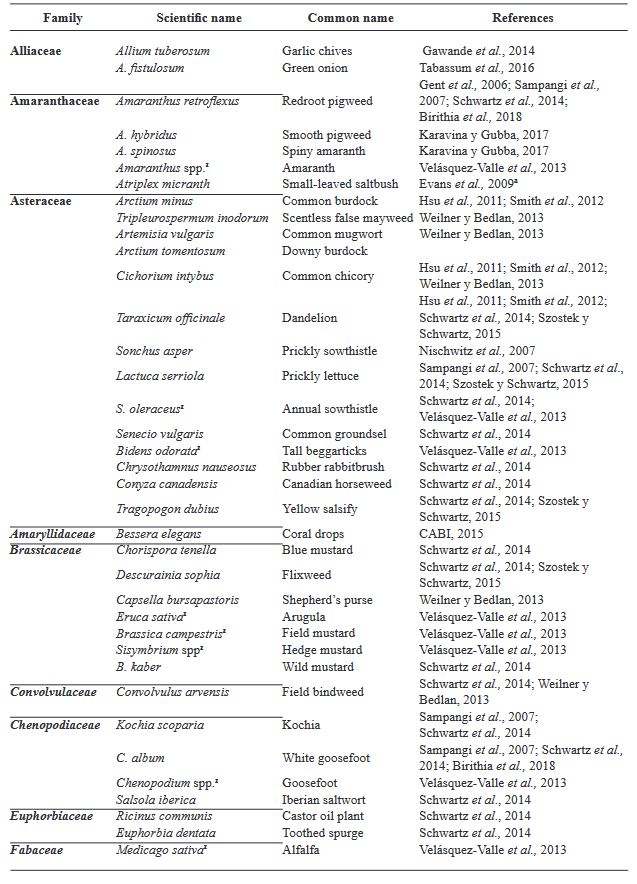
Cuadro 1. Rango de hospedantes de <em>Iris yellow spot Orthotospovirus</em>
Cuadro 1. Rango de hospedantes de Iris yellow spot Orthotospovirus
  • Vol. 2024, 42(2)
  • Artículo Científico

Diversidad filogenómica y minería genómica de especies tipo del género Bacillus: Buscando genes asociados al control biológico

PorJosé Jesús Márquez Diego, Andrea Denisse Martinez Vidales, Errikka Patricia Cervantes Enríquez, Abraham Ruiz Castrejón, José Humberto Romero Silva, Maria Edith Ortega Urquieta, Fannie Isela Parra Cota, Sergio de los Santos Villalobos*

Recibido: 18/julio/2023 – Publicado: 06/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2402-9

Resumen Antecedentes/Objetivo. Bacillus es un género bacteriano cosmopolita con una gran diversidad genómica. Así, al explorar su genoma, es posible comprender más sobre los rasgos fisiológicos y bioquímicos involucrados en su control biológico contra fitopatógenos. El objetivo de este trabajo fue correlacionar las relaciones filogenómicas de las especies tipo del género Bacillus con la presencia de clústeres de genes asociados al control biológico de fitopatógenos, mediante la minería del genoma.

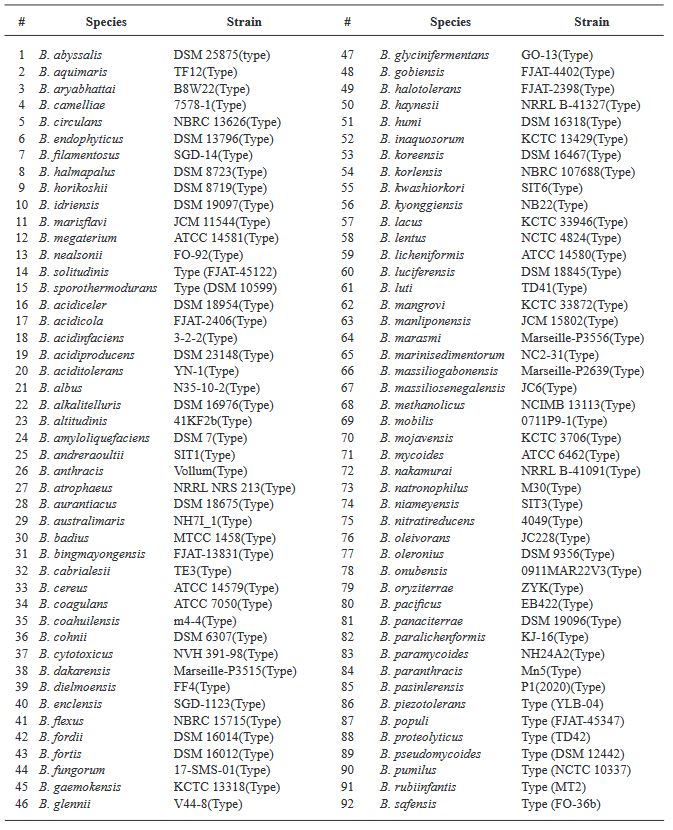
Materiales y Métodos. Con base en la literatura se han reportado 336 especies pertenecientes al género Bacillus; sin embargo, después de la reclasificación, se reconocieron un total de 123 especies tipo y se encontraron sus genomas en la plataforma EzBioCloud (http://www.ezbiocloud.net/). Para este trabajo se utilizaron los índices relacionados al genoma completo (OGRIs), que indican qué tan similares son dos secuencias de un genoma. Luego, se utilizó la plataforma Realphy para crear el árbol filogenómico 1.13 (referencia del constructor de filogenia basado en acciones). Finalmente, la predicción de clústeres de genes biosintéticos (BGC) asociados con el control biológico de fitopatógenos se realizó utilizando antiSMASH v6.0 (https://antismash. secondarymetabolites.org/).

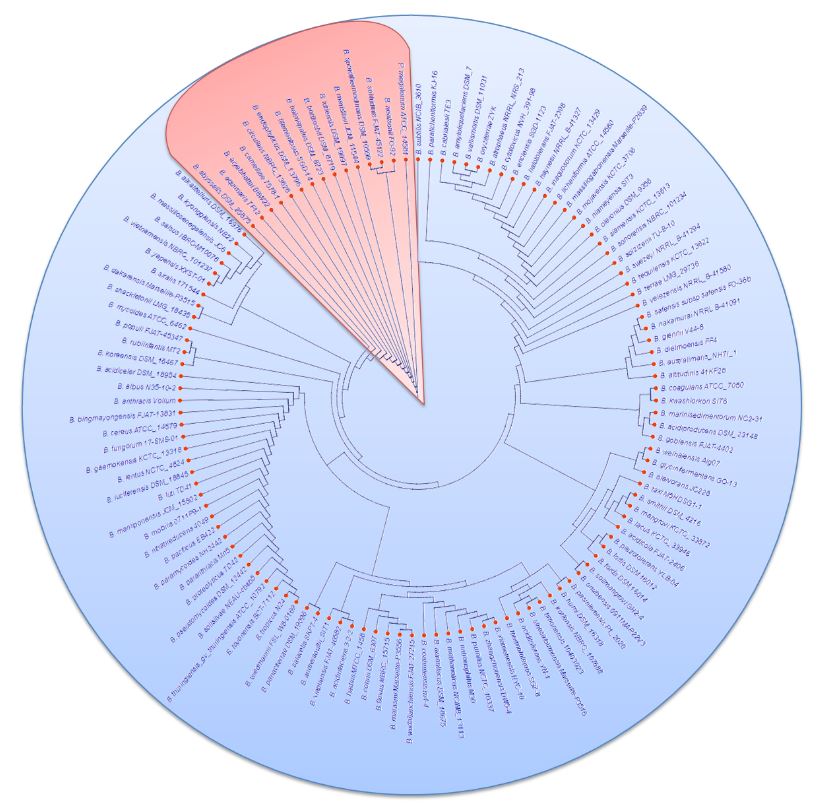
Resultados. La presente estrategia permitió correlacionar y predecir la capacidad de control biológico de las especies de Bacillus en estudio con base en su afiliación taxonómica ya que a una distancia evolutiva más corta a Bacillus subtilis indicó una alta capacidad potencial para producir compuestos de control biológico. Sin embargo, no se descarta la posibilidad de que adquieran la capacidad de producir nuevos compuestos de biocontrol durante su separación evolutiva.

Conclusión. Este trabajo valida la correlación entre la filiación taxonómica de las especies de Bacillus estudiadas y su capacidad de control biológico, lo que es útil en la etapa de bioprospección para diseñar bioplaguicidas prometedores.

Mostrar Figuras y/o Cuadros
Figura 1. Árbol filogenómico con las 123 especies de <em>Bacillus</em> tipo estudiadas, donde se identificaron dos grupos principales: i) B. megaterium (color rosa) y ii) B. subtilis (color azul)
Figura 1. Árbol filogenómico con las 123 especies de Bacillus tipo estudiadas, donde se identificaron dos grupos principales: i) B. megaterium (color rosa) y ii) B. subtilis (color azul)
Cuadro 1. Especies de cepa tipo pertenecientes al género <em>Bacillus</em> descargadas de la plataforma EzBioCloud, que fueron utilizadas en este estudio
Cuadro 1. Especies de cepa tipo pertenecientes al género Bacillus descargadas de la plataforma EzBioCloud, que fueron utilizadas en este estudio
  • Vol. 2024, 42(2)
  • Artículo Científico

Cuantificación digital aérea y terrestre de la severidad causada por cenicilla polvosa en frijol Ayocote (Phaseolus coccineus)

PorAlfonso Muñoz Alcalá, Gerardo Acevedo Sánchez, Diana Gutiérrez Esquivel, Oscar Bibiano Nava, Ivonne García González, Norma Ávila Alistac, María José Armenta Cárdenas, María del Carmen Zúñiga Romano, Juan José Coria Contreras, Serafín Cruz Contreras, Gustavo Mora Aguilera*

Recibido: 18/julio/2023 – Publicado: 06/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2312-1

Resumen Antecedentes/Objetivo. La investigación epidemiológica en Phaseolus coccineus es insipiente. El objetivo fue desarrollar y validar metodologías digitales para cuantificación de severidad asociada a la cenicilla polvosa en frijol ayocote.

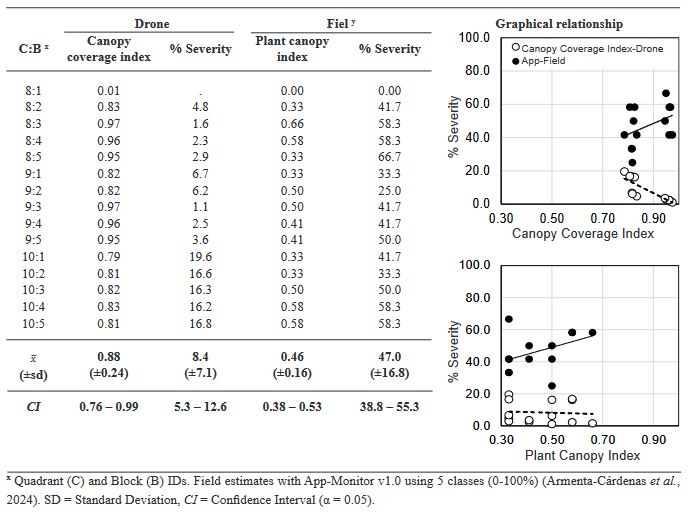
Materiales y Métodos. Se seleccionó una parcela de frijol ayocote con 65.3 % de incidencia y 22.7 % de severidad promedio foliar de cenicilla polvosa. A partir de 250 foliolos colectados en campo con distintos grados de severidad, se diseñaron y validaron ocho escalas logarítmicas-diagramáticas (ELD) de 7 y 8-clases en entorno controlado (VEC) y campo (VCa). En Rstudio®, se determinó exactitud (β), precisión (R2), reproducibilidad (r), y concordancia con el índice kappa de Cohen (κw) y coeficiente de concordancia de Lin (LCC). Adicionalmente, se realizó un Hierarchical Cluster Analysis (HCA) por escala y entorno para agrupación por similitud de evaluación. Imágenes RGB-dron se procesaron en ArcMap® v10.3. En un bloque de 15-cuadrantes se realizó un análisis de ‘segmentación de imagen’ mediante clasificación supervisada y máxima probabilidad para estimar severidad de cenicilla y un indicador de cobertura de vigor (ICV).

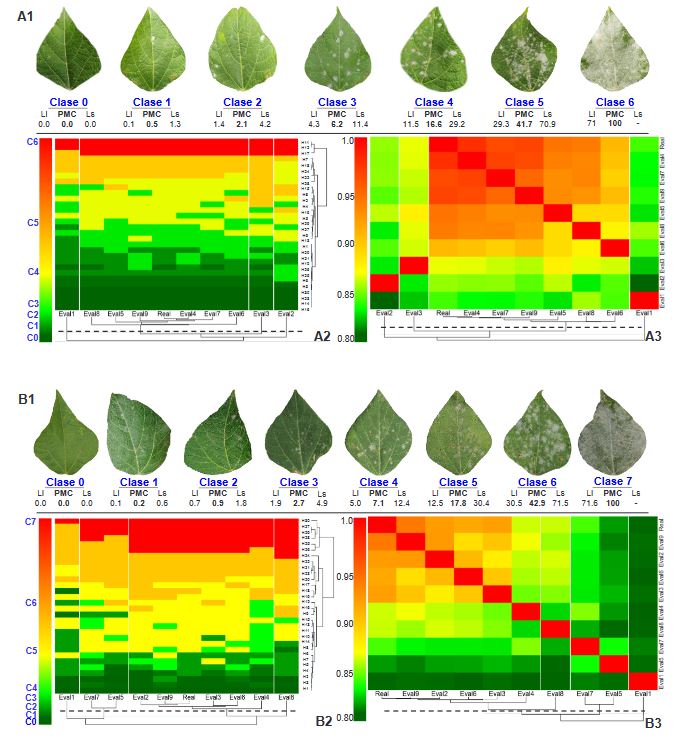
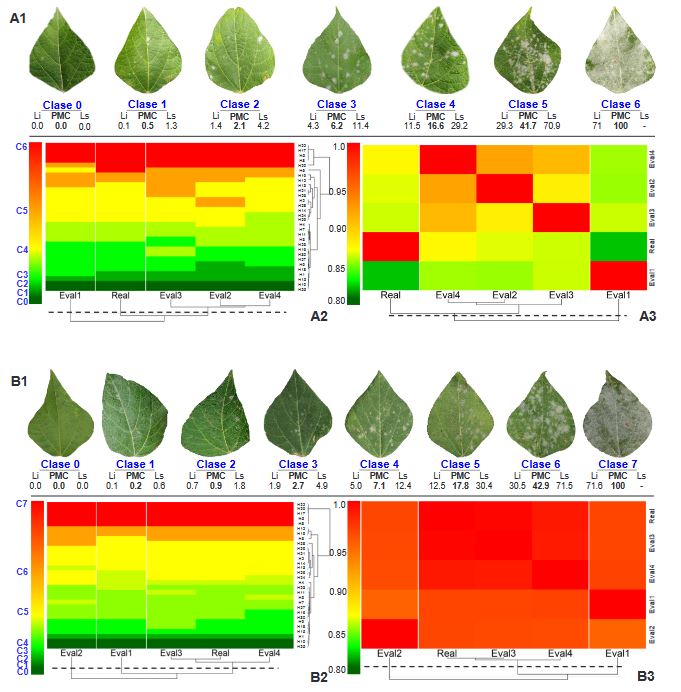
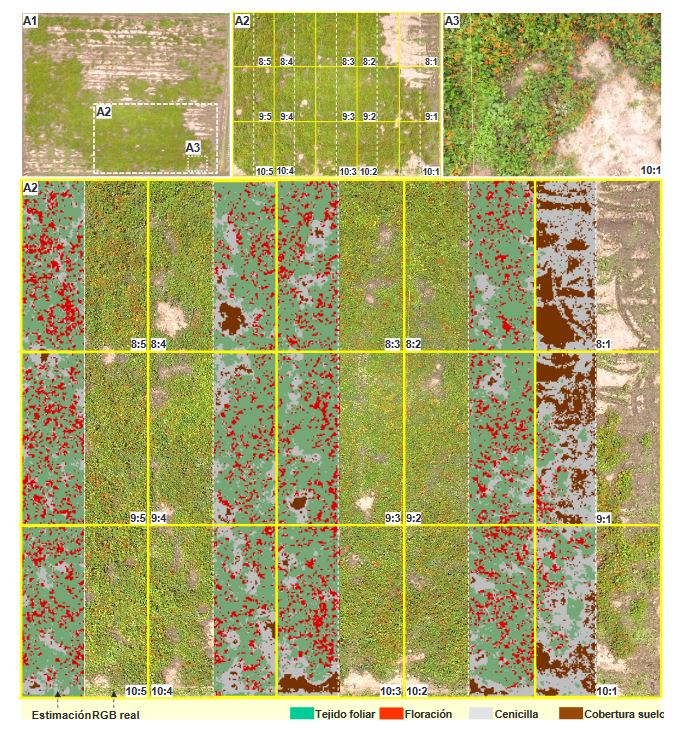
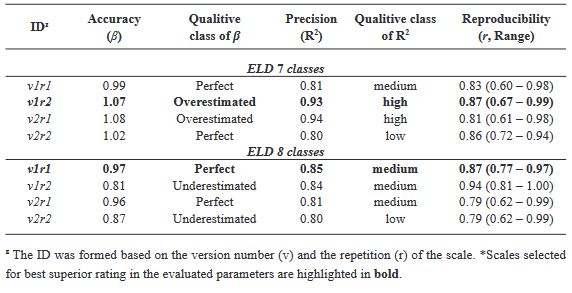
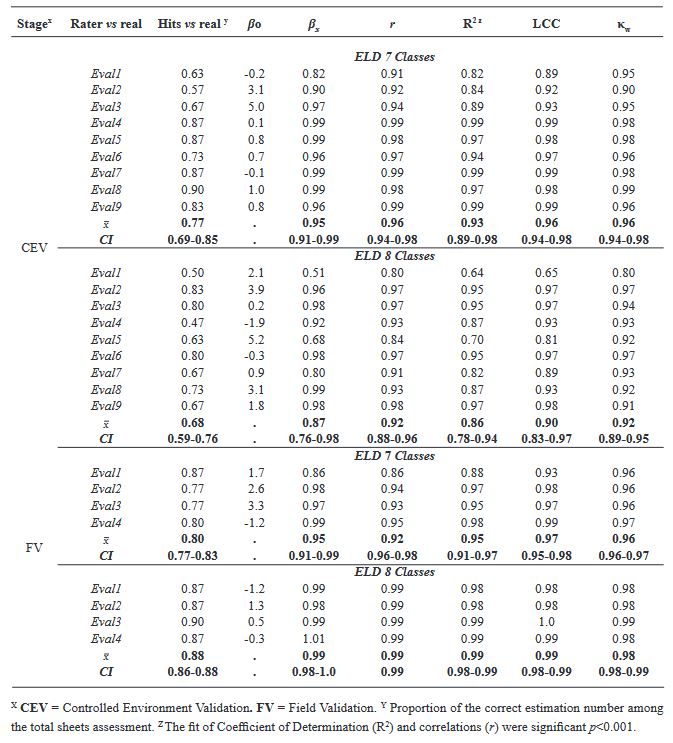
Resultados. En VEC-1, escalas v1r2 (ELD-7c; β=1.07, R2=0.93, r=0.87) y v1r1 (ELD-8c; β=0.97, R2=0.85, r=0.87) resultaron mejor evaluadas. En VEC-2, comparando clústeres conformados en el HCA, ELD-7c fue la mejor evaluada con exactitud perfecta (β>0.96), precisión muy alta (R2>0.94), reproducibilidad muy alta (r=0.97–0.99) y concordancia muy buena (κw>0.96; LCC>0.97); y en ELD-8c disminuyó reproducibilidad y concordancia. En VCa, ELD-7c mantuvo métricas óptimas, pero ELD-8c alcanzó parámetros ideales para una ELD preventiva en etapas iniciales de la cenicilla polvosa (β>0.98, R2>0.98, r=0.99, κw=0.99–0.999, LCC=0.98–0.999). El análisis de imagen RGB-drone estimó severidad = 8.4 % (CI = 5.3 – 12.6 %) e ICV = 0.88 (CI = 0.76 – 0.99), contrastante con la evaluación de campo 47 % (CI = 38.8 – 55.3 %) y 0.46 (CI = 0.76 – 0.99), respectivamente, principalmente con ICV>0.94 debido a menor exposición de hojas sintomáticas. Sugiere aplicabilidad para estimaciones de vigor y con restricciones para severidad en función de expresión patogénica.

Conclusión. Se propone una metodología para desarrollo de ELD integrada por: toma, procesamiento y cuantificación de imágenes; validación controlada y campo. Estadísticos de validación incluyeron precisión (R2); exactitud (β); reproducibilidad (coeficiente de Pearson y Hierarchical Cluster Analysis); y concordancia (Co-eficiente de Lin e Índice de Kappa), propuestos por primera vez de manera integral. Se proponen imágenes RGB-drone para estimar un índice de cobertura de vigor y severidad integral.

Mostrar Figuras y/o Cuadros
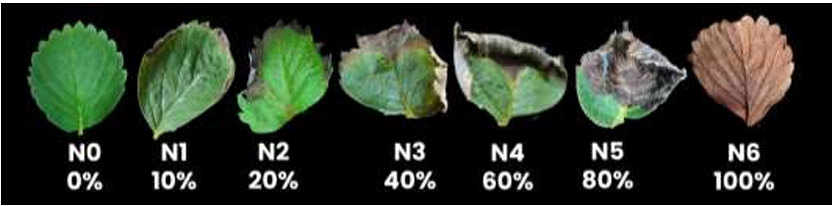
Figura 1. Versiones finales de escalas logarítmicas-diagramáticas de severidad foliar para cenicilla en frijol Ayocote (<em>Phaseolus coccineus</em>), seleccionadas para validación en campo. Escalas logarítmicas-diagramáticas de A) 7 clases; B) 8 clases.
Figura 1. Versiones finales de escalas logarítmicas-diagramáticas de severidad foliar para cenicilla en frijol Ayocote (Phaseolus coccineus), seleccionadas para validación en campo. Escalas logarítmicas-diagramáticas de A) 7 clases; B) 8 clases.
Figura 2. A1 y B1. Escala logarítmica-diagramática de 7 y 8 clases para evaluación de severidad de cenicilla en foliolos de frijol Ayocote (<em>P. coccineus</em>), durante el proceso de Validación en Entorno Controlado (VEC) de 30 hojas por nueve evaluadores. A2 y B2. Heatmap del coeficiente de correlación de Pearson (r) entre nueve evaluadores por escala de severidad. Los valores de r = 0.8 – 1 indican la reproducibilidad de cada escala entre evaluadores. A3 y B3. Heatmap de clase de severidad en 30 hojas evaluadas por escala y evaluador. El color representa el valor de la clase asignada por el evaluador para cada hoja. Por evaluador y hojas se traza un Hierarchical cluster analysis agrupado por el método ‘complete’ y distancia Euclidiana
Figura 2. A1 y B1. Escala logarítmica-diagramática de 7 y 8 clases para evaluación de severidad de cenicilla en foliolos de frijol Ayocote (P. coccineus), durante el proceso de Validación en Entorno Controlado (VEC) de 30 hojas por nueve evaluadores. A2 y B2. Heatmap del coeficiente de correlación de Pearson (r) entre nueve evaluadores por escala de severidad. Los valores de r = 0.8 – 1 indican la reproducibilidad de cada escala entre evaluadores. A3 y B3. Heatmap de clase de severidad en 30 hojas evaluadas por escala y evaluador. El color representa el valor de la clase asignada por el evaluador para cada hoja. Por evaluador y hojas se traza un Hierarchical cluster analysis agrupado por el método ‘complete’ y distancia Euclidiana
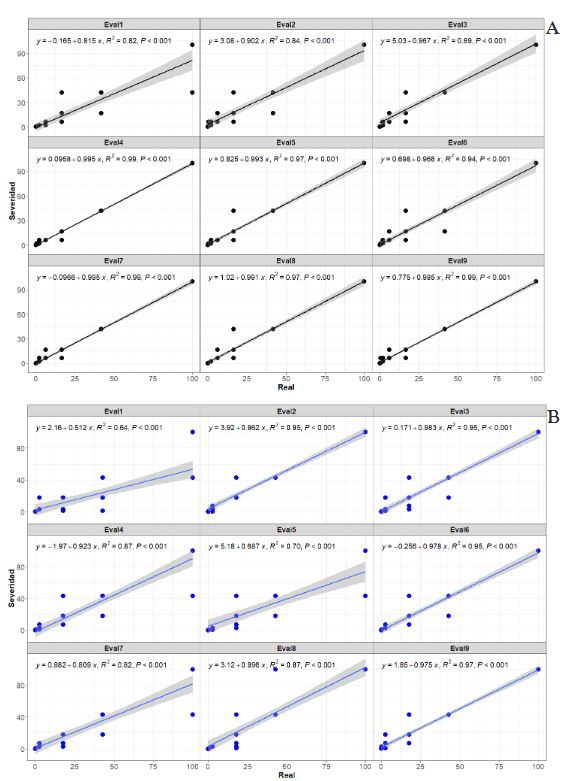
Figura 3. Gráficos de correlación entre severidad (y) evaluada mediante escala y valores reales (x) de nueve evaluadores durante la Validación en Entorno Controlado (VEC) con 30 hojas de <em>Phaseolus coccineus</em>. Se ajusta la ecuación de regresión lineal (y = βo + βx + e) para determinar parámetros β, R2 y p-value mediante la función stat_poly_eq. Escalas logarítmicas-diagramáticas de A. 7 clases. B. 8 clases.
Figura 3. Gráficos de correlación entre severidad (y) evaluada mediante escala y valores reales (x) de nueve evaluadores durante la Validación en Entorno Controlado (VEC) con 30 hojas de Phaseolus coccineus. Se ajusta la ecuación de regresión lineal (y = βo + βx + e) para determinar parámetros β, R2 y p-value mediante la función stat_poly_eq. Escalas logarítmicas-diagramáticas de A. 7 clases. B. 8 clases.
Figura 4. A1 y B1. Escala logarítmica-diagramática de 7 y 8 clases para evaluación de severidad de cenicilla en foliolos de frijol Ayocote (<em>P. coccineus</em>), durante el proceso de validación de 30 hojas en campo por cuatro evaluadores seleccionados. A2 y B2. Heatmap del coeficiente de correlación de Pearson (r) entre nueve evaluadores por escala de severidad. Los valores de r = 0.8 – 1 indican el nivel de reproducibilidad de cada escala entre evaluadores. A3 y B3. Heatmap de clase de severidad en 30 hojas evaluadas por escala y evaluador. El color representa el valor de la clase asignada por el evaluador para cada hoja. Por evaluador y hojas se traza un Hierarchical cluster analysis agrupado por el método ‘complete’ y distancia Euclidiana.
Figura 4. A1 y B1. Escala logarítmica-diagramática de 7 y 8 clases para evaluación de severidad de cenicilla en foliolos de frijol Ayocote (P. coccineus), durante el proceso de validación de 30 hojas en campo por cuatro evaluadores seleccionados. A2 y B2. Heatmap del coeficiente de correlación de Pearson (r) entre nueve evaluadores por escala de severidad. Los valores de r = 0.8 – 1 indican el nivel de reproducibilidad de cada escala entre evaluadores. A3 y B3. Heatmap de clase de severidad en 30 hojas evaluadas por escala y evaluador. El color representa el valor de la clase asignada por el evaluador para cada hoja. Por evaluador y hojas se traza un Hierarchical cluster analysis agrupado por el método ‘complete’ y distancia Euclidiana.
Figura 5. Gráficos de correlación entre severidad (y) evaluada mediante escala y valores reales (x) de nueve evaluadores durante la Validación en campo (VCa) con 30 hojas de <em>Phaseolus coccineus</em>. Se ajusta la ecuación de regresión lineal (y = βo + βx + e) para determinar parámetros β, R2 y p-value mediante la función stat_poly_eq. Escalas logarítmicas-diagramáticas de A. 7 clases. B. 8 clases
Figura 5. Gráficos de correlación entre severidad (y) evaluada mediante escala y valores reales (x) de nueve evaluadores durante la Validación en campo (VCa) con 30 hojas de Phaseolus coccineus. Se ajusta la ecuación de regresión lineal (y = βo + βx + e) para determinar parámetros β, R2 y p-value mediante la función stat_poly_eq. Escalas logarítmicas-diagramáticas de A. 7 clases. B. 8 clases
Figura 6. Estimación de indicadores de vigor y daño mediante imagen RGB (13 mpx) de Phantom 3 procesada mediante algoritmo supervisado de segmentación en ArcMap® v10.3. A1. Imagen del área total del experimento (40 x 52 m). Toma a 50 m altura. A2. Bloque de 15 cuadrantes seleccionados por uniformidad en continuidad de hospedero, vigor y máxima inductividad. En líneas continuas amarillas muestran división de cuadrantes. Líneas blancas discontinuas representan bloques seleccionados para representar estimación vía algoritmo versus imagen real. Toma a 27 m. A3. Imagen a 5 m de sector seleccionado para diseño de ‘firma RGB’ con categorías del cultivo (tejido foliar, floración, cenicilla y cobertura suelo).
Cuadro 1. Promedio de exactitud (β), precisión (R2) y reproducibilidad (r) de ocho escalas logarítmicas-diagramáticas de severidad para evaluar cenicilla en <em>Phaseolus coccineus</em>.
Cuadro 1. Promedio de exactitud (β), precisión (R2) y reproducibilidad (r) de ocho escalas logarítmicas-diagramáticas de severidad para evaluar cenicilla en Phaseolus coccineus.
Cuadro 2. Comparación paramétrica de nueve evaluadores con respecto al valor real, para determinar exactitud (βx), precisión (R2) y nivel de concordancia (LCC, κw) por clase de severidad evaluada durante el proceso de validación en entorno controlado (VEC) y en campo (VCa).
Cuadro 3. Comparativo de índice de cobertura vigor (ICV), vigor de planta (ICP) y porcentaje de severidad de cenicilla, estimados con imagen RGB de dron y evaluaciones de campo
  • Vol. 2024, 42(2)
  • Nota Fitopatológica

Variabilidad genética de dos aislados mexicanos de Tomato brown rugose fruit virus y expresión de síntomas en jitomate y chile

PorNorma Ávila Alistac, Gustavo Mora Aguilera, Héctor Lozoya Saldaña*, Erika J Zamora Macorra, Camilo Hernández Juárez

Recibido: 18/julio/2023 – Publicado: 06/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2311-2

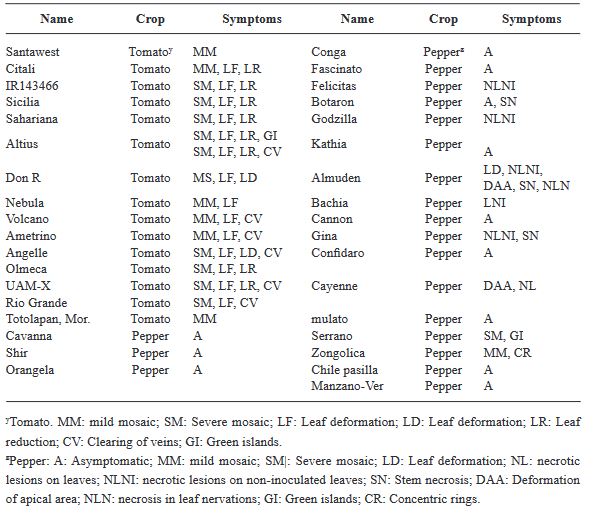
Resumen Antecedentes/Objetivo. El objetivo fue analizar la variabilidad de dos aislados mexicanos de ToBRFV posterior a un proceso de inoculación y multiplicación en diferentes variedades comerciales y criollos mexicanos de jitomate (Solanum lycopersicum) (15 materiales) y chile (Capsicum annuum) (20 materiales), y evaluar la expresión de síntomas en condiciones de invernadero.

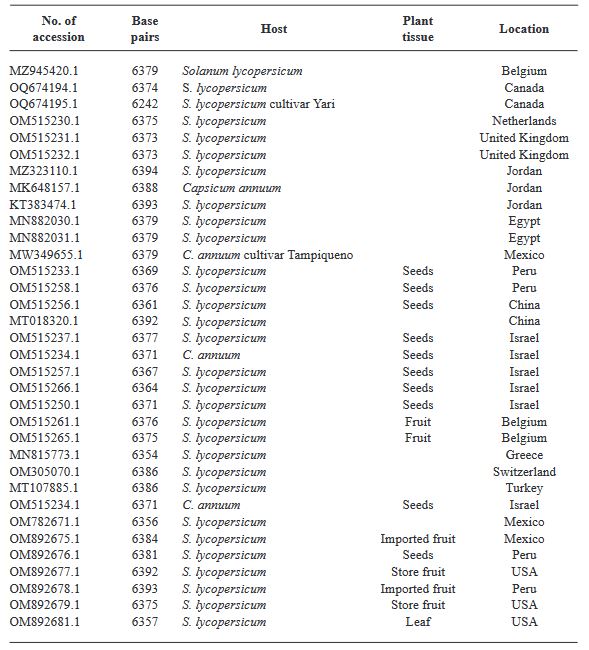
Materiales y Métodos. En invernadero, se analizó la variabilidad postinfección de dos aislados: EM-JI2021 (Edo. de México) y C-JI2021 (Colima) en 15 genotipos de jitomate y 20 de chile. Cada aislado se inoculó mecánicamente en cinco plantas por genotipo con un total de 150 plantas (56 días de edad) de jitomate y 200 de chile. Se emplearon tres plantas por genotipo como testigos. Sesenta y un días después de inoculación se colectó una hoja por planta para RT-PCR. Se registró incidencia y expresión de síntomas. La extracción de ARN fue por CTAB 2 %. Se utilizó oligos ToBRFV-F/ToBRFV-R que amplifican 475pb del gen RpRd (SENASICA-CNRF). Se secuenciaron 24 productos RT-PCR, se limpiaron y alinearon con registros del Genbank NCBI mediante MEGAv11.0.13. Con criterio epidemiológico, se seleccionaron 34 secuencias del GenBank para análisis de variabilidad.

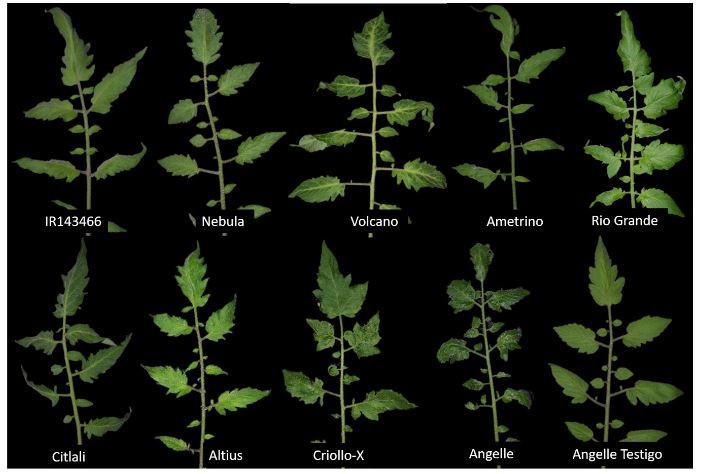
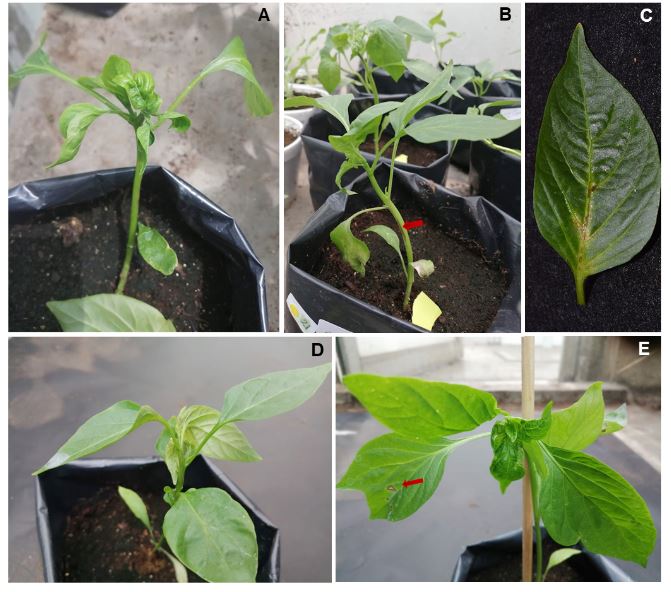
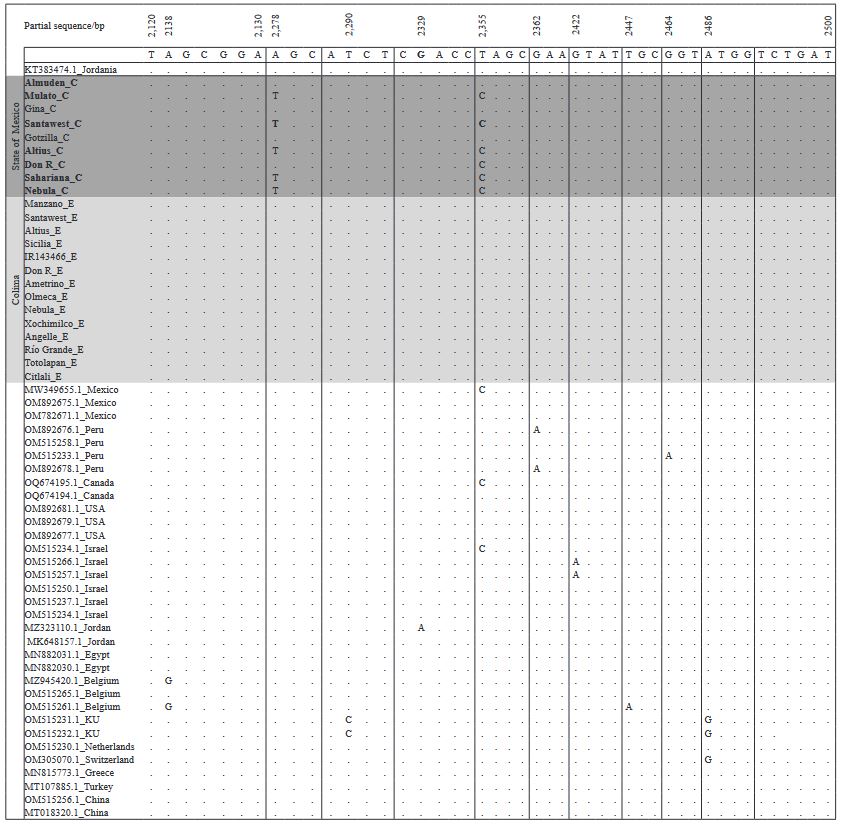
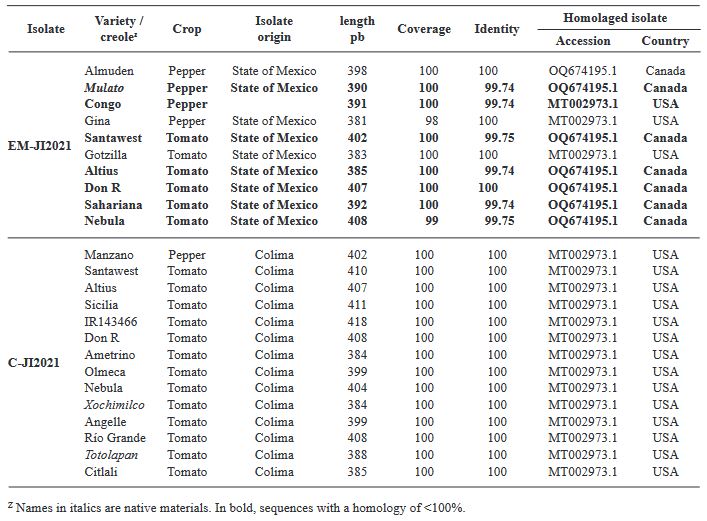
Resultados. Diez días después de la inoculación, los genotipos de jitomate exhibieron mosaico severo, leve, reducción del área foliar. En chile se observaron síntomas diferenciados por genotipo, incluyendo reacción de hipersensibilidad, deformación foliar, necrosis en tallo, mosaico, amarillamiento, lesiones necróticas y condición asintomática. Entre la posición 2,124 al 2,500 pb se tuvo 99.74 % de homología con el primer reporte de ToBRFV en Jordania (KT383474.1). Se encontró homología >99.74 % con aislados de USA (MT002973.1) y Canadá (OQ674195.1). C-JI2021 no exhibió variabilidad, mientras que EM-JI2021 generó tres haplotipos: En Mulato (chile) y Don R (jitomate) se detectó cambio de un nucleótido (c.2,355T>C), mientras que en Santawest, Altius, Sahariana y Nebula (jitomate) se detectaron dos sustituciones (c.2,278A>T; c.2,355T>C).

Conclusión. La intensidad patogénica de ToBRFV varió de asintomática a severa según combinación de hospedero, genotipo y haplotipo. En periodos cortos de infección se detectaron tres haplotipos lo que sugiere capacidad mutagénica del virus en función del hospedero

Mostrar Figuras y/o Cuadros
Figura 1. Síntomas en materiales comerciales y criollas de jitomate inoculados con Tomato brown rugose fruit virus. Síntomas de mosaico leve (IR143466, Nebula, Ametrino, Rio Grande, Citlali, Altius); mosaico severo, deformación y aclaramiento de nervaduras principales de la hoja (Volcano, Criollo-X y Angelle); planta sana (Angelle testigo)
Figura 2. Síntomas en chile (Capsicum annumm) inoculados con Tomato brown rugose fruit virus. A-C) Síntomas de deformación apical, necrosis en tallo y nervaduras en hojas de Almuden; D) Síntomas de deformación apical, ligera necrosis en nervaduras en Cayenne; E) Síntomas de deformación apical, mosaico, lesiones necróticas en hojas no inoculadas en Felicitas
Figura 3. Alineamiento de la secuencia parcial del gen de la replicasa del Tomato brown rugose fruit virus de 24 secuencias de aislados obtenidos de 35 genotipos inculados con los aislados EM-JI2021 y C-JI2021, y de 34 secuencias de diferentes países productores de jitomate y chile. Alineamiento realizado en Geneious
Cuadro 1. Secuencias completas de Tomato brown rugose fruit virus obtenidas del banco de genes (NCBI) utilizadas para el alineamiento y comparados con secuencias de ToBRFV de la investigación
Cuadro 2. Síntomas de Tomato brown rugose fruit virus en materiales comerciales y criollos de jitomate y chile expresados bajo condiciones de invernadero
Cuadro 3. Porcentaje de cobertura e identidad de dos aislados de ToBRFV inoculados en un total de 35 genotipos de jitomate y chile en condiciones de invernadero.
  • Vol. 2024, 42(2)
  • Nota Fitopatológica

Expresión del complejo RPM1-RIN4-RPS2 en dos especies de cítricos con respuesta contrastante al Huanglongbing

PorEric Ángel Mendoza Pérez, Ricardo Santillán Mendoza, Humberto Estrella Maldonado, Cristian Matilde Hernández, Felipe Roberto Flores de la Rosa*, Jacel Adame García

Recibido: 18/julio/2023 – Publicado: 06/marzo/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2307-6

Resumen Antecedentes/Objetivo. El limón persa (Citrus latifolia) muestra un nivel muy alto de tolerancia al Huanglongbing (HLB). Un estudio reciente sugiere que genes del complejo RPM1-RIN4-RPS2 podrían ser parte de los responsables de la tolerancia al HLB en el limón persa, a diferencia de otras especies muy susceptibles como la naranja (C. sinensis). El objetivo del presente trabajo fue comparar la expresión de este complejo génico entre la naranja, altamente susceptible al HLB, y el limón persa, una especie tolerante.

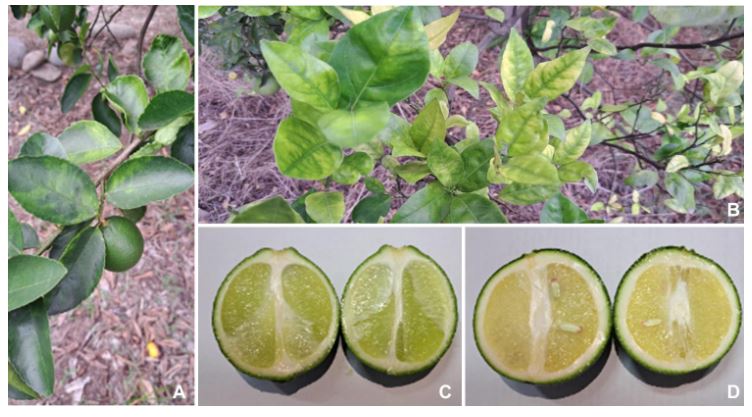
Materiales y Métodos. Se obtuvieron las secuencias de los tres genes del complejo para naranja y limón persa de bases de datos de trabajos previamente publicados, se realizaron alineamientos y diseño de iniciadores para expresión génica mediante diversas herramientas bioinformáticas. Posteriormente, se obtuvieron muestras de tejido de naranja y limón persa con síntomas de HLB y se corroboró la infección. Se realizó la comparación de la expresión de los genes RPM1-RIN4-RPS2 mediante RT-PCR punto final.

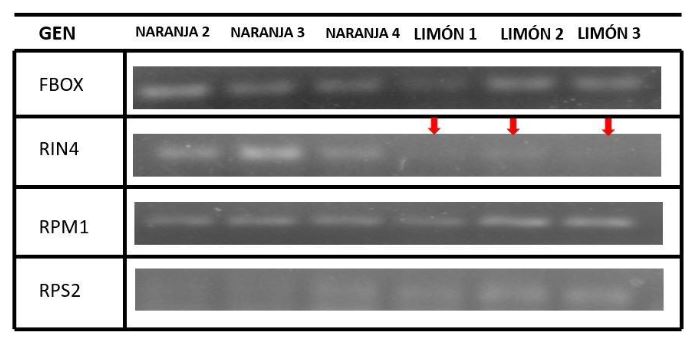
Resultados. Se determinó la presencia de los tres genes del complejo en naranja y limón persa, además, se determinó que están altamente conservados entre ambas especies. Además, se observó que no existe una expresión diferencial para el gen RPM1 en tejido sintomático de HLB, sin embargo, sí hay diferencia en la expresión de los genes RPS2 y RIN4.

Conclusión. Los resultados sugieren que la respuesta contrastante al HLB podría estar asociada a la actividad de la interacción de los genes RIN4 y RPS2, por lo cual, esta podría ser de interés para el mejoramiento genético de los cítricos en miras del control del HLB.

Mostrar Figuras y/o Cuadros
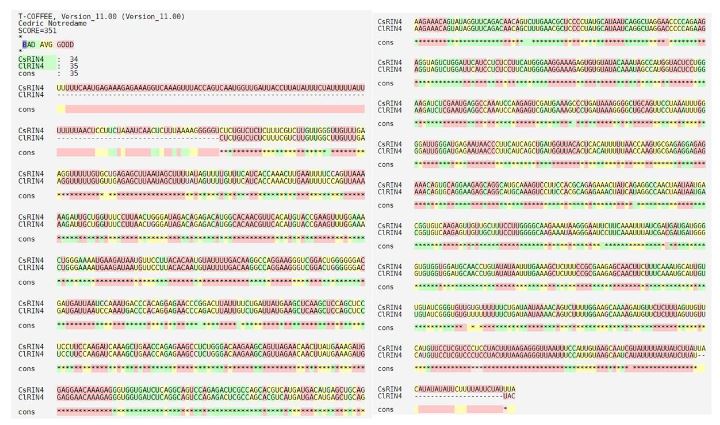
Figura 1. Alineamiento de las secuencias de los genes CsRIN4 y ClRIN4
Figura 2. Síntomas de HLB presentes en hojas de limón persa (A) naranja Valencia (B) y frutos de limón persa (C) y naranja Valencia (D).
Figura 3. Expresión del complejo RPM1-RIN4-RPS2 mediante RT-PCR en naranja Valencia, especie altamente susceptible al HLB, y limón Persa especie con un alto nivel de tolerancia al HLB.

Página 12 de 16