
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
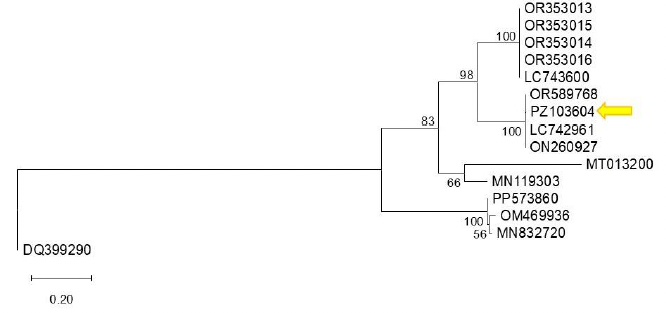
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2025, 43(3)
  • Artículo Científico

Identificación de marcadores moleculares asociados con genes de resistencia a Puccinia triticina

PorYérica Renata Valdez Rodríguez, Julio Huerta Espino, Luis Antonio Mariscal Amaro*, Héctor Eduardo Villaseñor Mir, Elizabeth García León, Eliel Martínez Cruz

Recibido: 01/mayo/2024 – Publicado: 27/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-4

Resumen Antecedentes/Objetivo. El trigo (Triticum aestivum) es afectado por Puccinia triticina, causante de la roya de la hoja con pérdidas de rendimiento mayores al 80 % en variedades susceptibles. La estrategia más viable para el manejo de la enfermedad es el uso de variedades con resistencia parcial la cual se expresa con baja intensidad de severidad. Para esto, se necesitan progenitores que tengan genes que confieran este tipo de resistencia, por lo que se deben analizar materiales de trigo con marcadores moleculares asociados a dichos genes.

Materiales y Métodos. Se determinó la presencia de estos marcadores en líneas avanzadas de trigo y variedades de reciente liberación. Se evaluaron 34 genotipos en estado de plántula y planta adulta contra Puccinia triticina evaluándose el nivel de severidad de la enfermedad. Para determinar la presencia de alelos de resistencia de cinco genes se utilizaron diferentes marcadores moleculares.

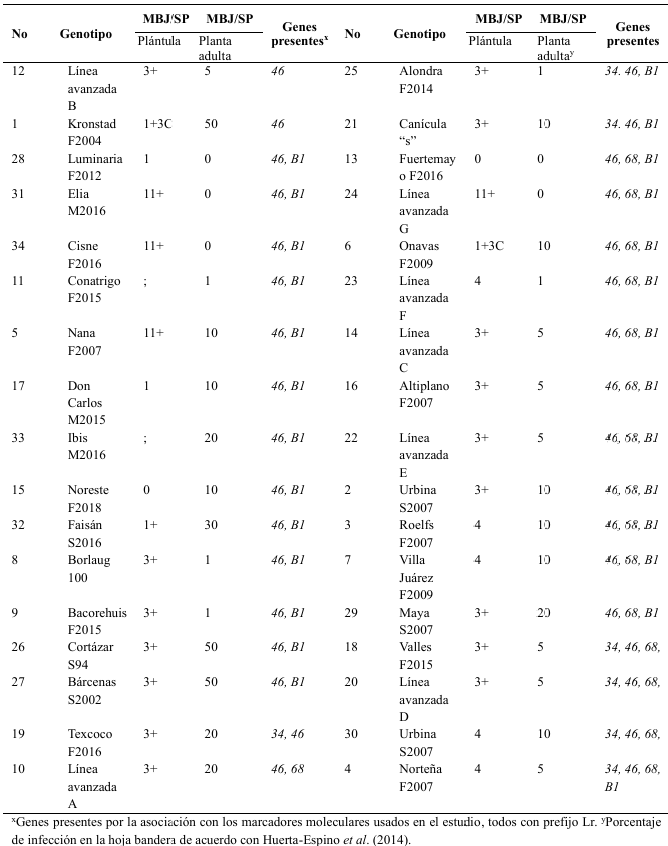
Resultados. De los genes analizados con los marcadores se identificó a Lr34, Lr46, Lr68 y LrB1. Los genes se encontraron solos y en combinaciones observándose menores niveles de la enfermedad en los genotipos que poseían un mayor número de estos genes.

Conclusión. El uso de marcadores moleculares Lr34, Lr46, Lr68 y LrB1 facilitará la selección de genotipos de trigo que se pueden incluir en futuros planes de cruzamiento.

Mostrar Figuras y/o Cuadros
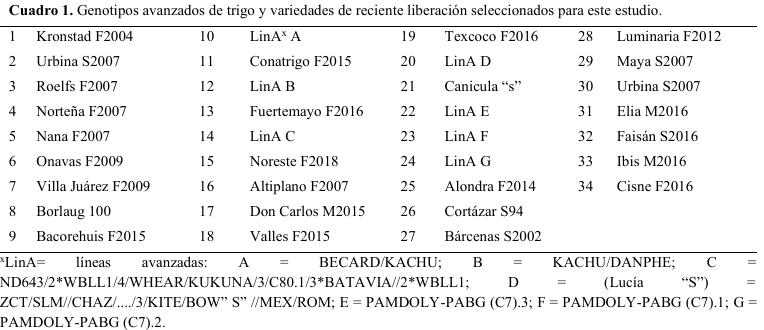
Cuadro 1. Genotipos avanzados de trigo y variedades de reciente liberación seleccionados para este estudio.
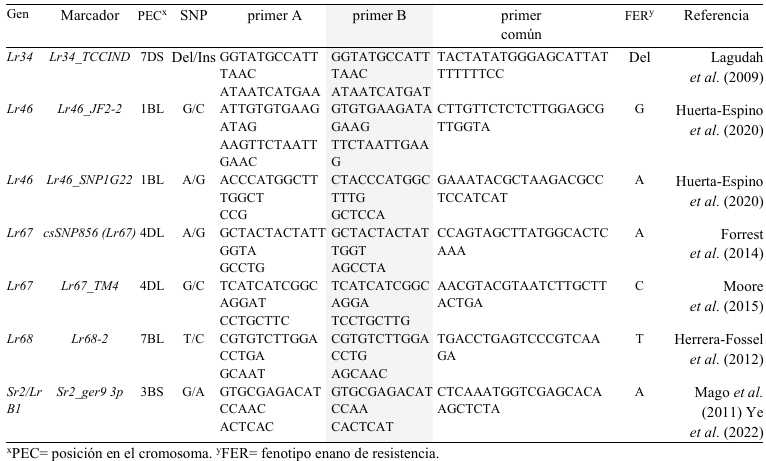
Cuadro 2. Marcadores moleculares utilizados para la detección de alelos de resistencia de los genes Lr34, Lr46, Lr67, Lr68 y Sr2/LrB1.
Cuadro 3. Respuesta de los 34 (No) genotipos de trigo evaluados a la raza MBJ/SP P. <em>triticina</em> en estado de plántula, planta adulta y genes de resistencia detectados.
Cuadro 3. Respuesta de los 34 (No) genotipos de trigo evaluados a la raza MBJ/SP P. triticina en estado de plántula, planta adulta y genes de resistencia detectados.
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Validación de una escala diagramática logarítmica de severidad para cuantificar daño de Botrytis fabae en haba

PorErnesto Alonso López Reyes, Álvaro Castaneda Vildózola, Jesús Ricardo Sánchez Pale*, Juyma Mayvé Fragoso Benhumea, Rómulo García Velasco, Andrés Quezada Salinas

Recibido: 12/noviembre/2024 – Publicado: 28/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2411-1

Resumen Antecedentes/Objetivo. La producción de haba (Vicia faba) en el Valle de Toluca se afecta severamente por Botrytis fabae. Por ello es necesario disponer de una escala diagramática de severidad diseñada y validada para cuantificar sus daños.

Materiales y Métodos. En tres plantaciones comerciales de haba se colectaron 150 foliolos a partir de una preselección visual con base en variabilidad sintomatológica. Posteriormente, 138 láminas foliares se digitalizaron con el software APS PRESS ©Assess 2.0 para cuantificar el valor de daño real por foliolo. Se desarrolló una escala diagramática logarítmica de seis clases. Se realizó una primera evaluación visual, sin apoyo de la escala diagramática, en foliolos con diferentes grados de daño por 20 evaluadores sin experiencia en evaluación de daño. Una segunda evaluación se realizó con 10 evaluadores con apoyo de la escala. Los valores obtenidos se analizaron mediante una regresión lineal simple para estimar precisión y exactitud.

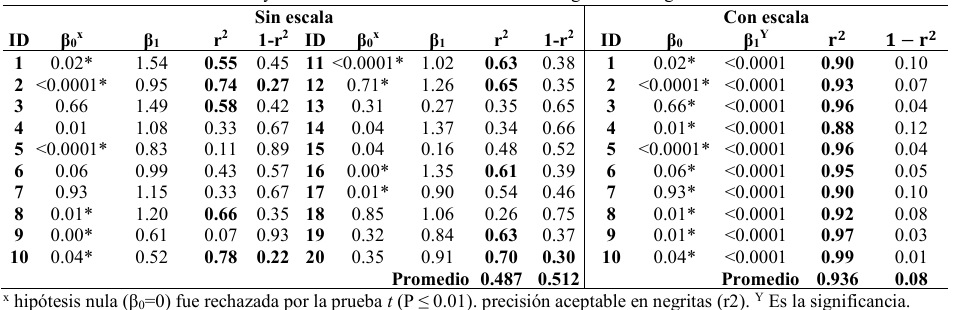
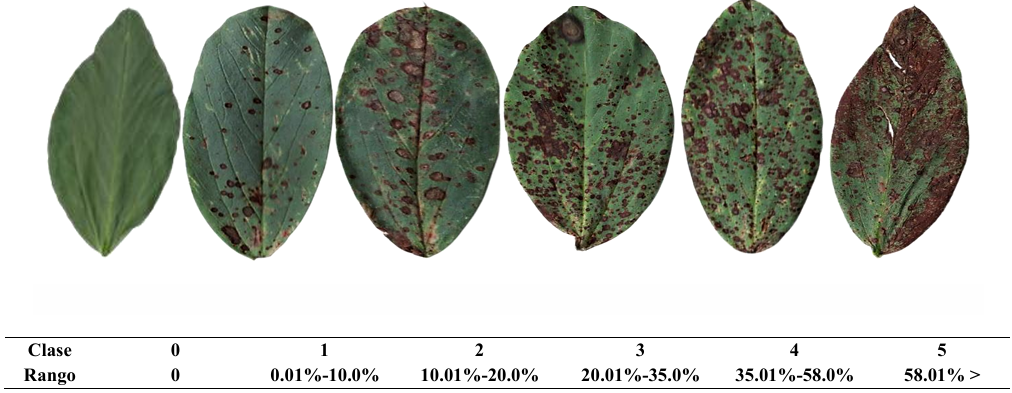
Resultados. Se desarrolló una escala diagramática conformada por seis clases: 0 (0), 1 (0.1-10.0), 2 (10.01-20.0), 3 (20.01-35.0), 4 (35.01-58.0), 5 (> 58.01-100). Los resultados de regresión lineal simple por evaluador mostraron, para la evaluación sin escala, valores de r2 (exactitud) entre 0.07-0.78; β1 (precisión)=0.0001-0.85; y entre evaluadores, β1(reproducibilidad)=0.16-1.54. En contraste, en la evaluación con escala, arrojo valores de r2 = 0.88-0.99, β1= 0.0001-0.93 (por evaluador), y β1=<0.0001(entre evaluadores). Lo que permitió validar positivamente la escala respecto a su exactitud, precisión y reproducibilidad.

Conclusión. Se generó una escala diagramática logarítmica confiable de seis clases para evaluar la severidad de la mancha de chocolate, enfermedad causada por Botrytis fabae.

Mostrar Figuras y/o Cuadros
Cuadro 1. Valores del Intercepto (β0), pendiente de la línea (β1), coeficiente de determinación (r²) y margen de error (1-r²) de la ecuación de regresión lineal simple en estimaciones visuales de la severidad causada por <em>Botrytis fabae</em>, con 20 evaluadores sin escala y 10 evaluadores con uso de la escala diagramática logarítmica.
Cuadro 1. Valores del Intercepto (β0), pendiente de la línea (β1), coeficiente de determinación (r²) y margen de error (1-r²) de la ecuación de regresión lineal simple en estimaciones visuales de la severidad causada por Botrytis fabae, con 20 evaluadores sin escala y 10 evaluadores con uso de la escala diagramática logarítmica.
Figura 1. Escala logarítmica diagramática de severidad para evaluar la mancha de chocolate causada por <em>Botrytis fabae</em> en haba.
Figura 1. Escala logarítmica diagramática de severidad para evaluar la mancha de chocolate causada por Botrytis fabae en haba.
Figura 2. Distribución de residuales (severidad estimada-severidad real) de las evaluaciones de la mancha de chocolate (<em>Botrytis fabae</em>) en foliolos de haba. <strong>A</strong>) Evaluación sin escala. <strong>B</strong>) Evaluación con escala.
Figura 2. Distribución de residuales (severidad estimada-severidad real) de las evaluaciones de la mancha de chocolate (Botrytis fabae) en foliolos de haba. A) Evaluación sin escala. B) Evaluación con escala.
  • Vol. 2025, 43(3)
  • Reporte Fitopatológico

Primer registro de Rhizoctonia solani AG-7 causante de pudrición de la raíz del frijol común en México

PorKaren Rabago Zavala, Blanca Elvira López Valenzuela, Fernando Alberto Valenzuela Escoboza*, Glenda Judith Lizárraga Sánchez

Recibido: 18/septiembre/2024 – Publicado: 26/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2409-1

Resumen Antecedentes/Objetivo. En noviembre de 2020, en dos plantaciones de frijol (Phaseolus vulgaris), en el norte Sinaloa, se observaron síntomas de pudrición de raíz y secadera de planta, con incidencia hasta de 35 % por plantación. El presente estudio se estableció con el objetivo de identificar, a través de la secuenciación del ITS y RPB2, a los patógenos asociados a la pudrición de raíz en frijol.

Materiales y Métodos. Se seleccionaron plantas con síntomas en cultivos de frijol en Ahome, Sinaloa, México. Se tomaron muestras de los avances de lesión de raíces y se aislaron hongos con características morfológicas típicas de Rhizoctonia spp. Los postulados de Koch se realizaron en macetas, el inóculo se colocó en basel tallo de plántulas de 15 dias de edad. Una vez demostrada la patogenicidad se identificaron molecularmente los aislados FAVF397 y FAVF 398.

Resultados. Los hongos aislados presentaron micelio septado, hialino a marrón, multinuclear, con ramificaciones en ángulo recto y constricción de la célula basal, no produjeron esporas, y formaron esclerocios. Los aislados FAVF397 y FAVF398 se identificaron molecularmente como Rhizoctonia solani AG-7 y son causantes de la pudrición de raiz del frijol común.

Conclusión. El grupo anastomosico AG7 se reporta por primera vez en frijol en Sinaloa. Estos hallazgos representan un aporte científico en beneficio de productores de este cultivo al permitir el diseño de estrategias de manejo pertinentes y efectivos.

Mostrar Figuras y/o Cuadros
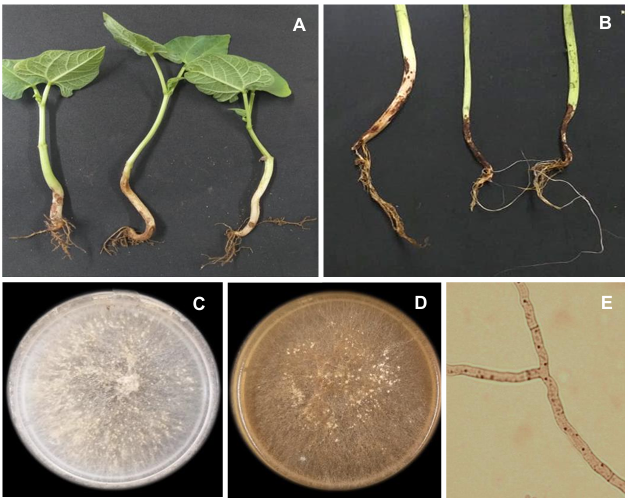
Figura 1. <em>Rhizoctonia solani</em> AG-7 causante de pudrición de la raíz del frijol común. <strong>A</strong>. Síntomas en tallos y raíces infectados naturalmente. <strong>B</strong>. Síntomas en plantas inoculadas artificialmente, 30 días después de la inoculación. <strong>C</strong>. Colonia en PDA después de 7 días a 25 °C en oscuridad. <strong>D</strong>. Colonia en PDA después de 20 días. <strong>E</strong>. Hifas teñidas con Safranina-O que muestran células multinucleadas y ramificación en angulo recto y constreñida ligeramente en su base.
Figura 1. Rhizoctonia solani AG-7 causante de pudrición de la raíz del frijol común. A. Síntomas en tallos y raíces infectados naturalmente. B. Síntomas en plantas inoculadas artificialmente, 30 días después de la inoculación. C. Colonia en PDA después de 7 días a 25 °C en oscuridad. D. Colonia en PDA después de 20 días. E. Hifas teñidas con Safranina-O que muestran células multinucleadas y ramificación en angulo recto y constreñida ligeramente en su base.
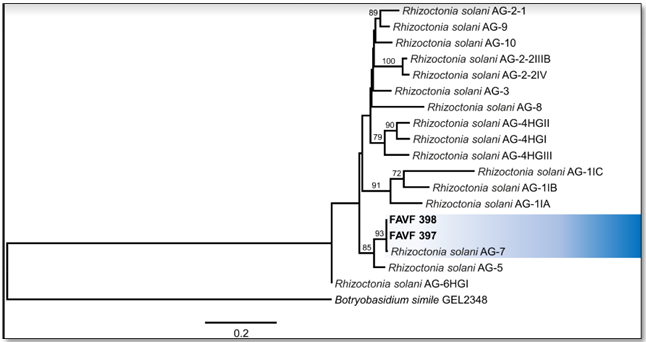
Figura 2. Filogenia por MV de las secuencias concatenadas de los genes ITS y RPB2 de dos aislados de <em>Rhizoctonia</em> spp. obtenidos de plantas de frijol con síntomas de secadera y pudrición de raíz. Bootstrap de 1000 réplicas; grupo externo: <em>Botryobasidium simile</em>. AG=Grupo anastomósico.
Figura 2. Filogenia por MV de las secuencias concatenadas de los genes ITS y RPB2 de dos aislados de Rhizoctonia spp. obtenidos de plantas de frijol con síntomas de secadera y pudrición de raíz. Bootstrap de 1000 réplicas; grupo externo: Botryobasidium simile. AG=Grupo anastomósico.
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Diversidad genética de Fusarium oxysporum asociado a la
marchitez por Fusarium en banano

PorGilberto Manzo Sánchez*, Carlos Luis Leopardi Verde, Marco Tulio Buenrostro Nava, Mario Orozco Santos, Blondy Canto Canché

Recibido: 12/mayo/2024 – Publicado: 26/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-7

Resumen Antecedentes/Objetivo. El objetivo de la presente investigación fue analizar aislamientos de Fusarium oxysporum (Fo) de diferentes regiones productoras de banano de México, empleando marcadores SSR.

Materiales y Métodos. Se recolectaron pseudotallos (Musa spp.) de plantas de banano y plátano (Musa spp.) de las variedades ‘Pisang Awak’ (ABB), ‘Manzano’ (AAB), y ‘Pera’ (ABB) que mostraron marchitez, en parcelas comerciales de cinco regiones productoras de México: en los estados de Colima, Michoacán, Jalisco, Nayarit y Yucatán. Seis loci de SSR fueron analizados para determinar la estructura poblacional sobre 96 aislamientos de Fusarium oxysporum. El número y frecuencia de haplotipos fue calculado en POPGENE. Con esta información, la similaridad genética de las poblaciones fue estimada usando el índice de disimilaridad de Morisita empleando el paquete R. Con los datos de haplotipos, se realizó un análisis de varianza molecular para evaluar la diferenciación genética entre regiones (FCT), entre poblaciones en cada región (FSC), y entre todas las poblaciones incluidas en el análisis (FST). Adicionalmente, para ilustrar las relaciones entre haplotipos, y su distribución y frecuencia entre las poblaciones muestreadas fue generado una red de expansión mínima.

Resultados. Después de siete días en cultivo PDA, todos los aislamientos mostraron micelio blanco algodonoso, el cuales fue planos o aéreos, y presentaron coloración en la superficie superior de violeta claro a violeta oscuro. Sin embargo, en la superficie inferior, las colonias presentaron coloraciones desde naranja hasta rojo oscuro. Se observaron monofiálides cortas, unicelulares o bicelulares, con microconidios ovalados. Los macroconidios fueron falciformes y con tres o cuatro septos. Estas características se ajustan a los criterios taxonómicos de F. oxysporum. Todos los loci analizados fueron polimórficos en los 96 aislamientos de Fo. Se detectaron 16 haplotipos, de los cuales el más frecuente y común fue el H16; los demás fueron poco comunes y podrían estar ampliamente dispersos o restringidos a una o dos poblaciones. Además, no se encontró diferencias genéticas entre las tres poblaciones analizadas, así como tampoco se determinó una estructura genética ni diferenciación a ningún nivel de comparación. Estos hallazgos se relacionan como un complejo de los aislamientos de Fo, no necesariamente relacionados con las razas Foc reportadas en banano.

Conclusión. Los análisis no detectaron diferencias genéticas significativas entre las poblaciones estudiadas de Fo, ni se encontró estructura ni diferenciación genética a ningún nivel. Por lo tanto, nuestros datos sugieren que las poblaciones analizadas constituyen una única metapoblación, a pesar de la presencia de haplotipos poco frecuentes o únicos.

Mostrar Figuras y/o Cuadros
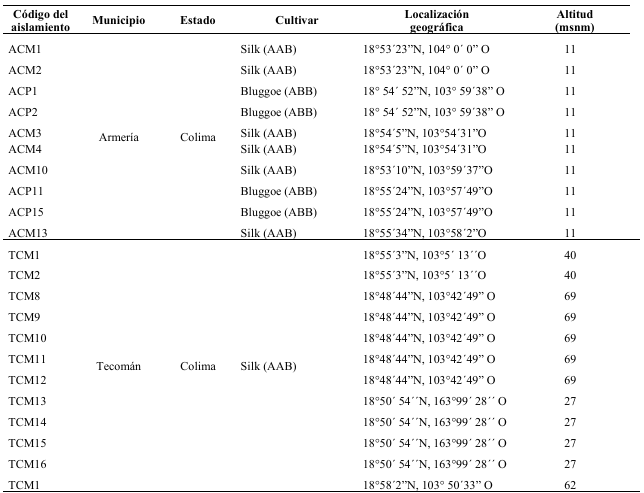
Cuadro 1. Sitios de recolección de muestras para el aislamiento de <em>F. oxysporum</em> en plantaciones comerciales de banano en cinco estados mexicanos.
Cuadro 1. Sitios de recolección de muestras para el aislamiento de F. oxysporum en plantaciones comerciales de banano en cinco estados mexicanos.
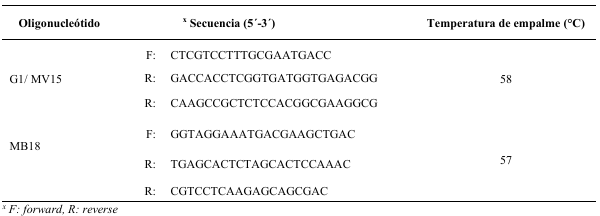
Cuadro 2. Información de los oligonucleótidos de repetición de secuencia simple (SSR) usados para analizar la diversidad genética de aislamientos de <em>Fusarium oxysporum</em> (modificado de Bogale <em>et al</em>., 2005).
Cuadro 2. Información de los oligonucleótidos de repetición de secuencia simple (SSR) usados para analizar la diversidad genética de aislamientos de Fusarium oxysporum (modificado de Bogale et al., 2005).
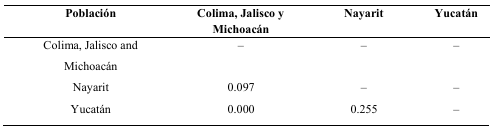
Cuadro 3. Disimilitud entre las poblaciones muestreadas de <em>Fusarium oxysporum</em>.
Cuadro 3. Disimilitud entre las poblaciones muestreadas de Fusarium oxysporum.
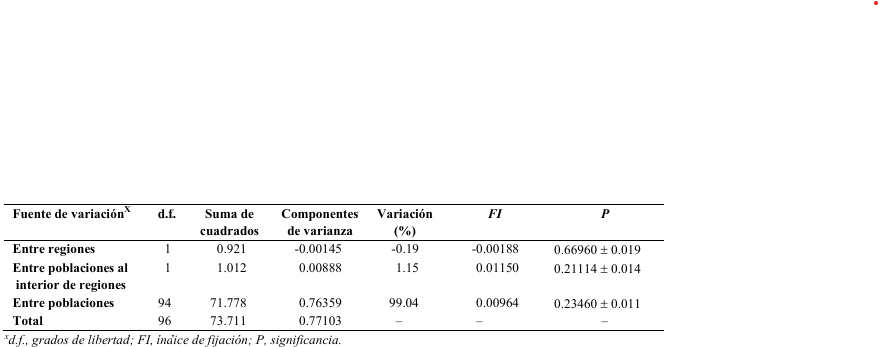
Cuadro 4. Análisis molecular de varianza (AMDEVA) con base en haplotipos asociados a 96 aislamientos de <em>Fusarium oxysporum</em> de Colima, Jalisco, Michoacán, Nayarit y Yucatán, agrupados en dos regiones (este y oeste de México).
Cuadro 4. Análisis molecular de varianza (AMDEVA) con base en haplotipos asociados a 96 aislamientos de Fusarium oxysporum de Colima, Jalisco, Michoacán, Nayarit y Yucatán, agrupados en dos regiones (este y oeste de México).
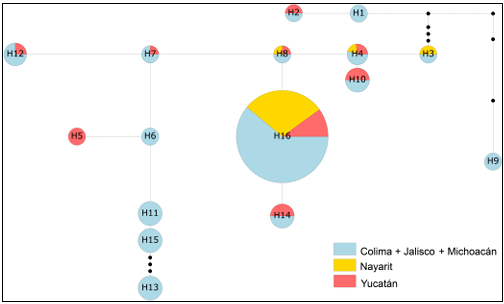
Figura 1. Una red de expansión mínima de 16 haplotipos encontrados en las poblaciones estudiadas de <em>Fusarium oxysporum</em>. Los pequeños puntos negros a lo largo de las ramas representan haplotipos ausentes. El H dentro de los círculos corresponde al identificador del haplotipo, el color indica el tipo de población y el tamaño del círculo representa la frecuencia del haplotipo.
Figura 1. Una red de expansión mínima de 16 haplotipos encontrados en las poblaciones estudiadas de Fusarium oxysporum. Los pequeños puntos negros a lo largo de las ramas representan haplotipos ausentes. El H dentro de los círculos corresponde al identificador del haplotipo, el color indica el tipo de población y el tamaño del círculo representa la frecuencia del haplotipo.
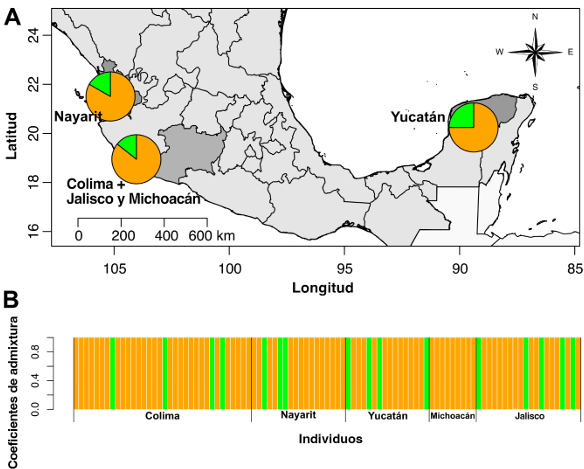
Figura 2. Análisis de la estructura genética de aislamientos de <em>Fusarium oxysporum</em> de diferentes localidades con base en la factorización matricial dispersa no negativa (sNMF). (A) Estructura poblacional para K = 2, representada en el mapa utilizando los valores promedio del coeficiente de ascendencia para cada población estimada. (B) Probabilidad de asignación grupal de cada individuo muestreado.
Figura 2. Análisis de la estructura genética de aislamientos de Fusarium oxysporum de diferentes localidades con base en la factorización matricial dispersa no negativa (sNMF). (A) Estructura poblacional para K = 2, representada en el mapa utilizando los valores promedio del coeficiente de ascendencia para cada población estimada. (B) Probabilidad de asignación grupal de cada individuo muestreado.
  • Vol. 2025, 43(3)
  • Artículo Científico

Inoculación de Uromyces viciae-fabae en condiciones controladas

PorJorge Pérez Cárcamo*, José Sergio Sandoval Islas, María Florencia Rodríguez García, Serafín Cruz Izquierdo, Cristian Nava Díaz, Olga Gómez Rodríguez

Recibido: 14/mayo/2025 – Publicado: 01/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2505-4

Resumen Antecedentes/Objetivo. El objetivo fue evaluar temperaturas de incubación y post incubación, concentraciones de inóculo y efecto del ácido maleico para obtener un método eficiente y reproducible para inocular U. viciae-fabae en genotipos de haba.

Materiales y métodos. Los factores evaluados fueron: concentración de inóculo, temperatura de incubación y post-incubación, concentración de ácido maleico y la validación del método de inoculación. Las variables evaluadas fueron: tipo de infección, número de pústulas, porcentaje de severidad, tamaño de pústulas y período de latencia. Se realizó análisis de varianza y comparación de medias con la prueba de Tukey (p ≤ 0.05).

Resultados. Las temperaturas de incubación de 7 y 18 °C no mostraron diferencias significativas. La concentración de urediniosporas de 3 x 10⁶ mostró diferencias significativas en el número de pústulas y severidad. Para el ambiente no controlado de 24 °C en promedio no se observaron síntomas. U. viciae-fabae fue capaz de desarrollarse en temperaturas controladas de 18, 22 °C y en temperaturas no controladas donde el promedio de temperatura fue 20 °C.

Conclusiones. Una inoculación eficiente se pudo obtener con una concentración de 3 × 10⁶ urediniosporas por mL-1 a una temperatura de incubación y post-incubación de 18 °C.

Mostrar Figuras y/o Cuadros
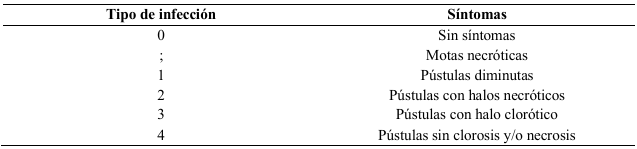
Cuadro 1. Escala de tipo de infección propuesta por Stakman <em>et al</em>. (1962) adaptada a haba por Sillero <em>et al</em>. (2000).
Cuadro 1. Escala de tipo de infección propuesta por Stakman et al. (1962) adaptada a haba por Sillero et al. (2000).
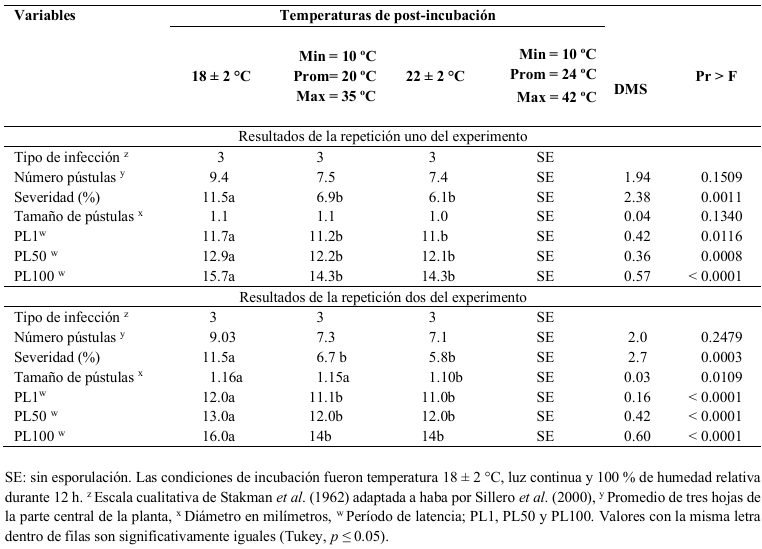
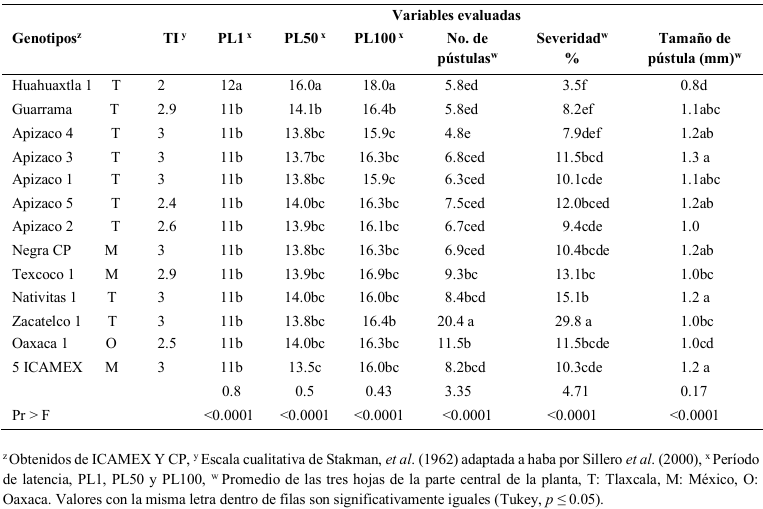
Cuadro 2. Medias de siete variables del monociclo de la infección y valores de p obtenidos de plántulas de haba de la línea 5 ICAMEX inoculadas con 3 × 10<sup>6</sup> urediniosporas frescas mL<sup>-1</sup> de <em>Uromyces viciae-fabae</em> y colocadas bajo cuatro temperaturas de post-incubación de dos experimentos.
Cuadro 2. Medias de siete variables del monociclo de la infección y valores de p obtenidos de plántulas de haba de la línea 5 ICAMEX inoculadas con 3 × 10⁶ urediniosporas frescas mL-1 de Uromyces viciae-fabae y colocadas bajo cuatro temperaturas de post-incubación de dos experimentos.
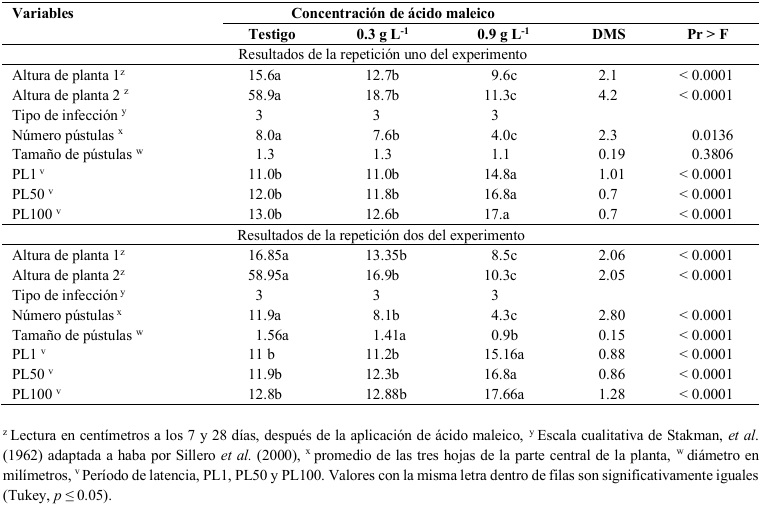
Cuadro 3. Efecto de la aplicación de ácido maleico sobre la altura de plantas de haba de la línea 5 ICAMEX y seis variables del monociclo de la infección de <em>Uromyces viciae-fabae</em> en dos experimentos.
Cuadro 3. Efecto de la aplicación de ácido maleico sobre la altura de plantas de haba de la línea 5 ICAMEX y seis variables del monociclo de la infección de Uromyces viciae-fabae en dos experimentos.
Cuadro 4. Medias de siete variables del monociclo de la infección obtenidas en plántulas de 13 genotipos de haba inoculadas con urediniosporas de <em>Uromyces viciae-fabae</em> para conocer su nivel resistencia.
Cuadro 4. Medias de siete variables del monociclo de la infección obtenidas en plántulas de 13 genotipos de haba inoculadas con urediniosporas de Uromyces viciae-fabae para conocer su nivel resistencia.
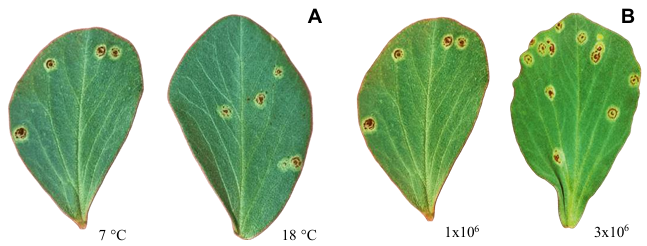
Figura 1. Hojas de haba de la línea 5 ICAMEX con esporulación de <em>Uromyces viciae-fabae</em> aislado CP21 a los 28 días después de la inoculación. A) Hojas inoculadas a una concentración de 1 × 10<sup>6</sup> y expuestas a dos temperaturas de post-inoculación, B) Hojas inoculadas con dos concentraciones de inóculo y expuestas a 18 °C en post-incubación.
Figura 1. Hojas de haba de la línea 5 ICAMEX con esporulación de Uromyces viciae-fabae aislado CP21 a los 28 días después de la inoculación. A) Hojas inoculadas a una concentración de 1 × 10⁶ y expuestas a dos temperaturas de post-inoculación, B) Hojas inoculadas con dos concentraciones de inóculo y expuestas a 18 °C en post-incubación.
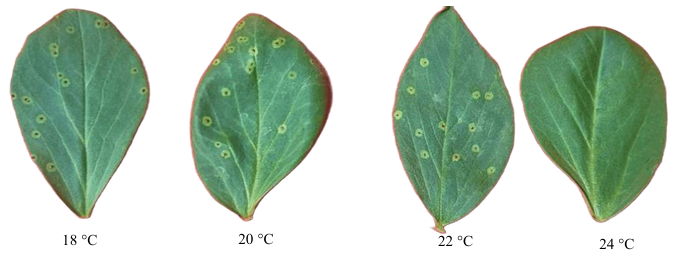
Figura 2. Hojas de haba de la línea 5 ICAMEX mostrando inicio de esporulación a los 13 días después de ser inoculadas con 3 × 10<sup>6</sup> urediniosporas mL<sup>-1</sup> del aislado CP21 de <em>Uromyces viciae-fabae</em> y mantenidas bajo invernadero bajo cuatro temperaturas de post-incubación.
Figura 2. Hojas de haba de la línea 5 ICAMEX mostrando inicio de esporulación a los 13 días después de ser inoculadas con 3 × 10⁶ urediniosporas mL-1 del aislado CP21 de Uromyces viciae-fabae y mantenidas bajo invernadero bajo cuatro temperaturas de post-incubación.
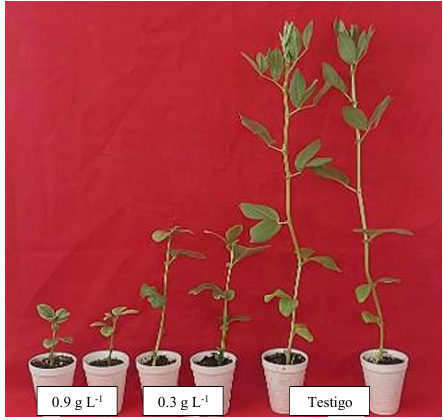
Figura 3. Diferencias en crecimiento de plantas de haba de la línea 5 ICAMEX tratadas con dos concentraciones de ácido maleico.
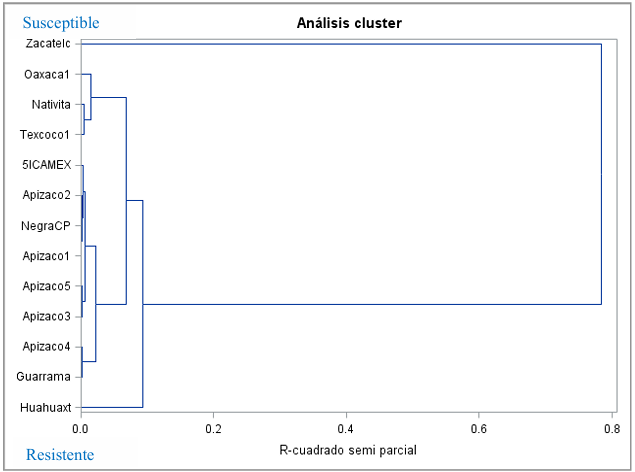
Figura 4. Dendograma de la resistencia y susceptibilidad de 13 genotipos de haba a <em>U. viciae-fabae</em> en condiciones controlas realizado del análisis multivariado de todas las variables evaluadas.
Figura 4. Dendograma de la resistencia y susceptibilidad de 13 genotipos de haba a U. viciae-fabae en condiciones controlas realizado del análisis multivariado de todas las variables evaluadas.
  • Vol. 2025, 43(4)
  • Artículo de Revisión
  • Número Especial

Pimienta gorda (Pimenta dioica) en México y uso de microorganismos antagonistas en roya y antracnosis

PorMarco Antonio Morales German, Marja Liza Fajardo Franco*, Martin Aguilar Tlatelpa

Recibido: 20/noviembre/2024 – Publicado: 01/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-35

Resumen Antecedentes/Objetivo. La pimienta gorda (Pimenta dioica) tiene diferentes usos como especia y potencial utilidad en la industria farmacéutica y cosmética, por lo que es una especie de importancia económica. A nivel mundial, México es el segundo productor de esta especia, donde su cultivo se realiza principalmente por pueblos originarios. La pimienta gorda tiene un alto potencial para incrementar su producción en México, ya que se cuenta con condiciones agroclimáticas favorables. Sin embargo, una limitante es la presencia de enfermedades, entre las que destacan la antracnosis y la roya. El objetivo fue documentar la producción de pimienta gorda en México e identificar alternativas de manejo mediante microorganismos antagonistas ante la ocurrencia de antracnosis (Colletotrichum sp.) y roya (Austropuccinia psidii).

Materiales y Métodos. Se realizó una exhaustiva búsqueda en las plataformas digitales, particularmente en Google académico, ResearchGate, SciELO y Science Direct, donde se utilizaron distintas combinaciones de palabras clave para facilitar la búsqueda, las cuales fueron: Pimenta dioica, allspice, enfermedades, producción, cultivo, pimienta gorda y pimienta de Jamaica en español e inglés. La información se sistematizó y analizó críticamente.

Resultados. La producción de pimienta gorda en México ha aumentado en los últimos años, pero no es suficiente para cubrir el mercado. Así mismo, la información respecto al manejo de la antracnosis y roya en pimienta es escasa, sin embargo, se documentó que Bacillus sp., Trichoderma sp., Fusarium sp. Cladosporium sp., Simplicillium sp., Clonostachys sp., Lecanicillium sp. y Streptomyces sp., tienen potencial antagonista para el manejo de Colletotrichum sp. y Austropuccinia psidii.

Conclusión. Se requieren investigaciones que evalúen la capacidad de inhibición de estos microorganismos, sus mecanismos de acción y efecto sinérgico sobre Colletotrichum sp. y A. psidii en condiciones in vitro y en campo en pimienta gorda.

Mostrar Figuras y/o Cuadros
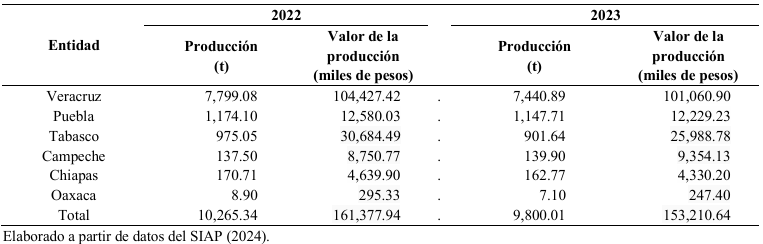
Cuadro 1. Producción de pimienta gorda (<em>Pimenta dioica</em>) en México durante 2022 y 2023.
Cuadro 1. Producción de pimienta gorda (Pimenta dioica) en México durante 2022 y 2023.
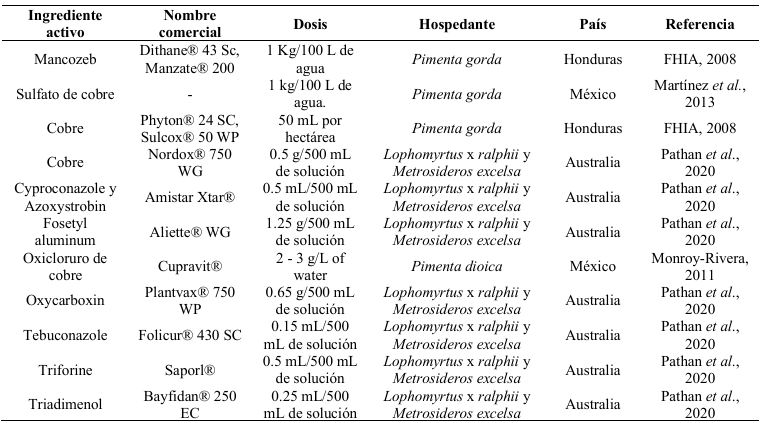
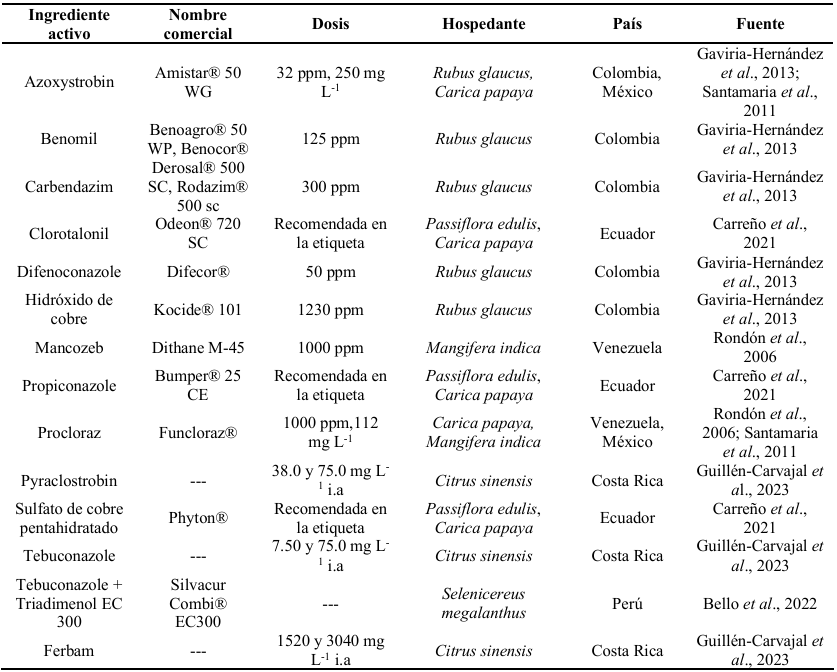
Cuadro 2. Control químico de <em>Austropuccinia psidii</em> en especies de la familia Myrtaceae.
Cuadro 2. Control químico de Austropuccinia psidii en especies de la familia Myrtaceae.
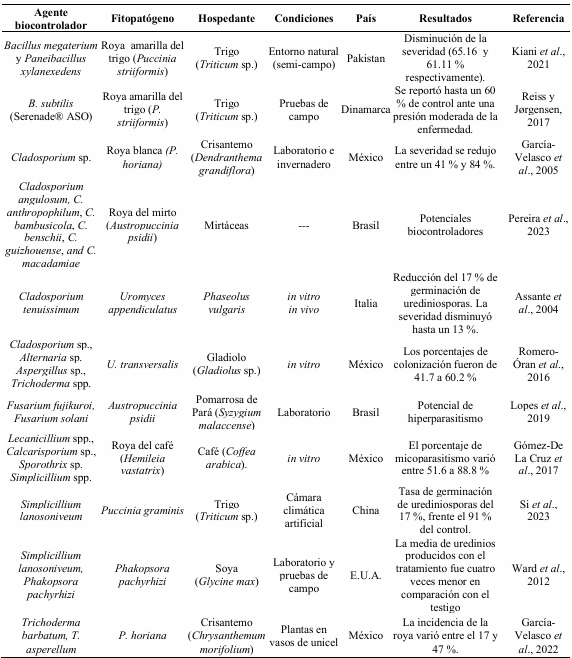
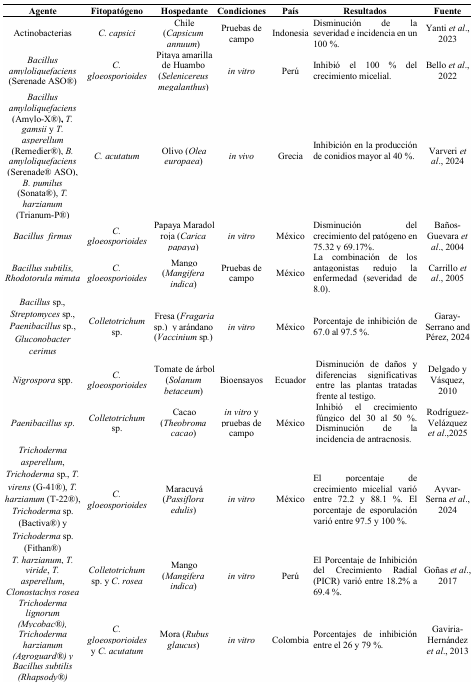
Cuadro 3. Microorganismos reportados como antagonistas de royas pertenecientes al orden Pucciniales.
Cuadro 4. Control químico para el manejo de <em>Colletotrichum</em> sp. en diferentes hospedantes.
Cuadro 4. Control químico para el manejo de Colletotrichum sp. en diferentes hospedantes.
Cuadro 5. Microorganismos reportados como antagonistas de <em>Colletotrichum</em> sp.
Cuadro 5. Microorganismos reportados como antagonistas de Colletotrichum sp.
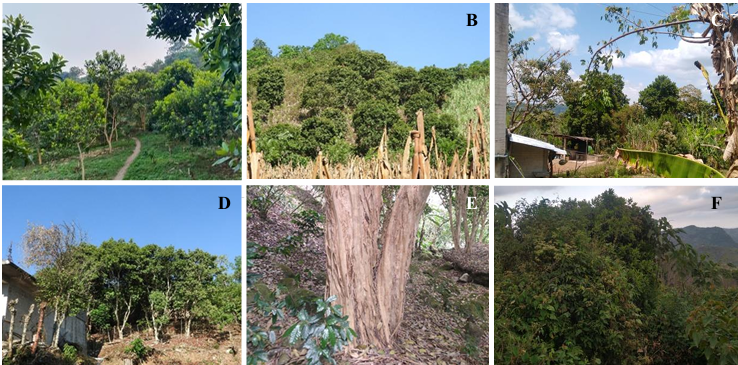
Figura 1. Sistemas de producción de pimienta gorda con manejo tradicional totonaco en Lipuntahuaca, Huehuetla, Puebla. <strong>A</strong>) Monocultivo; <strong>B</strong>) Intercalado con maíz; <strong>C</strong>) Huerto familiar; D) Cerca viva; <strong>E</strong>) Café bajo sombra de pimienta gorda; <strong>F</strong>) <em>Acahual</em> (asociaciones vegetales en áreas originalmente ocupadas por selvas).
Figura 1. Sistemas de producción de pimienta gorda con manejo tradicional totonaco en Lipuntahuaca, Huehuetla, Puebla. A) Monocultivo; B) Intercalado con maíz; C) Huerto familiar; D) Cerca viva; E) Café bajo sombra de pimienta gorda; F) Acahual (asociaciones vegetales en áreas originalmente ocupadas por selvas).
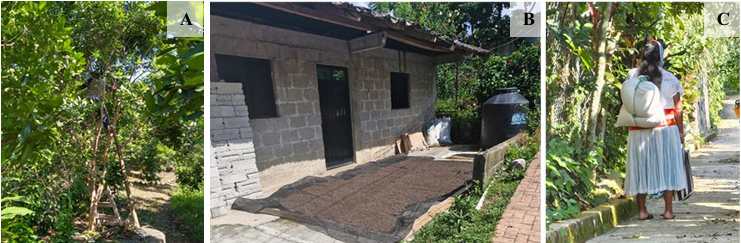
Figura 2. Producción de la pimienta gorda en Lipuntahuaca, Huehuetla Puebla. <strong>A</strong>) Corte de fruto verde en árboles de pimienta gorda; <strong>B</strong>) Asoleadero para fruto seco; <strong>C</strong>) Trasporte de fruto seco de pimienta gorda.
Figura 2. Producción de la pimienta gorda en Lipuntahuaca, Huehuetla Puebla. A) Corte de fruto verde en árboles de pimienta gorda; B) Asoleadero para fruto seco; C) Trasporte de fruto seco de pimienta gorda.
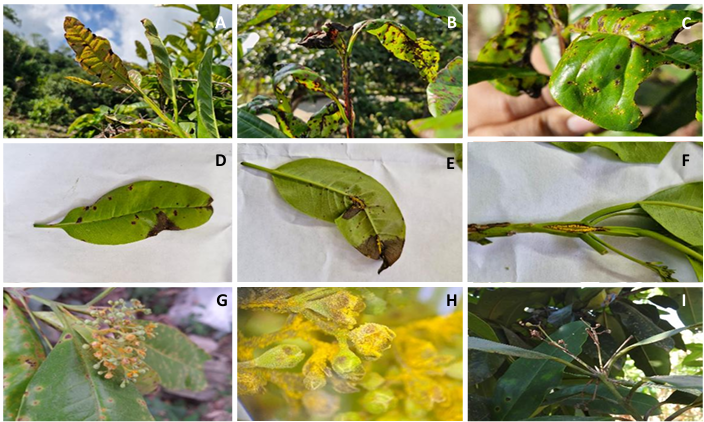
Figura 3. Síntomas y signos de roya (<em>Austropuccinia psidii</em>) en pimienta gorda cultivada en Huehuetla, Puebla, México. <strong>A</strong> y <strong>B</strong>) Presencia de roya en hojas jóvenes; <strong>C</strong> y <strong>D</strong>) Pústulas en el haz de la hoja; <strong>E</strong>) Pústulas en el envés de la hoja, <strong>F</strong>) Pústulas en el tallo; <strong>G</strong>) Presencia de roya en botones florales; <strong>H</strong>) Visualización de botones florales infectados con roya; <strong>I</strong>) Necrosis y caída de botones florales causados por roya.
Figura 3. Síntomas y signos de roya (Austropuccinia psidii) en pimienta gorda cultivada en Huehuetla, Puebla, México. A y B) Presencia de roya en hojas jóvenes; C y D) Pústulas en el haz de la hoja; E) Pústulas en el envés de la hoja, F) Pústulas en el tallo; G) Presencia de roya en botones florales; H) Visualización de botones florales infectados con roya; I) Necrosis y caída de botones florales causados por roya.
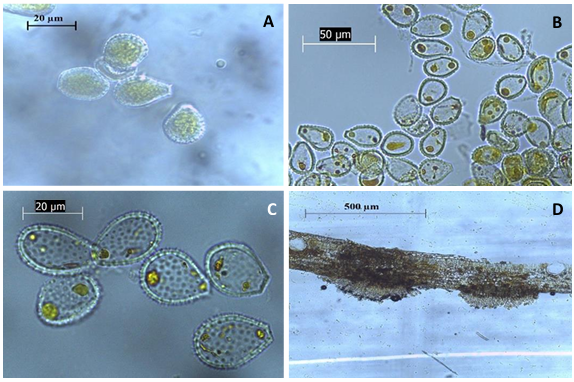
Figura 4. Uredinios y uredioniosporas de la roya (<em>Austropuccinia psidii</em>) obtenidas de muestras vegetales colectadas en Huehuetla, Puebla. <strong>A</strong>-<strong>C</strong>) Visualización de uredioniosporas equinuladas con base truncada; <strong>D</strong>) Visualización de uredinios en un corte trasversal de hoja de pimienta gorda.
Figura 4. Uredinios y uredioniosporas de la roya (Austropuccinia psidii) obtenidas de muestras vegetales colectadas en Huehuetla, Puebla. A-C) Visualización de uredioniosporas equinuladas con base truncada; D) Visualización de uredinios en un corte trasversal de hoja de pimienta gorda.
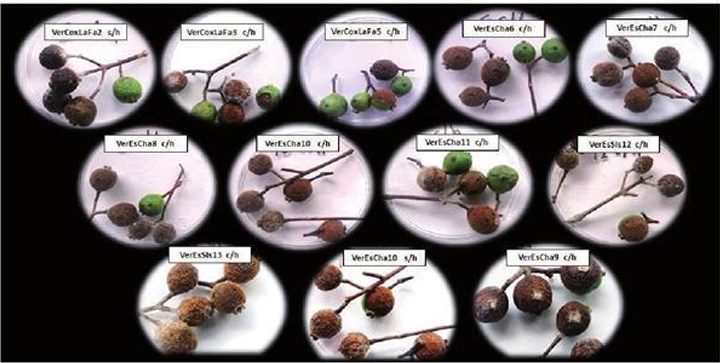
Figura 5. Síntomas de antracnosis en frutos de pimienta gorda colectados en Veracruz, México. Fuente: Velázquez-Silva <em>et al</em>. (2018).
Figura 5. Síntomas de antracnosis en frutos de pimienta gorda colectados en Veracruz, México. Fuente: Velázquez-Silva et al. (2018).
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Actividad antifúngica in vitro y caracterización fitoquímica de extractos acuosos de Datura discolor

PorDiana Angelina Urias Lugo, Gabriela López Angulo, Octavio Ernesto Martínez Ereva, Sylvia Paz Díaz Camacho, Carlos Ramiro Ibarra Sarmiento, Luis Gerardo Sarmiento López, Laura Aracely Contreras Angulo, Guadalupe Arlene Mora Romero*

Recibido: 28/febrero/2025 – Publicado: 22/julio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2502-2

Resumen Antecedentes/Objetivo. Sclerotium rolfsii y Sclerotinia sclerotiorum causan enfermedades de importancia agrícola. El uso de fitoextractos con propiedades antifúngicas es una alternativa para reducir la aplicación de agroquímicos en el manejo de fitopatógenos. El presente estudio reporta la caracterización fitoquímica de extractos acuosos por infusión y por Procesamiento por Altas Presiones (HPP) de Datura discolor y su evaluación antifúngica.

Materiales y Métodos. Extractos acuosos de raíz, tallo, semilla y hoja de D. discolor (2, 4 y 6 % p/v) se obtuvieron por infusión y por HPP. El análisis fitoquímico se realizó por pruebas de tamizaje y la cuantificación de metabolitos totales mediante pruebas colorimétricas. La actividad antifúngica de los extractos obtenidos por infusión se determinó a través del porcentaje de inhibición in vitro de los patógenos.

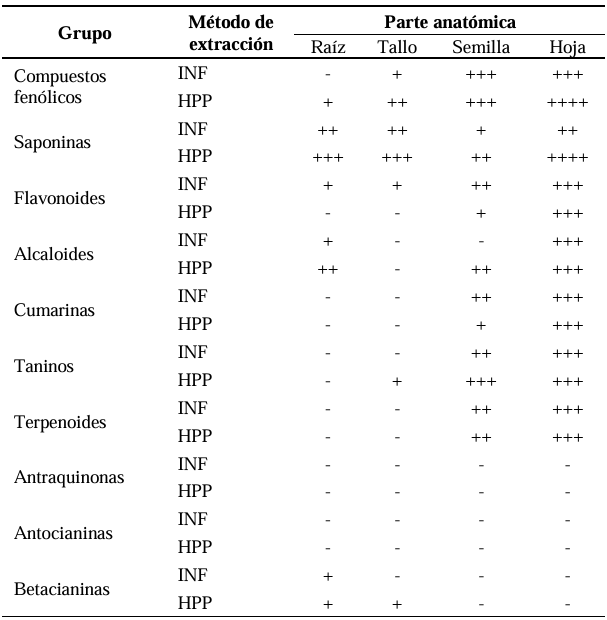
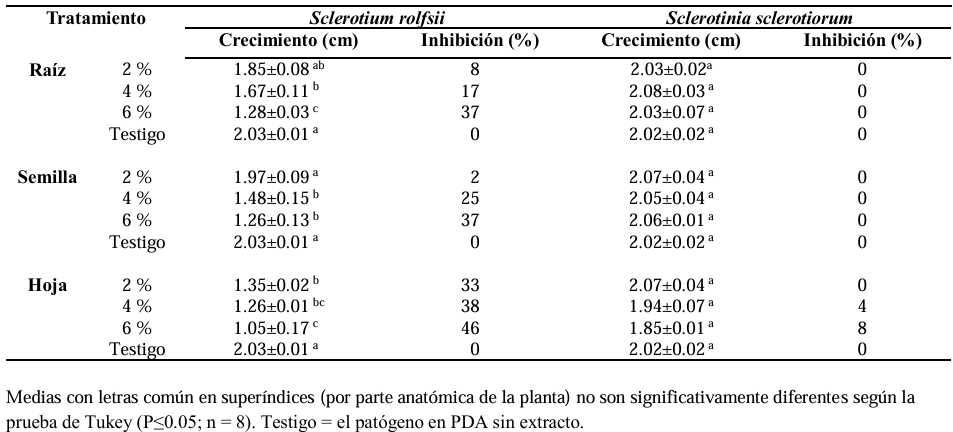
Resultados. El contenido de fenólicos totales y saponinas en raíz, tallo y hoja fue mayor por HPP, mientras que en semilla destacó la infusión. Se observaron flavonoides solo en hoja por HPP. El contenido de alcaloides fue similar en infusión y HPP. Se detectaron fenoles, saponinas, flavonoides, alcaloides, taninos, terpenoides, cumarinas y betacianinas, pero no antraquinonas ni antocianinas. Los extractos inhibieron de 2 a 46 % a S. rolfsii, pero no a S. sclerotiorum.

Conclusión. Los resultados indican la participación de compuestos fenólicos y flavonoides en la actividad antifúngica contra los fitopatógenos evaluados; no se descarta la participación de otros compuestos no analizados. Se requiere realizar estudios en condiciones de invernadero, con aplicación de los extractos por aspersión foliar o suelo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Detección de compuestos fitoquímicos de extractos acuosos de hoja de <em>Datura discolor</em> al 6 % obtenidos por infusión (INF) y por procesamiento por alta presión (HPP).
Cuadro 1. Detección de compuestos fitoquímicos de extractos acuosos de hoja de Datura discolor al 6 % obtenidos por infusión (INF) y por procesamiento por alta presión (HPP).
Cuadro 2. Inhibición <em>in vitro</em> del crecimiento micelial de <em>Sclerotium rolfsii</em> y <em>Sclerotinia sclerotiorum</em>. Los tratamientos mostrados son con extractos acuosos de <em>Datura discolor</em> obtenidos por infusión.
Cuadro 2. Inhibición in vitro del crecimiento micelial de Sclerotium rolfsii y Sclerotinia sclerotiorum. Los tratamientos mostrados son con extractos acuosos de Datura discolor obtenidos por infusión.
Figura 1. Cuantificación de compuestos fitoquímicos de extractos acuosos de <em>Datura discolor</em> al 6 % obtenidos mediante procesamiento por alta presión (HPP) e infusión (INF). Equivalentes de ácido gálico (EAG), Equivalentes de diosgenina (ED), Equivalentes de quercetina (EQ), Equivalentes de atropina (EA).
Figura 1. Cuantificación de compuestos fitoquímicos de extractos acuosos de Datura discolor al 6 % obtenidos mediante procesamiento por alta presión (HPP) e infusión (INF). Equivalentes de ácido gálico (EAG), Equivalentes de diosgenina (ED), Equivalentes de quercetina (EQ), Equivalentes de atropina (EA).
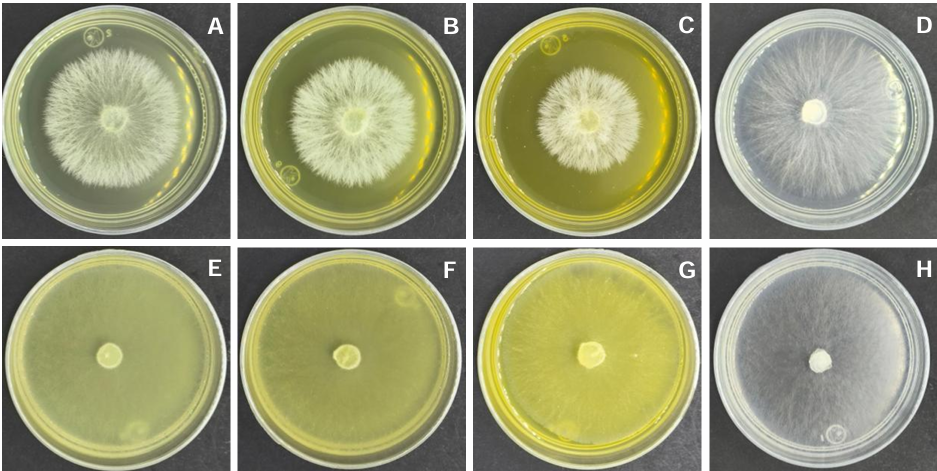
Figura 2. Efecto de extracto acuoso de hoja de <em>Datura discolor</em> obtenido por infusión. <em>Datura discolor</em> (2, 4 y 6 %) y Testigo, respectivamente. <strong>A</strong>-<strong>D </strong><em>Sclerotium rolfsii</em>, <strong>E</strong>-<strong>H</strong> <em>Sclerotinia sclerotiorum</em>.
Figura 2. Efecto de extracto acuoso de hoja de Datura discolor obtenido por infusión. Datura discolor (2, 4 y 6 %) y Testigo, respectivamente. A-D Sclerotium rolfsii, E-H Sclerotinia sclerotiorum.
  • Vol. 2025, 43(3)
  • Artículo Científico

Composición de ácidos grasos de lipopéptidos con actividad antifúngica sintetizados por Bacillus amyloliquefaciens

PorNancy Ley López, José Basilio Heredia, Isabel Cruz Lachica, Isidro Márquez Zequera, Raymundo Medina López, Cesar San Martín Hernández, Raymundo Saúl García Estrada*

Recibido: 14/mayo/2025 – Publicado: 18/julio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2503-1

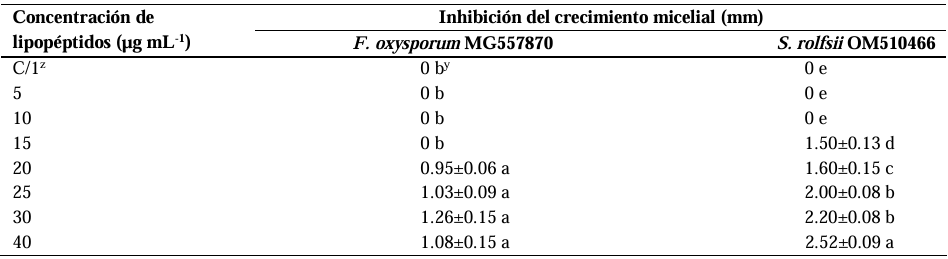
Resumen Antecedentes/Objetivo. Algunas especies de Bacillus sintetizan lipopéptidos con actividad biológica, que contienen ácidos grasos de longitud variable. La composición de ácidos grasos es clave para su posible actividad como agentes surfactantes. El objetivo fue determinar la composición y cuantificación de ácidos grasos en las estructuras de los lipopéptidos sintetizados por Bacillus amyloliquefaciens KX953161.1 y observar el efecto de los lipopéptidos sobre el crecimiento micelial de Fusarium oxysporum MG557870 y Sclerotium rolfsii OM510466.

Materiales y Métodos. El perfil lipídico del extracto con lipopéptidos sintetizados por B. amyloliquefaciens KX953161.1 se realizó mediante cromatografía de gases con detector de ionización de llama (GC-FID), la cuantificación de los ácidos grasos detectados se realizó mediante el método de estandarización de áreas y para la determinación de grasa se realizó con el método de 920.39 AOAC. Además, se utilizó microscopía electrónica de barrido (SEM) para observar el efecto inhibitorio de los lipopéptidos sobre el crecimiento micelial de F. oxysporum MG557870 y S. rolfsii OM510466. Los datos obtenidos (determinación de ácidos grasos y CMI) fueron analizados mediante análisis de varianza (ANOVA), y la comparación de medias se realizó con la prueba de Tukey (p≤0.05).

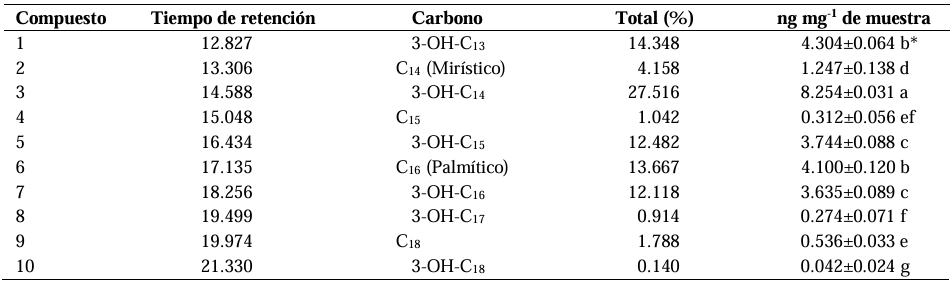
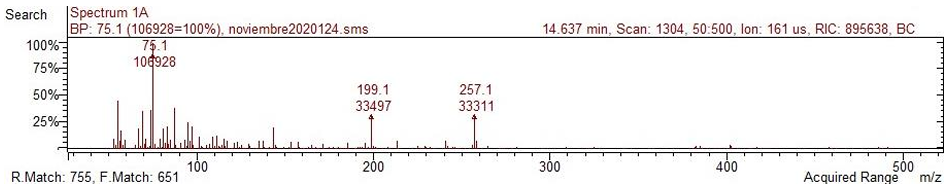
Resultados. Se observó una variabilidad de ácidos grasos C13 al C18 β-hidroxilados. El ácido graso C14 β-hidroxilado (tetradecanoico), obtuvo mayor contenido con 8.254±0.031 ng mg-1 de muestra, seguido los ácidos grasos C13 β-hidroxilado (tridecanoico) y C16 (palmítico) con 4.304±0.064 y 4.100±0.120 ng mg-1, respectivamente. La concentración mínima inhibitoria (CMI) de los lipopéptidos sobre F. oxysporum MG557870 y S. rolfsii OM510466 fue de 20 y 15 µg mL-1. El daño en células fúngicas se presentó en su estructura y morfología.

Conclusión. La síntesis de lipopéptidos por B. amyloliquefaciens KX953161.1 presenta variación en la longitud de las cadenas de ácidos grasos, compuestas principalmente por ácido graso C14 (tetradecanoico). Esta variabilidad podría estar relacionada con la actividad biológica de los lipopéptidos y el ácido graso C14 (tetradecanoico) podría ser importante en su antagonismo contra hongos fitopatógenos.

Mostrar Figuras y/o Cuadros
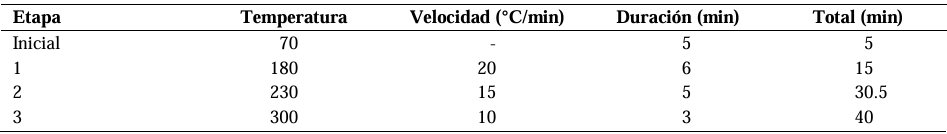
Cuadro 1. Condiciones de inyección por Cromatografía de Gases (CG).
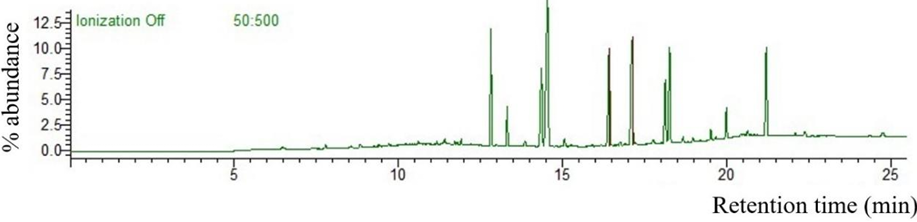
Cuadro 2. Perfil de ácidos grasos de los lipopéptidos biosintetizados por <em>Bacillus amyloliquefaciens</em> KX953161.1, identificados por CG-MS.
Cuadro 2. Perfil de ácidos grasos de los lipopéptidos biosintetizados por Bacillus amyloliquefaciens KX953161.1, identificados por CG-MS.
Cuadro 3. Efecto antifúngico de los lipopéptidos sintetizados por <em>B. amyloliquefaciens</em> KX953161.1 con la CMI sobre el crecimiento micelial de <em>F. oxysporum</em> MG557870 y <em>S. rolfsii</em> OM510466.
Cuadro 3. Efecto antifúngico de los lipopéptidos sintetizados por B. amyloliquefaciens KX953161.1 con la CMI sobre el crecimiento micelial de F. oxysporum MG557870 y S. rolfsii OM510466.
Figura 1. Cromatograma del perfil lipídico de los lipopéptidos sintetizados por <em>Bacillus amyloliquefaciens</em> KX953161.1, analizados por CG-MS.
Figura 1. Cromatograma del perfil lipídico de los lipopéptidos sintetizados por Bacillus amyloliquefaciens KX953161.1, analizados por CG-MS.
Figura 2. Espectro de masas del ácido graso C<sub>14</sub> (Tetradecanoico) del extracto con lipopéptidos sintetizado por <em>B. amyloliquefaciens</em> KX953161.1.
Figura 2. Espectro de masas del ácido graso C14 (Tetradecanoico) del extracto con lipopéptidos sintetizado por B. amyloliquefaciens KX953161.1.
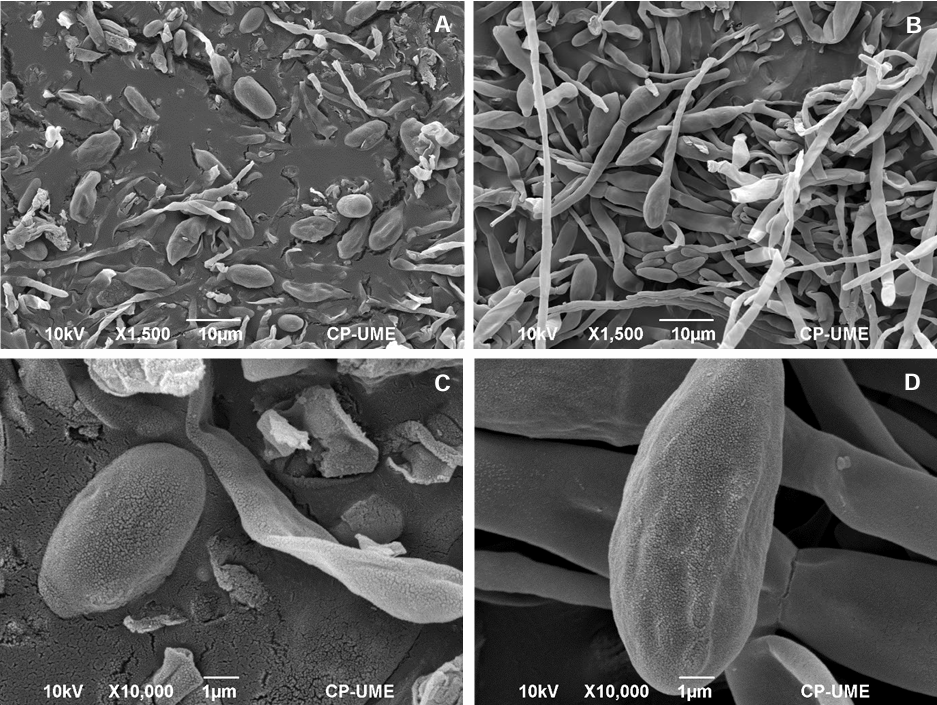
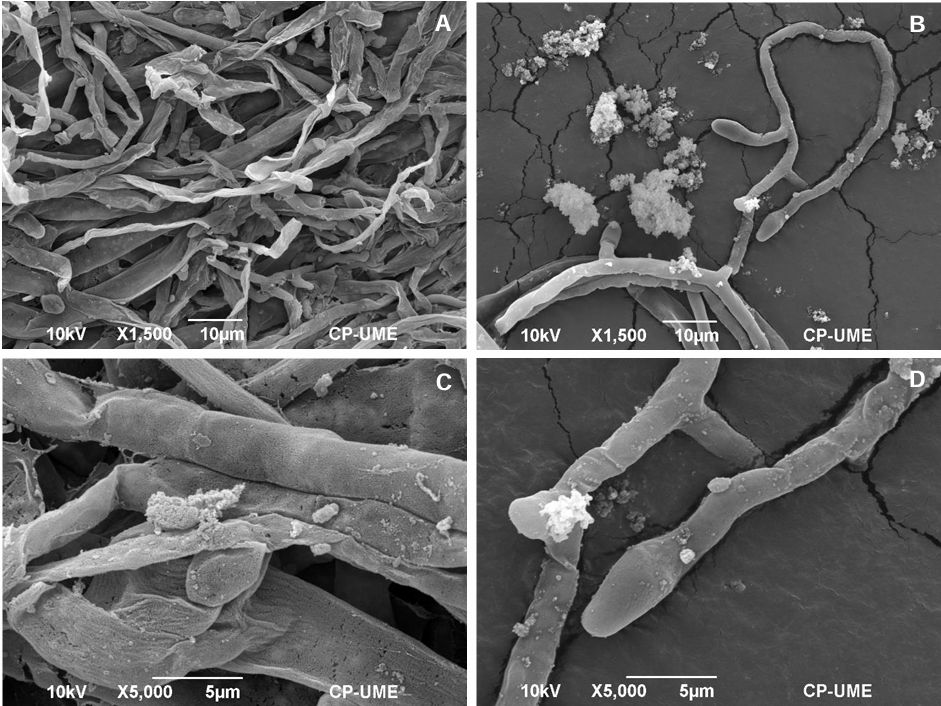
Figura 3. Micrografías (MEB) de esporas e hifas de <em>Fusarium oxysporum</em> MG557870 después del tratamiento con lipopéptidos sintetizados por <em>Bacillus amyloliquefaciens</em> KX953161.1. A y C: esporas e hifas tratadas con lipopéptidos (1,500x, bar= 10 µm y 10,000x, bar= 1 µm, respectivamente); B y D: esporas e hifas sin lipopéptidos (1,500x, bar= 10 µm y 10,000x, bar= 1 µm, respectivamente).
Figura 3. Micrografías (MEB) de esporas e hifas de Fusarium oxysporum MG557870 después del tratamiento con lipopéptidos sintetizados por Bacillus amyloliquefaciens KX953161.1. A y C: esporas e hifas tratadas con lipopéptidos (1,500x, bar= 10 µm y 10,000x, bar= 1 µm, respectivamente); B y D: esporas e hifas sin lipopéptidos (1,500x, bar= 10 µm y 10,000x, bar= 1 µm, respectivamente).
Figura 4. Micrografías (MEB) de micelio de <em>Sclerotium rolfsii</em> OM510466 después del tratamiento con lipopéptidos sintetizados por <em>Bacillus amyloliquefaciens</em> KX953161.1. A y C: micelio tratado con lipopéptidos (1,500x, bar= 10 µm y 5,000x, bar= 5 µm, respectivamente); B y D: micelio sin lipopéptidos (1,500x, bar= 10 µm y 5,000x, bar= 5 µm, respectivamente).
Figura 4. Micrografías (MEB) de micelio de Sclerotium rolfsii OM510466 después del tratamiento con lipopéptidos sintetizados por Bacillus amyloliquefaciens KX953161.1. A y C: micelio tratado con lipopéptidos (1,500x, bar= 10 µm y 5,000x, bar= 5 µm, respectivamente); B y D: micelio sin lipopéptidos (1,500x, bar= 10 µm y 5,000x, bar= 5 µm, respectivamente).
  • Vol. 2025, 43(3)
  • Reporte Fitopatológico

Primer reporte de Orthotospovirus impatiensnecromaculae infectando lechuga (Lactuca sativa) en Guanajuato, México

PorMaría de los Ángeles Mora Ugalde, Jesús Serrano Castillejos, Alfredo Diaz Lara*

Recibido: 26/marzo/2025 – Publicado: 16/julio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2503-3

Resumen Antecedentes/Objetivo. Determinar la presencia de Orthotospovirus impatiensnecromaculae (Impatiens necrotic spot virus, INSV) en el cultivo de lechuga en Guanajuato, México.

Materiales y Métodos. Se recolectaron muestras de plantas de lechuga sintomáticas de un campo comercial en Guanajuato, México, en mayo de 2024. La detección e identificación en 12 muestras individuales con inmunotiras y por transcripción inversa PCR (RT-PCR), y corroboración por secuenciación Sanger.

Resultados. Diez de las 12 muestras de lechuga analizadas con inmunotiras, fueron positivas para O. impatiensnecromaculae. La identidad del virus se confirmó por RT PCR y secuenciación Sanger (GenBank: PQ151798).

Conclusión. La presencia de INSV en los campos comerciales de lechuga en Guanajuato resalta la necesidad de un monitoreo continuo y la implementación de estrategias de manejo integrado para mitigar su propagación y el impacto en esta región.

Mostrar Figuras y/o Cuadros
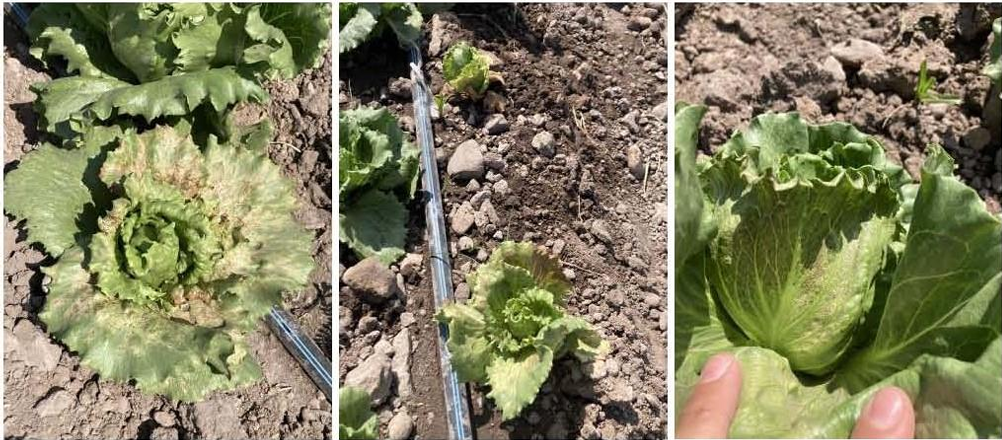
Figura 1. Plantas de lechuga sintomáticas infectadas con <em>Orthotospovirus impatiensnecromaculae</em> observadas durante el estudio de campo.
Figura 1. Plantas de lechuga sintomáticas infectadas con Orthotospovirus impatiensnecromaculae observadas durante el estudio de campo.
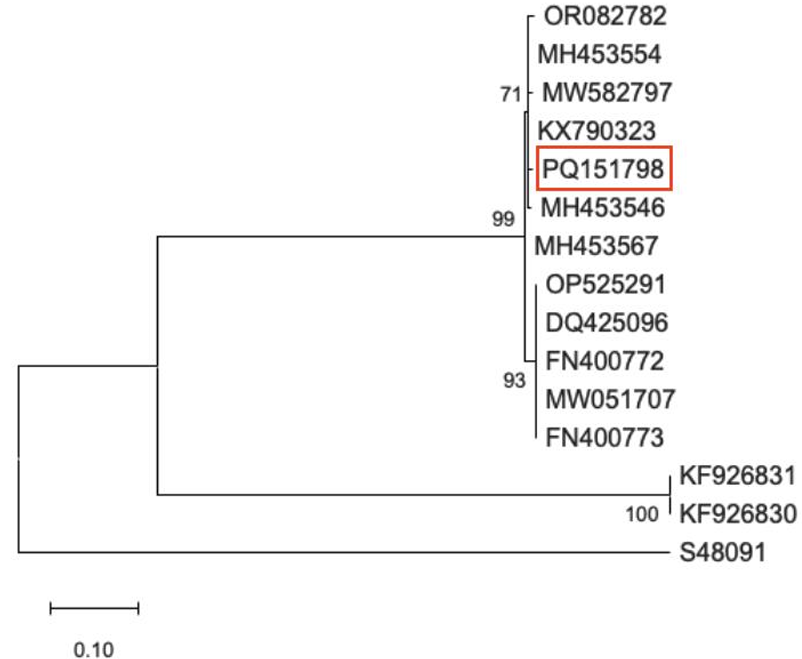
Figura 2. Árbol filogenético de máxima verosimilitud de múltiples aislados de <em>Orthotospovirus impatiensnecromaculae</em> (Impatiens necrotic spot virus, INSV) disponibles en GenBank. Secuencia generada durante este estudio es indicada con rojo. GenBank: S48091 corresponde a el <em>Orthotospovirus tomatomaculae</em> (tomato spotted wilt virus, TSWV) y es incluido en el análisis filogenético como grupo externo.
Figura 2. Árbol filogenético de máxima verosimilitud de múltiples aislados de Orthotospovirus impatiensnecromaculae (Impatiens necrotic spot virus, INSV) disponibles en GenBank. Secuencia generada durante este estudio es indicada con rojo. GenBank: S48091 corresponde a el Orthotospovirus tomatomaculae (tomato spotted wilt virus, TSWV) y es incluido en el análisis filogenético como grupo externo.
  • Vol. 2025, 43(3)
  • Artículo Científico

Histopatología de Peronospora tabacina en hojas de tabaco

PorYadira Margarita Ramos Barraza, Isabel Cruz Lachica, Juan Manuel Tovar Pedraza, José Benigno Valdez Torres, Raymundo Saúl García Estrada*

Recibido: 28/febrero/2025 – Publicado: 10/julio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2412-00

Resumen Antecedentes/Objetivo. Peronospora tabacina es un oomiceto causante de moho azul en tabaco. Actualmente se conoce poco sobre el proceso de patogénesis de este patógeno, ya que los estudios disponibles se han centrado en aspectos generales de la infección, siendo escasos los análisis histológicos detallados; por lo tanto, el objetivo de este estudio fue describir los cambios histológicos que se presentan durante la infección de P. tabacina en plantas de tabaco inoculadas artificialmente.

Materiales y Métodos. El proceso de infección fue analizado mediante tinción diferencial de tejidos con safranina-verde rápido en plantas inoculadas bajo condiciones de invernadero. Los cortes de tejido se realizaron a las 2, 4, 6, 9, 12, 18, 20, 24, 30, 36, 48, 60, 72, 96, 120, 148, 172, 196 y 220 horas después de la inoculación (hdi).

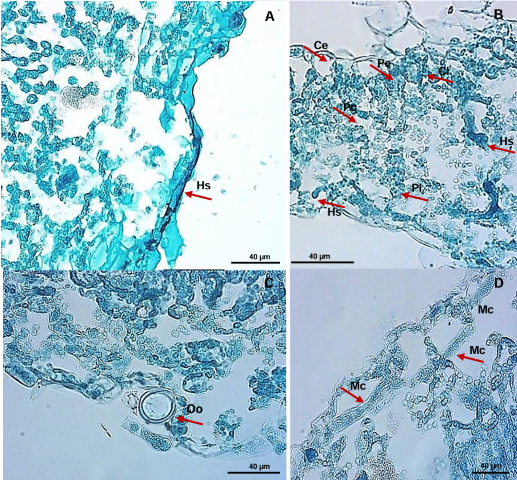
Resultados. La presencia de esporangiosporas adheridas a la cutícula de la hoja se observó entre 2 y 48 hdi, las cuales germinaron a partir de las 96 hdi. La penetración del patógeno en las hojas ocurrió de manera directa por medio de apresorios 96 hdi. Las primeras hifas de infección emergieron a partir de 96-120 hdi y entre 168 y 192 hdi se desarrollaron hifas intracelulares que colonizaron el interior de los tejidos, provocando colapso celular en parénquima lagunar y clorofílico, así como alteraciones estructurales en haces vasculares y células epidérmicas. El patógeno completó su ciclo de infección al producir oosporas y esporangios a las 192 hdi, considerándose una fuente de inóculo para la infección de nuevos tejidos.

Conclusión. Peronospora tabacina es capaz de penetrar directamente el tejido foliar del tabaco mediante apresorios y desarrollar una infección progresiva tanto intercelular como intracelular, con alteraciones severas en la anatomía foliar y finalización del ciclo con producción de estructuras reproductivas en un periodo corto, lo que refuerza su potencial como patógeno agresivo en condiciones favorables.

Mostrar Figuras y/o Cuadros
Figura 1. Etapas del proceso de infección de <em>Peronospora tabacina</em> en hojas de tabaco inoculadas artificialmente. A) Corte transversal de hoja sana mostrando epidermis abaxial (EAb) y adaxial (EAd) y estoma (St). B) Corte longitudinal de hoja sana mostrando epidermis (Ep), Haces vasculares (Hv) y Parenquima en empalizada (Pe). C) Corte longitudinal a 24 hdi con esporangio (Es) en base de tricoma. D) Corte longitudinal a 48 hdi con esporangio en epidermis. Barra = 40 µm.
Figura 1. Etapas del proceso de infección de Peronospora tabacina en hojas de tabaco inoculadas artificialmente. A) Corte transversal de hoja sana mostrando epidermis abaxial (EAb) y adaxial (EAd) y estoma (St). B) Corte longitudinal de hoja sana mostrando epidermis (Ep), Haces vasculares (Hv) y Parenquima en empalizada (Pe). C) Corte longitudinal a 24 hdi con esporangio (Es) en base de tricoma. D) Corte longitudinal a 48 hdi con esporangio en epidermis. Barra = 40 µm.
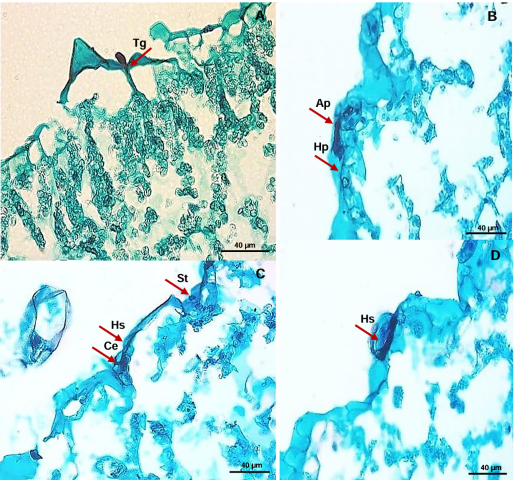
Figura 2. Desarrollo de estructuras infecciosas de <em>Peronospora tabacina</em> en hojas de tabaco. A) Tubo germinativo (Tg) emergiendo de esporangio a 96 hdi. B) Hifas de penetración (Hp) emergiendo de apresorio (Ap) a 96 hdi. C) Hifas secundarias (Hs) invadiendo células epidérmicas (Ce) intracelularmente a 96 hdi. D) Hifas de infección (Hi) emergiendo de apresorio e invadiendo tejidos a 120 hdi. Barra = 40 µm.
Figura 2. Desarrollo de estructuras infecciosas de Peronospora tabacina en hojas de tabaco. A) Tubo germinativo (Tg) emergiendo de esporangio a 96 hdi. B) Hifas de penetración (Hp) emergiendo de apresorio (Ap) a 96 hdi. C) Hifas secundarias (Hs) invadiendo células epidérmicas (Ce) intracelularmente a 96 hdi. D) Hifas de infección (Hi) emergiendo de apresorio e invadiendo tejidos a 120 hdi. Barra = 40 µm.
Figura 3. Invasión avanzada de <em>Peronospora tabacina</em> en tejido foliar de tabaco. A) Hifas secundarias (Hs) invadiendo intracelularmente a 120 hdi. B) Hifas cenocíticas creciendo intracelularmente a 192 hdi, provocando desorden celular, destruyendo parénquima lagunar (Pl), parénquima clorofílico (Pc) y cloroplastos (Cl). C) Formación de oosporas (Oo) a 192 hdi. D) Micelio cenocítico (Mc) causando desorden celular y destrucción de tejidos foliares a 192 hdi.
Figura 3. Invasión avanzada de Peronospora tabacina en tejido foliar de tabaco. A) Hifas secundarias (Hs) invadiendo intracelularmente a 120 hdi. B) Hifas cenocíticas creciendo intracelularmente a 192 hdi, provocando desorden celular, destruyendo parénquima lagunar (Pl), parénquima clorofílico (Pc) y cloroplastos (Cl). C) Formación de oosporas (Oo) a 192 hdi. D) Micelio cenocítico (Mc) causando desorden celular y destrucción de tejidos foliares a 192 hdi.
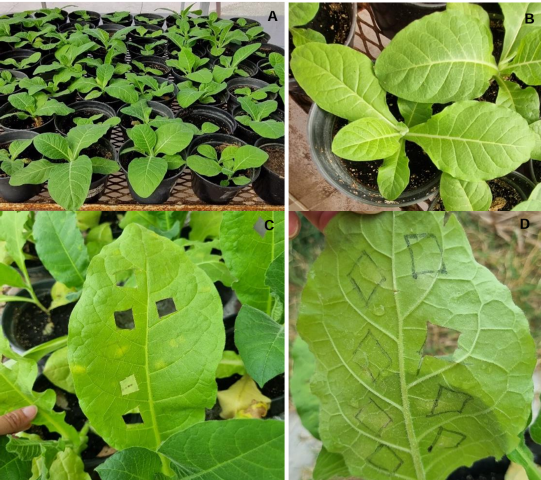
Figura 4. Síntomas foliares causados por <em>Peronospora tabacina</em> (aislado Pt1SA) en tabaco. A) Plantas sanas utilizadas para la inoculación. B) Plantas testigo no inoculadas. C) y D) Hojas con síntomas en las superficies adaxial y abaxial a partir de las 168 hdi.
Figura 4. Síntomas foliares causados por Peronospora tabacina (aislado Pt1SA) en tabaco. A) Plantas sanas utilizadas para la inoculación. B) Plantas testigo no inoculadas. C) y D) Hojas con síntomas en las superficies adaxial y abaxial a partir de las 168 hdi.
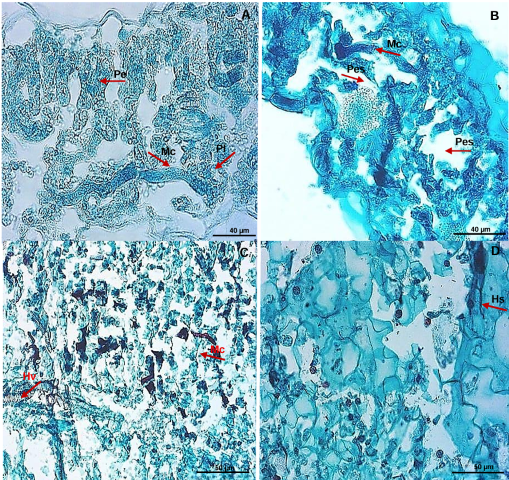
Figura 5. Cortes longitudinales de hoja de tabaco a las 192 hdi y 216 hdi mostrando colonización del mesófilo foliar por <em>Peronospora tabacina</em>. A) Micelio cenocítico (Mc) invadiendo los tejidos del parénquima en empalizada (Pe) y parénquima lagunar (Pl). B) Hifas intercelulares en el parénquima esponjoso (Pes). C) Distribución de micelio cenocítico en el mesófilo foliar. D) Acumulación de hifas secundarias (Hs) en espacios intercelulares.
Figura 5. Cortes longitudinales de hoja de tabaco a las 192 hdi y 216 hdi mostrando colonización del mesófilo foliar por Peronospora tabacina. A) Micelio cenocítico (Mc) invadiendo los tejidos del parénquima en empalizada (Pe) y parénquima lagunar (Pl). B) Hifas intercelulares en el parénquima esponjoso (Pes). C) Distribución de micelio cenocítico en el mesófilo foliar. D) Acumulación de hifas secundarias (Hs) en espacios intercelulares.

Página 6 de 16