
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)

Todos los Artículos

  • Vol. 2025, 43(4)
  • Artículo de Revisión
  • Número Especial

Alternativas agroecológicas para contrarrestar enfermedades en cultivos de Capsicum

PorWendy Abril Coyotl Pérez, Mariana Flores Hernández, Cesar Agustín Ramírez Díaz, Nemesio Villa Ruano*

Recibido: 23/noviembre/2024 – Publicado: 07/octubre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-20

Resumen Justificación. Los frutos de Capsicum spp. son ampliamente conocidos y comercializados a nivel mundial por su relevancia en la gastronomía y la industria farmacéutica. Las cinco especies más importantes son C. annuum, C. baccatum, C. chinense, C. frutescens y C. pubescens; sin embargo, hasta el momento se han registrado más de 43 especies silvestres. Las plantas y frutos de chile son susceptibles a enfermedades causadas por bacterias y hongos fitopatógenos, por lo que se utilizan rutinariamente productos de origen sintéticos para controlarlos. Estos generan efectos secundarios graves para el medio ambiente y la salud humana. De manera similar, el uso de estos compuestos induce mayor resistencia microbiana y enfermedades cada vez más severas en los cultivos. Por lo anterior, esta revisión aborda las principales enfermedades que afecta al cultivo del chile, así como las alternativas agroecológicas de biocontrol con antagonistas y el uso de bioproductos vegetales para reducir la incidencia y severidad de las enfermedades.

Marco teórico y experimental. Se realizó una revisión bibliográfica actualizada en torno a las enfermedades que afecta a distintas especies de chile, así como de las alternativas agroecológicas para su control.

Conclusiones y Perspectivas. La producción de chile enfrenta retos por enfermedades y el uso excesivo de agroquímicos que provocan resistencia microbiana y daños ambientales. Los microorganismos antagonistas, extractos y aceites esenciales de plantas ofrecen una alternativa agroecológica viable para controlar fitopatógenos sin impactos negativos. Aunque estas estrategias aportan beneficios a mediano y largo plazo, se requiere más investigación para controlar enfermedades virales y lograr una producción sostenible.

Mostrar Figuras y/o Cuadros
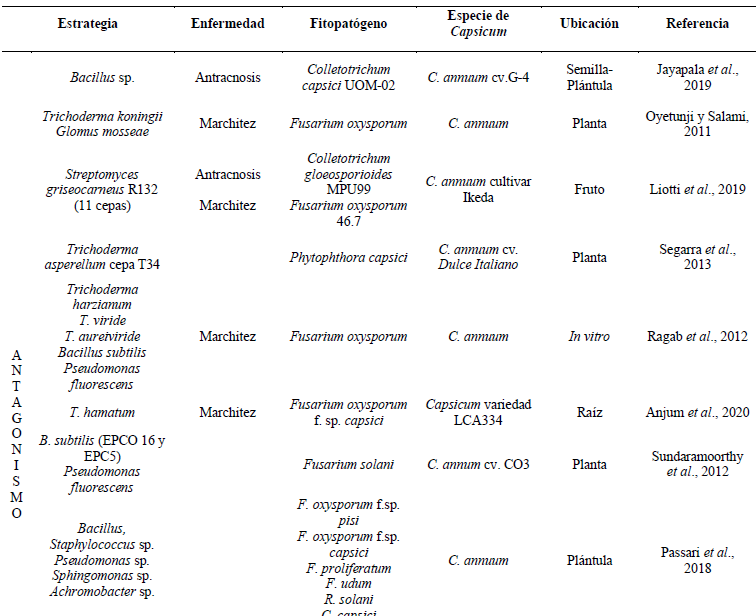
Cuadro 1. Estrategias agroecológicas para controlar principales patógenos causantes de enfermedades en plantas del género <em>Capsicum</em>.
Cuadro 1. Estrategias agroecológicas para controlar principales patógenos causantes de enfermedades en plantas del género Capsicum.
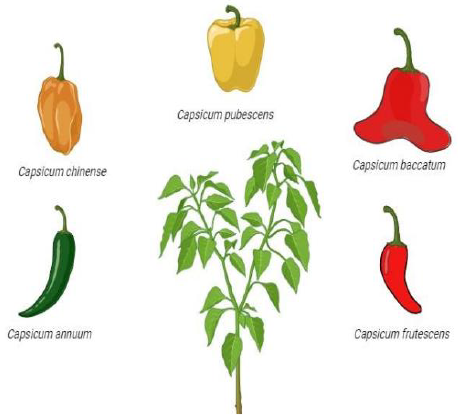
Figura 1. Fenotipos de frutos de las especies domesticadas de <em>Capsicum</em>.
Figura 1. Fenotipos de frutos de las especies domesticadas de Capsicum.
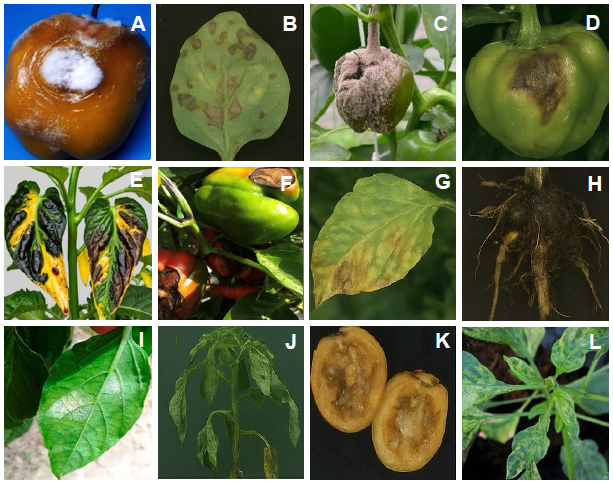
Figura 2. Sintomatología de enfermedades causadas por A) <em>Fusarium</em>, B) <em>Pythium</em>, C) <em>Botrytis</em>, D) <em>Phytophtora</em>, E) <em>Xanthomonas</em>, F) <em>Alternaria</em>, G) <em>Verticillium</em>, H) <em>Rhizoctonia</em>, I) <em>Leiveillula</em>, J) <em>Ralstonia</em>, K) <em>Erwinia</em> y L) TMV, en especies del género <em>Capsicum</em>.
Figura 2. Sintomatología de enfermedades causadas por A) Fusarium, B) Pythium, C) Botrytis, D) Phytophtora, E) Xanthomonas, F) Alternaria, G) Verticillium, H) Rhizoctonia, I) Leiveillula, J) Ralstonia, K) Erwinia y L) TMV, en especies del género Capsicum.
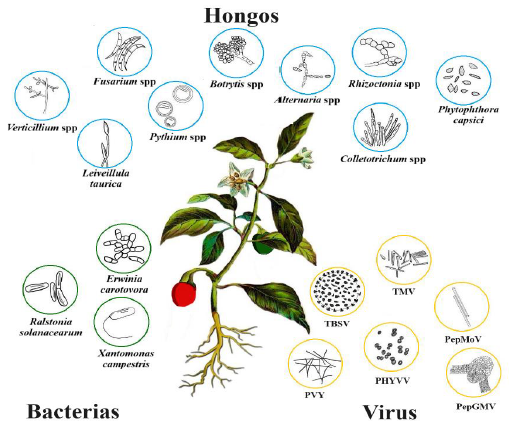
Figura 3. Principales patógenos causantes de enfermedades en cultivo de chile.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Efecto de enmiendas orgánicas en el control de Meloidogyne incognita y en las propiedades fisicoquímicas del suelo

PorMaría de Jesús Briseño López, Sergio Zamora Salgado, Gregorio Lucero Vega, Mirella Romero Bastidas*

Recibido: 30/noviembre/2024 – Publicado: 03/octubre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-29

Resumen Antecedentes/Objetivo. Las enmiendas orgánicas aplicadas en los sistemas agrícolas comúnmente proveen nutrientes a los cultivos. Sin embargo, son escasos los estudios sobre su respuesta diferencial simultánea en el control de Meloidogyne incognita y las características fisicoquímicas del suelo. En este estudio, se compararon tres enmiendas orgánicas (Vermicomposta, estiércol de vaca y abono verde de Neem) en el control del nematodo agallador y su influencia en las características edafológicas del suelo.

Materiales y Métodos. Suelo agrícola, previamente esterilizado y mezclado con las enmiendas orgánicas individualmente fue depositado en macetas plásticas de 4 L de capacidad. Un tratamiento con la mezcla de las tres enmiendas, un fertilizante sintético y el control agua fueron agregados y establecidos en un diseño de bloques completos al azar con 15 repeticiones. Cada maceta se inoculó con 500 juveniles de M. incognita, 20 días posteriores se analizaron los parámetros fisicoquímicos y a los 90 días se determinó la población del nematodo y el factor de reproducción.

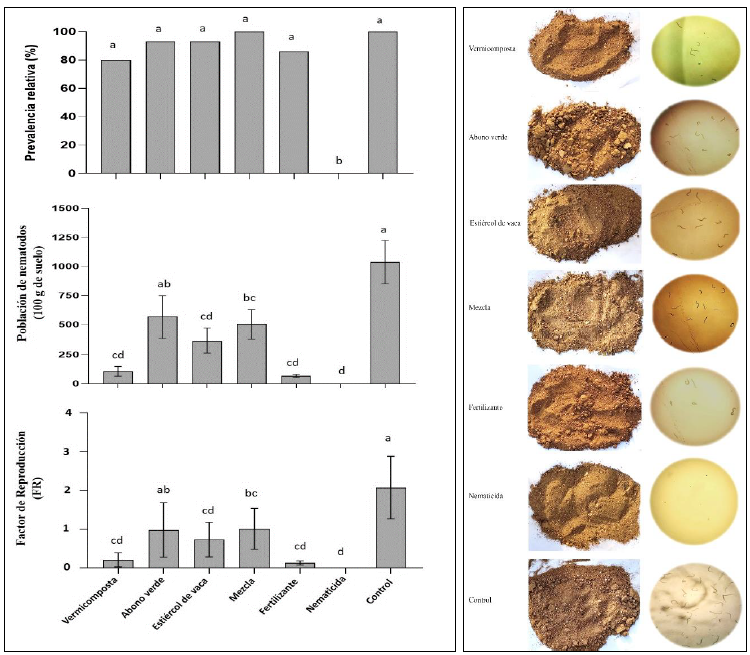
Resultados. La enmienda de vermicomposta influyó significativamente (P = 0.0001) en la población de M. incognita (≤ 80 %) respecto al control (100 %). Así como en las variables edafológicas, como la materia orgánica (1.11 %) comparado con el resto de los tratamientos (0.27 %).

Conclusión. La reducción eficiente de población de nematodos se registró principalmente en las enmiendas de vermicomposta (111 nematodos/g de suelo) y estiércol (505) respecto al control (1,037). Estos resultados proveen información importante sobre el impacto de las enmiendas, en el control de nematodos fitopatógenos y en las características del suelo.

Mostrar Figuras y/o Cuadros
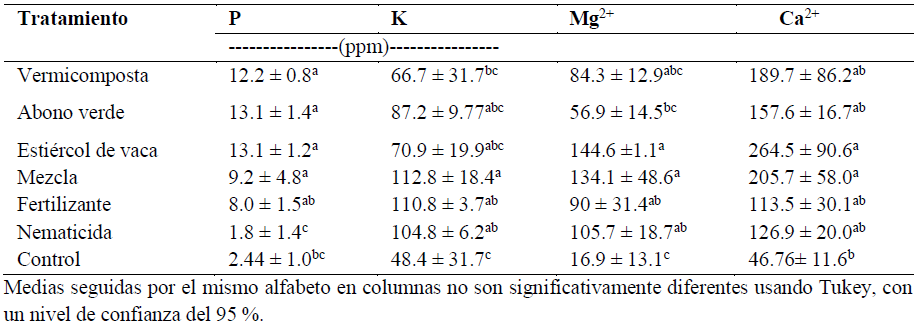
Cuadro 1. Comparación del contenido de Fósforo y Potasio total, y bases intercambiables en suelos tratados con enmiendas orgánicas.
Figura 1. Caracterización física del suelo con las diferentes enmiendas orgánicas. Las barras de error indican desviación estándar, diferentes letras en las barras indicaron diferencias significativas entre enmiendas para cada parámetro (Prueba de Tukey, p < 0.05).
Figura 2. Relación entre las enmiendas orgánicas evaluadas y la respuesta poblacional de <em>Meloidogyne incognita</em>. Alfabeto igual entre las medias indica que no hay diferencias significativas entre los tratamientos por Tukey con p<0.05.
Figura 2. Relación entre las enmiendas orgánicas evaluadas y la respuesta poblacional de Meloidogyne incognita. Alfabeto igual entre las medias indica que no hay diferencias significativas entre los tratamientos por Tukey con p<0.05.
  • Vol. 2025, 43(4)
  • Nota Fitopatológica
  • Número Especial

Efecto de tratamientos biológicos y déficit hídrico en la infección por Macrophomina phaseolina en sorgo

PorKarina Kuri Aguirre, Maribel Leal Castillo, Jesús Gerardo García Olivares, Sanjuana Hernández Delgado*

Recibido: 25/noviembre/2024 – Publicado: 25/septiembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-22

Resumen Antecedentes/Objetivo. Tamaulipas es el principal productor de sorgo (Sorghum bicolor) en México, pero sus rendimientos unitarios son afectados por factores bióticos y abióticos donde destaca Macrophomina phaseolina, cuyo control es parcialmente efectivo. En este trabajo se evaluó el efecto de tratamientos biológicos en el desarrollo de M. phaseolina en plántulas de sorgo cultivadas en invernadero en Reynosa, Tamaulipas.

Materiales y Métodos. Dos experimentos se establecieron bajo un arreglo factorial en parcelas subdivididas 2 x 2 x 5 donde las parcelas grandes fueron los híbridos Pioneer 8282 y RB Patrón; las parcelas medianas los niveles de humedad, riego y déficit hídrico; y las parcelas chicas los tratamientos biológicos: cepa T808 de Trichoderma koningiopsis, cepa AF36 de Aspergillus flavus; agente quelante de micotoxinas Kuali®; testigo inoculado con M. phaseolina y testigo absoluto.

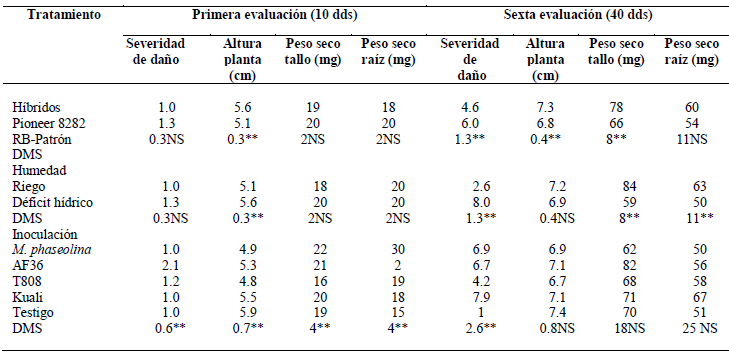
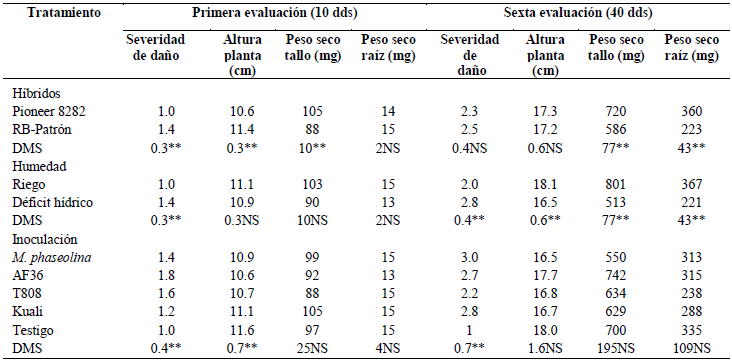
Resultados. El híbrido RB-Patrón mostró los mayores daños M. phaseolina y el menor crecimiento (altura de planta: 10 %) y acumulación de biomasa seca (entre 35-40 %). El déficit hídrico incrementó la infección por pudrición carbonosa y redujo el crecimiento del sorgo La cepa T808 de T. koningiopsis redujo la severidad de la pudrición carbonosa (valor del 4.6) mientras los otros tratamientos biológicos exhibieron valores de severidad mayores a 6.0.

Conclusión. Los tratamientos con mejor crecimiento del sorgo y menos daños por M. phaseolina (T808, P-8282) deberán evaluarse en condiciones de campo para confirmar la viabilidad de su aplicación en la producción comercial de sorgo en el norte de Tamaulipas.

Mostrar Figuras y/o Cuadros
Cuadro 1. Comparación de medias de los efectos principales para severidad de daño por <em>M. phaseolina</em>, altura de planta y acumulación de biomasa en sorgo. Primera y sexta evaluaciones en el experimento 1.
Cuadro 1. Comparación de medias de los efectos principales para severidad de daño por M. phaseolina, altura de planta y acumulación de biomasa en sorgo. Primera y sexta evaluaciones en el experimento 1.
Cuadro 2. Comparación de medias de los efectos principales para severidad de daño por <em>M. phaseolina</em>, altura de planta y acumulación de biomasa en sorgo. Primer y sexto evaluaciones en el experimento 2.
Cuadro 2. Comparación de medias de los efectos principales para severidad de daño por M. phaseolina, altura de planta y acumulación de biomasa en sorgo. Primer y sexto evaluaciones en el experimento 2.
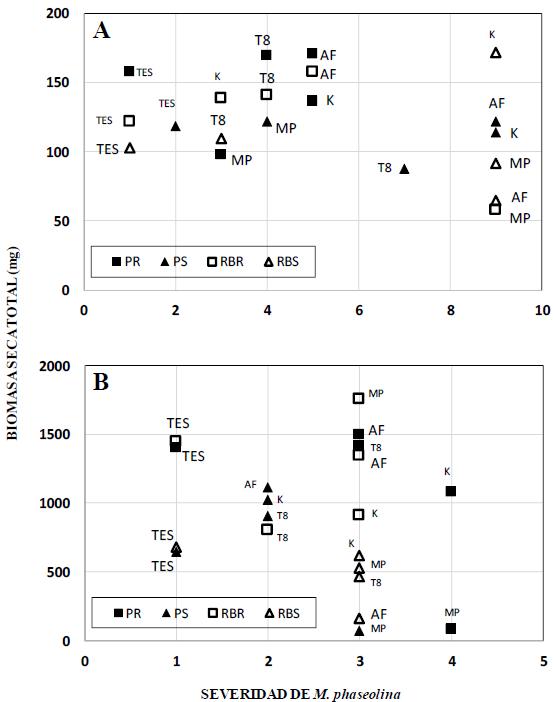
Figura 1. Relación entre la severidad de la pudrición carbonosa y la biomasa seca total acumulada en la sexta evaluación en sorgo cultivado en invernadero. (A) Experimento 1, (B) Experimento 2. PR=Pioneer 8282/Riego; PS=Pioneer 8282/Déficit hídrico; RBR=RB Patrón/Riego; RBS=RB Patrón/Déficit hídrico.
  • Vol. 2025, 43(4)
  • Nota Fitopatológica
  • Número Especial

Trichoderma afroharzianum y sustancias homeopáticas sobre el crecimiento in vitro de hongos asociados a enfermedades fungosas

PorMiguel Ángel Ruiz González, Miguel Ángel Serrato Cruz*, Roney Solano Vidal, Ernestina Valadez Moctezuma

Recibido: 19/noviembre/2024 – Publicado: 25/septiembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-11

Resumen Antecedentes/Objetivo. Trichoderma spp. es una alternativa sostenible, así como algunas sustancias homeopáticas que se perfilan como posibles insumos antifúngicos; lo que los hace soluciones potenciales para combatir y controlar enfermedades en cultivos de importancia económica. El objetivo del estudio fue evaluar el antagonismo de Trichoderma afroharzianum y sustancias homeopáticas contra cuatro hongos asociados a enfermedades de importancia hortícola.

Materiales y Métodos. Mediante técnica de cultivo dual se evaluó el antagonismo de T. afroharzianum contra Phytophthora capsici, Rhizoctonia solani, Botrytis cinerea y Fusarium oxysporum. Cada 24 h se estimó el porcentaje de inhibición con el crecimiento micelial y tipo de antagonismo. Las sustancias homeopáticas derivadas de aceite esencial de Tagetes remotiflora, Tagetes arenicola y Tagetes lucida se evaluaron con técnica de agar envenenado sobre todos los organismos. Se utilizó un diseño completamente al azar con cuatro repeticiones. Los datos fueron analizados con prueba de medias de Tukey (p ≤ 0.05).

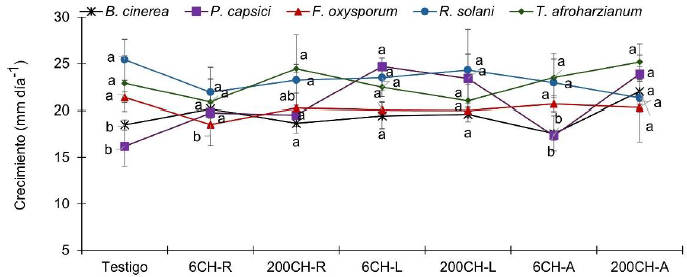
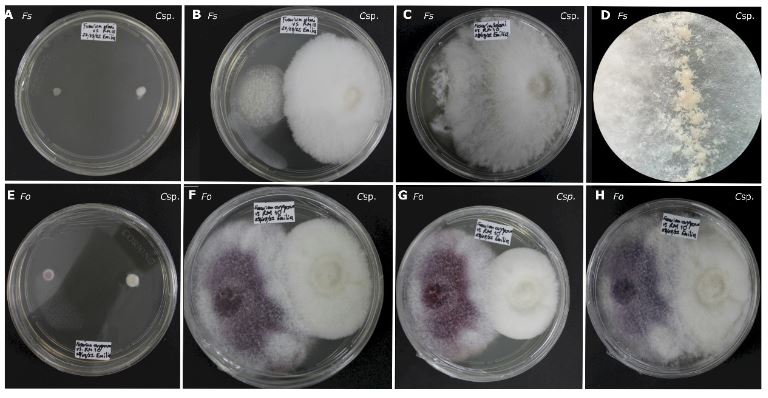
Resultados. T. afroharzianum inhibió más de 50 % a los hongos y en todos los casos detuvo su crecimiento. Solo en la interacción entre P. capsici y T. afroharzianum el antagonista creció sobre P. capsici y deformó las hifas. El aceite homeopático de T. remotiflora en la dinamización 6CH disminuyó el crecimiento de R. solani (21.95 vs 25.38 mm del testigo), F. oxysporum (18.52 vs 21.35 mm del testigo) y de T. afroharzianum (20.87 vs 22.86 mm del testigo), mientras que la dinamización 200CH de T. arenicola estimuló el crecimiento de T. afroharzianum (25.15 vs 22.86 mm del testigo), P. capsici (23.85 vs 16.18 mm del testigo) y de B. cinerea (25.98 vs 18.48 mm del testigo).

Conclusión. T. afroharzianum mostró capacidad para contrarrestar en mayor medida el crecimiento de P. capsici y B. cinerea. Las sustancias homeopáticas pueden tener aplicaciones como inhibidores y estimuladores de crecimiento micelial, se requiere de más investigación para orientar de una mejor manera sus aplicaciones.

Mostrar Figuras y/o Cuadros
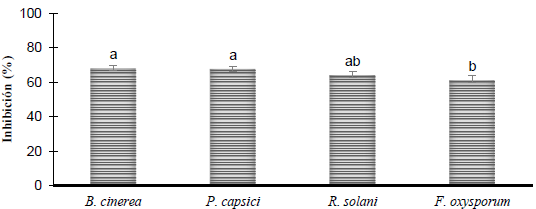
Figura 1. Inhibición del crecimiento micelial de <em>B. cinerea</em> (5 días), <em>P. capsici</em> (11 días), <em>R. solani</em> (8 días) y <em>F. oxysporum</em> (9 días) debido al efecto de <em>T. afroharzianum</em>, bajo condiciones <em>in vitro</em>. Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, <em>p</em>≤0.05).
Figura 1. Inhibición del crecimiento micelial de B. cinerea (5 días), P. capsici (11 días), R. solani (8 días) y F. oxysporum (9 días) debido al efecto de T. afroharzianum, bajo condiciones in vitro. Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, p≤0.05).
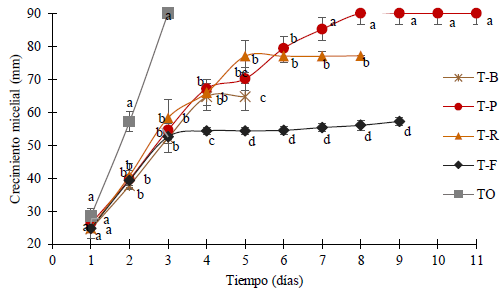
Figura 2. Crecimiento micelial <em>in vitro</em> (mm) de <em>T. afroharzianum</em> en cultivo dual contra <em>B. cinerea</em> (B), <em>R. solani</em>, (R), <em>P. capsici</em> (P) y <em>F. oxysporum</em> (F). TO: testigo, T: <em>T. afroharzianum</em>, Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, p≤0.05).
Figura 2. Crecimiento micelial in vitro (mm) de T. afroharzianum en cultivo dual contra B. cinerea (B), R. solani, (R), P. capsici (P) y F. oxysporum (F). TO: testigo, T: T. afroharzianum, Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, p≤0.05).
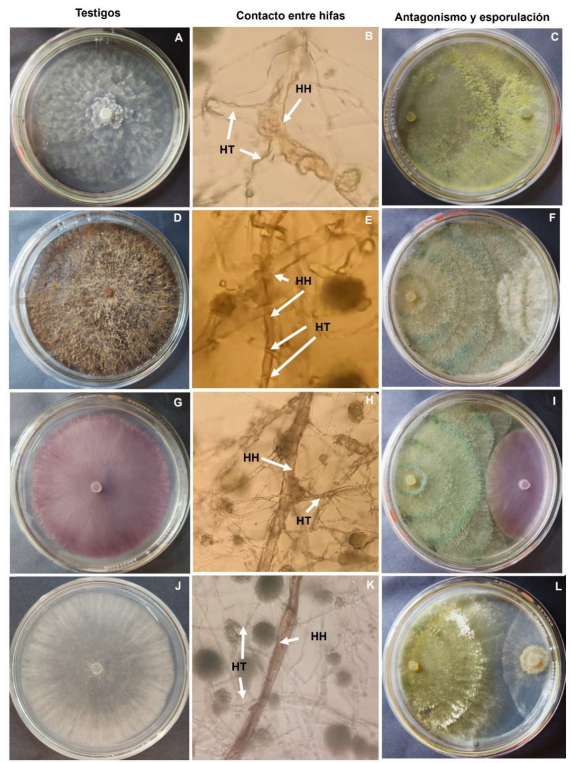
Figura 3. Crecimiento micelial (mm) individual de testigos: <em>P. capsici</em> (A), <em>R. solani</em> (D), <em>F. oxysporum</em> (G) y <em>B. cinerea</em> (J) y antagonismo en el cultivo dual al momento de contacto entre hifas (B, E, H, K) y esporulación luego que los testigos cubrieron la caja Petri (C, F, I, L). HH: hifas de hongos, HT: hifas de <em>T. afroharzianum</em>.
Figura 3. Crecimiento micelial (mm) individual de testigos: P. capsici (A), R. solani (D), F. oxysporum (G) y B. cinerea (J) y antagonismo en el cultivo dual al momento de contacto entre hifas (B, E, H, K) y esporulación luego que los testigos cubrieron la caja Petri (C, F, I, L). HH: hifas de hongos, HT: hifas de T. afroharzianum.
Figura 4. Dinámica de crecimiento fúngico por el efecto de sustancias homeopáticas en <em>B. cinerea</em>, <em>P. capsici</em>, <em>F. oxysporum</em>, <em>R. solani</em> y <em>T. afroharzianum</em>. CH: centesimal hahnemanniana, R: <em>T. remotiflora</em>, L: <em>T. lucida</em>, A: <em>T. arenicola</em>. Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, p≤0.05).
Figura 4. Dinámica de crecimiento fúngico por el efecto de sustancias homeopáticas en B. cinerea, P. capsici, F. oxysporum, R. solani y T. afroharzianum. CH: centesimal hahnemanniana, R: T. remotiflora, L: T. lucida, A: T. arenicola. Media ± desviación estándar (n=4) con diferentes letras son estadísticamente diferentes (Tukey, p≤0.05).
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Control microbiano de Meloidogyne incognita en Capsicum chinense bajo un sistema de producción orgánica

PorCitlally Guadalupe Puc Flores, Felicia Amalia Moo Koh, José M Tun Suárez, Eduardo Villanueva Couoh, Jairo Cristóbal Alejo*

Recibido: 23/noviembre/2024 – Publicado: 25/septiembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-33

Resumen Antecedentes/Objetivo. El cultivo de chile habanero (Capsicum chinense) es limitado por nematodos agalladores como Meloidogyne incognita, su control se realiza con la aplicación recurrente de nematicidas sintéticos. Una alternativa es con la aplicación de especies de agentes microbianos. El objetivo del estudio fue evaluar el control de M. incognita con especies nativas de Trichoderma spp. en C. chinense, en un sistema de producción orgánica.

Materiales y Métodos. Se utilizaron plántulas del cultivar Izamal de 45 días, y trasplantadas con sustrato a base de suelo, bocashi y rocas volcánicas (6:3:1), se aplicaron tres inoculaciones de cepas nativas de Trichoderma asperellum (Ta13-17), T. erinaceum (Te10-15) y su combinación; al momento del trasplante, ocho y 15 días posteriores, como tratamientos testigo: un nematicida (Vydate®) y agua. Se realizaron cuatro muestreos destructivos durante el ciclo del cultivo, y las variables fueron la severidad con el índice de agallamiento, número de huevos y hembras por g de raíz.

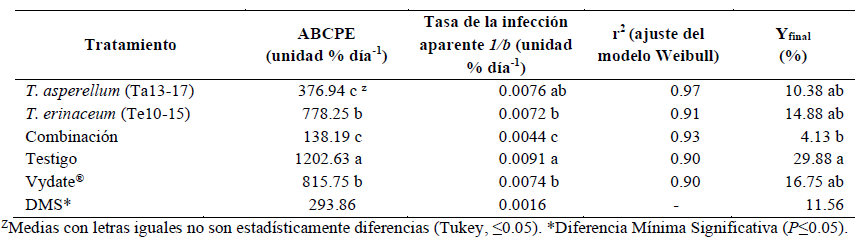
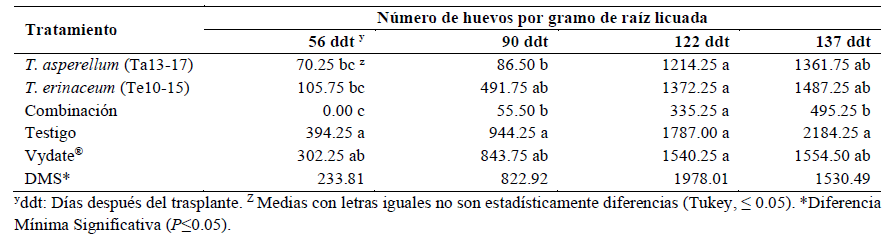
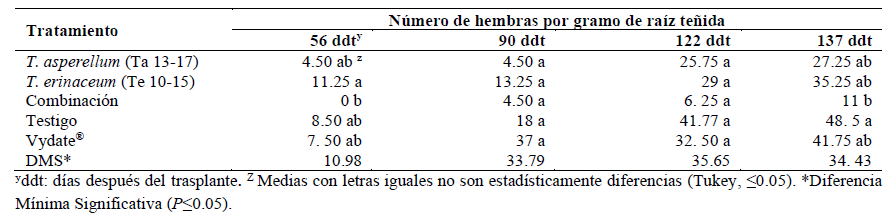
Resultados. En relación al testigo, la combinación de T. asperellum (Ta13-17) y T. erinaceum (Te10-15) causó significativamente menor severidad del nematodo estimado con el ABCPE. La tasa de infección aparente mediante el modelo Weibull (1/b) e índice de agallamiento final (4.13 %), también mostró, los menores promedios de reproducción del nematodo (número de huevos y hembras por g de raíz). Con la combinación de T. asperellum (Ta13-17) y T. erinaceum (Te10-15) se mejoró significativamente el rendimiento del cultivo en un 47.26 y un 34.25 % en relación al testigo y al Vydate®, respectivamente.

Conclusión. En un sistema de producción orgánico de chile habanero para el control de M. incognita; la aplicación individual de T. asperellum (Ta13-17) disminuyó de manera significativa el índice de agallamiento; sin embargo, cuando se combinó con T. erinaceum (Te 10-15) mejoró el control del nematodo (86.17 %.).

Mostrar Figuras y/o Cuadros
Cuadro 1. Efecto de tratamientos en el control de <em>M. incognita</em> estimado con parámetros epidemiológicos en el cultivo orgánico de <em>C. chinense</em>.
Cuadro 1. Efecto de tratamientos en el control de M. incognita estimado con parámetros epidemiológicos en el cultivo orgánico de C. chinense.
Cuadro 2. Efecto de tratamientos en número de huevos de <em>M. incognita</em> en el cultivo orgánico de <em>C. chinense</em>.
Cuadro 2. Efecto de tratamientos en número de huevos de M. incognita en el cultivo orgánico de C. chinense.
Cuadro 3. Efecto de tratamientos en el número de hembras de <em>M. incognita</em> en cultivo orgánico de <em>C. chinense</em>.
Cuadro 3. Efecto de tratamientos en el número de hembras de M. incognita en cultivo orgánico de C. chinense.
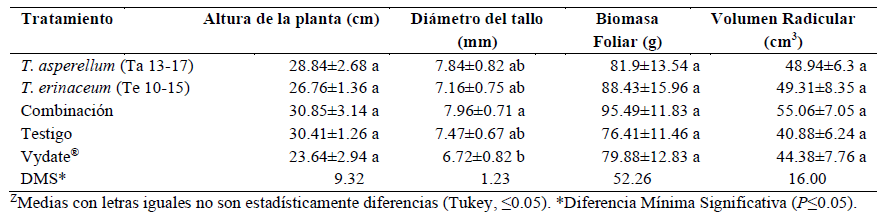
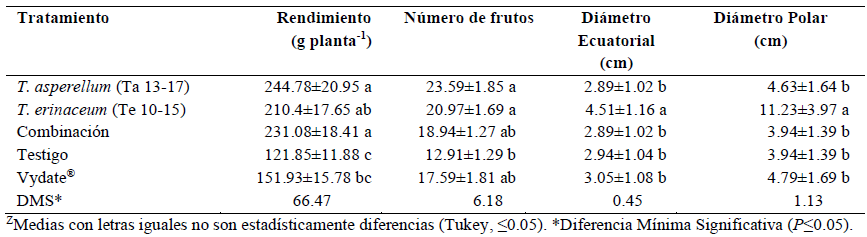
Cuadro 4. Efecto de tratamientos en el control de <em>M. incognita</em> en las variables agronómicas del cultivo orgánico de <em>C. chinense</em>.
Cuadro 4. Efecto de tratamientos en el control de M. incognita en las variables agronómicas del cultivo orgánico de C. chinense.
Cuadro 5. Efecto de tratamientos en el rendimiento de frutos en el cultivo de <em>C. chinense</em>.
Cuadro 5. Efecto de tratamientos en el rendimiento de frutos en el cultivo de C. chinense.
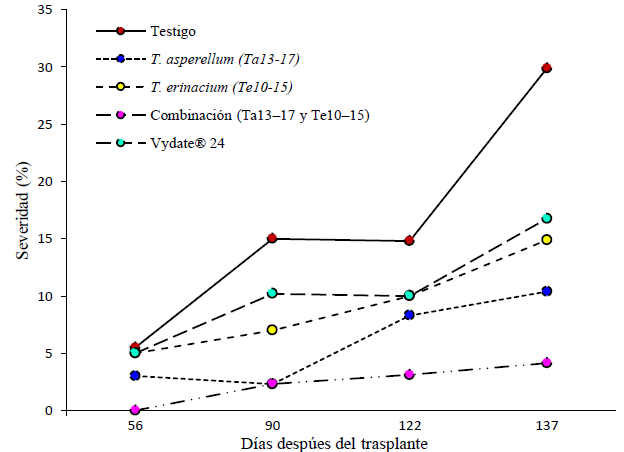
Figura 1. Curvas del progreso del índice de agallamiento en el cultivo orgánico de <em>C. chinense</em>, durante el período de 56, 90, 122 y 137 días después del trasplante.
Figura 1. Curvas del progreso del índice de agallamiento en el cultivo orgánico de C. chinense, durante el período de 56, 90, 122 y 137 días después del trasplante.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Evaluación del bacteriófago ΦXaF18 en formulación para el control de Xanthomonas euvesicatoria en plantas de chile bajo condiciones de campo

PorGabriel Ibarra Rivera, Evangelina Esmeralda Quiñones Aguilar, Guillermo Alejandro Solís Sánchez, Eristeo García Márquez, Gabriel Rincón Enríquez*

Recibido: 20/noviembre/2024 – Publicado: 08/septiembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-12

Resumen Antecedentes/Objetivo. Xanthomonas euvesicatoria (Xe) es el agente causal de la mancha bacteriana en el cultivo de chile, enfermedad que comúnmente se maneja con antibióticos agrícolas. Como alternativa biológica, los virus bacterianos (bacteriófagos) ofrecen un enfoque prometedor para el control de bacterias fitopatógenas. El objetivo de este estudio fue evaluar la efectividad biológica del bacteriófago ΦXaF18 formulado con protección para radiación UV (Fagolytic) para el control de Xe en plantas de chile bajo condiciones a cielo abierto y en parcelas de campo comercial.

Materiales y Métodos. Se realizó un diseño experimental en bloques o completamente al azar; se evaluaron cinco tratamientos en condiciones de cielo abierto y de campo: 1) Fagolytic, 2) Bacteriófago ΦXaF18 sin formular, 3) Formulación LS con el bacteriófago ΦXaF18, 4) Antibiótico agrícola Kasumin®, 5) Control sin tratamiento. Se midió el número de hojas con síntomas, número de manchas cloróticas y el índice de severidad con una escala ordinal de 6 niveles (0-5) y concentración viral en follaje. Los datos se analizaron estadísticamente con un análisis de varianza y una prueba Tukey o una prueba no paramétrica de Kruskal-Wallis (p ≤ 0.05).

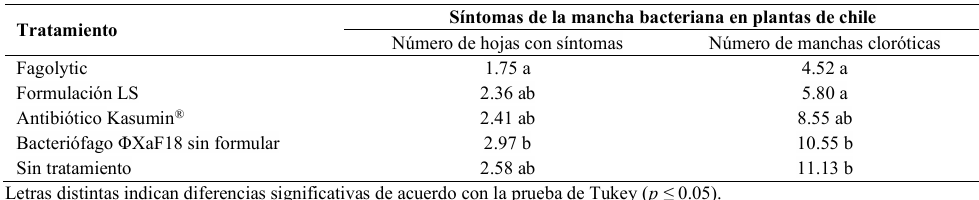
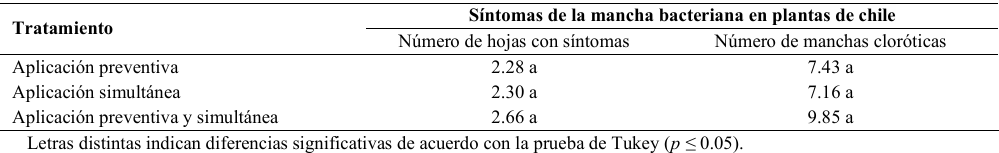
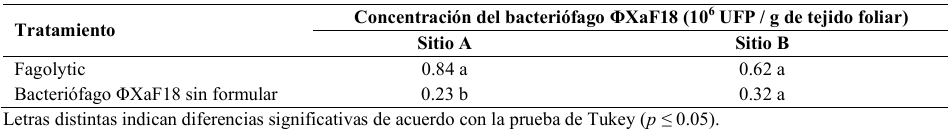
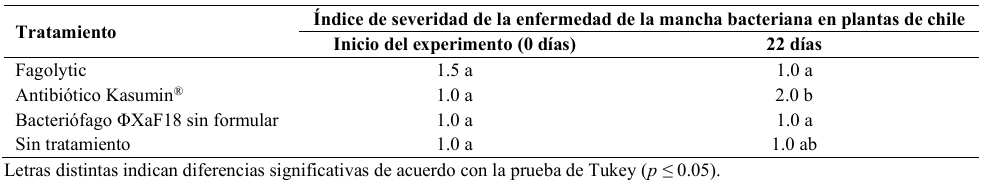
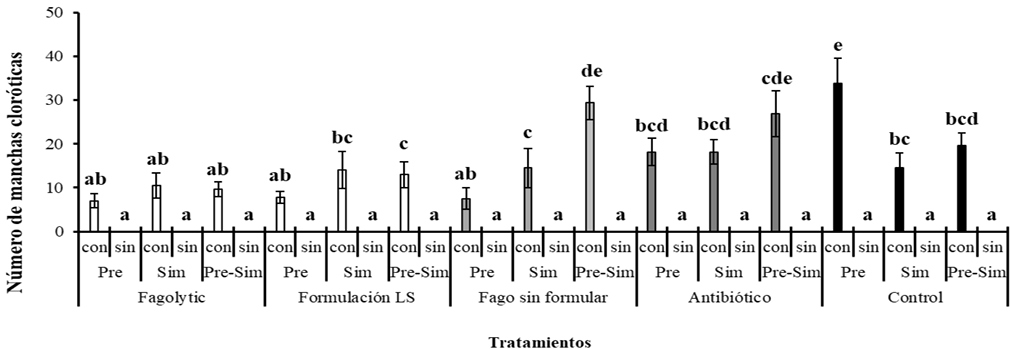
Resultados. Fagolytic redujo la severidad de la mancha bacteriana en un 32 % y las manchas cloróticas en un 57 % en comparación con el bacteriófago ΦXaF18 sin formular bajo condiciones de cielo abierto. En campo, Fagolytic disminuyó significativamente el índice de severidad en el sito B de la parcela experimental 1 (p ≤ 0.05), con una eficacia comparable al antibiótico Kasumin®. Además, en el sitio A, Fagolytic mostró una concentración viral de ΦXaF18 significativamente mayor sobre el follaje a las 48 h después de la aplicación de los tratamientos. Mientras que para el momento de aplicación (preventiva, simultánea o combinada) no tuvo efecto significativo sobre la severidad de la enfermedad.

Conclusión. Fagolytic demostró ser una alternativa biológica eficaz para el control de macha bacterianas (provocada por Xe) en plantas de chile, al reducir la severidad de la enfermedad y mantener su persistencia en el follaje, con resultados comparables al antibiótico Kasumin® tanto bajo condiciones a cielo abierto como en parcelas comerciales a nivel de campo.

Mostrar Figuras y/o Cuadros
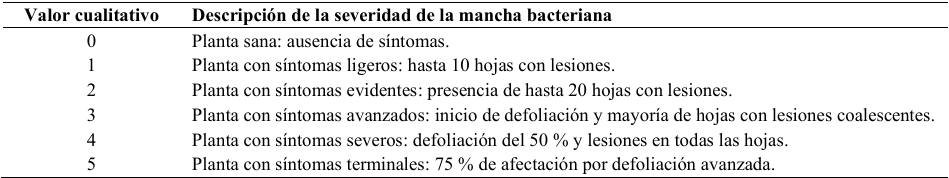
Cuadro 1. Descripción de la escala ordinal de severidad utilizada para evaluar la mancha bacteriana (<em>X. euvesicatoria</em>) en plantas de chile a nivel de parcelas comerciales en campo ubicadas en Mascota, Jalisco.
Cuadro 1. Descripción de la escala ordinal de severidad utilizada para evaluar la mancha bacteriana (X. euvesicatoria) en plantas de chile a nivel de parcelas comerciales en campo ubicadas en Mascota, Jalisco.
Cuadro 2. Efecto de tratamientos biológicos para el manejo de la mancha bacteriana en plantas de chile en condiciones de cielo abierto / invernadero.
Cuadro 3. Efecto del momento de aplicación de los tratamientos para el manejo de la mancha bacteriana en plantas de chile en condiciones de cielo abierto.
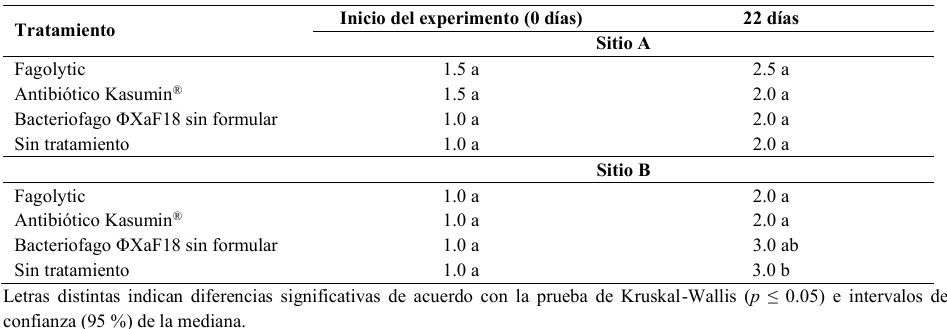
Cuadro 4. Evaluación de la severidad de mancha bacteriana en plantas de chile a los 0 y 22 días después de la aplicación de tratamientos para control de la enfermedad en la parcela comercial experimental 1 ubicada en Mascota, Jalisco.
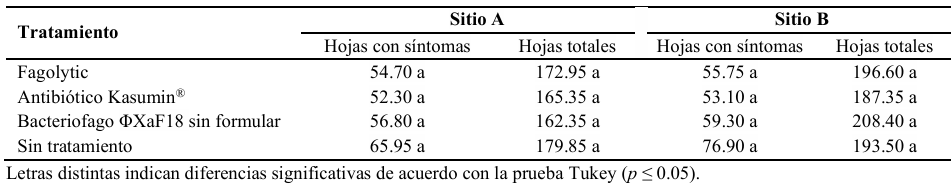
Cuadro 5. Efecto de los tratamientos para el manejo biológico de la mancha bacteriana en plantas de chile en la parcela comercial experimental 1 ubicada en Mascota, Jalisco.
Cuadro 6. Determinación de la concentración viral en el follaje de plantas de chile en los sitios A y B de la parcela experimental comercial 1, localizada en Mascota Jalisco, después de 48 h de la aplicación del tratamiento con los bacteriófagos ΦXaF18.
Cuadro 7. Evaluación de la severidad de mancha bacteriana en plantas de chile a los 0 y 22 días después de la aplicación de los tratamientos en la parcela experimental comercial 2 localizada en Mascota, Jalisco.
Figura 1. Efecto de los distintos tratamientos en el manejo de la mancha bacteriana en plantas de chile en condiciones de invernadero y cielo abierto. Letras distintas indican diferencias significativas de acuerdo con la prueba de Tukey (p ≤ 0.05). Las barras en cada rectángulo indican ± el error estándar. Con inoculo de Xe (con), sin inoculo de Xe (sin). Pre: Preventiva. Sim: Simultánea. Pre-Sim: Preventiva y Simultánea.
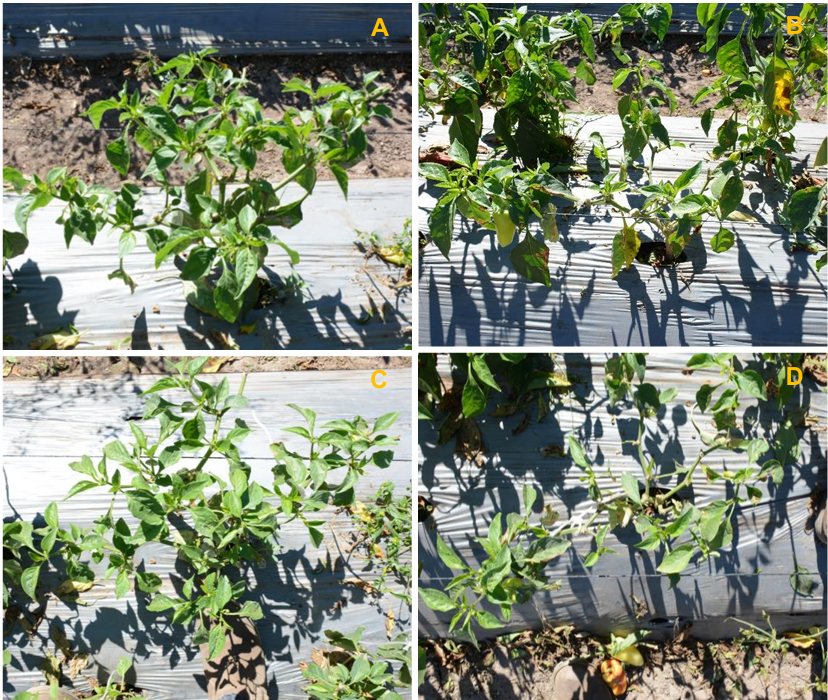
Figura 2. Comparación visual de la severidad de la mancha bacteriana en plantas de chile tratadas con Fagolytic (A y C) y el control sin tratamiento (B y D) a los 22 dias después del inicio del experimento, en la parcela experimental comercial 1 ubicada en Mascota, Jalisco.
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Sensibilidad de Sclerotium rolfsii, agente causal del tizón sureño del chile, a Trichoderma spp., extractos vegetales y fungicidas

PorJosé Francisco Díaz Nájera, José Terrones Salgado*, Sergio Ayvar Serna, Mateo Vargas Hernández, Maricela Apáez Barrios, José Luis Arispe Vázquez, José Francisco Adame Bores

Recibido: 19/marzo/2025 – Publicado: 31/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2209-1

Resumen Antecedentes/Objetivo. El chile (Capsicum annuum) se cultiva ampliamente en México. Es afectado por patógenos facultativos del suelo donde el hongo Sclerotium rolfsii puede ser crítico. Los objetivos de esta investigación fueron identificar cultural, morfológica, y molecularmente, al agente causal del tizón sureño del chile criollo de Guerrero y evaluar la antibiosis in vitro de Trichoderma spp., así como la sensibilidad del agente causal a fungicidas y extractos vegetales.

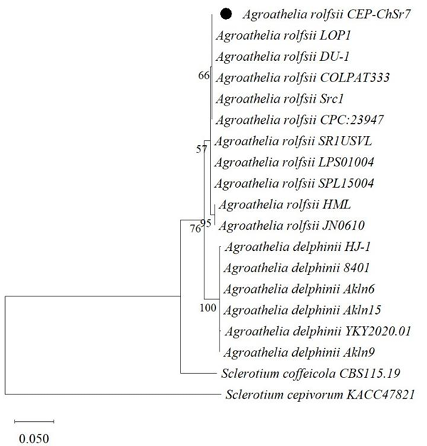
Materiales y Métodos. En el CEP-CSAEGRO se colectaron plantas de tres tipos criollos de chile con síntomas de tizón sureño a partir de las cuales se aislaron, purificaron y caracterizaron 20 aislamientos fúngicos. Se seleccionó un aislamiento para identificación molecular. Se extrajo el ADN con un kit comercial y mediante PCR se amplificó y posteriormente se secuenció la región espaciadora transcrita interna (ITS). Se editaron las secuencias y se realizó un análisis BLAST con la base de datos del NCBI. Para confirmar la patogenicidad se realizaron los postulados de Koch por duplicado en plántulas de chile criollo. Mediante un diseño experimental completamente al azar se evaluó la actividad antibiótica in vitro de Trichoderma spp. contra el agente causal, así como su sensibilidad in vitro a fungicidas y extractos vegetales.

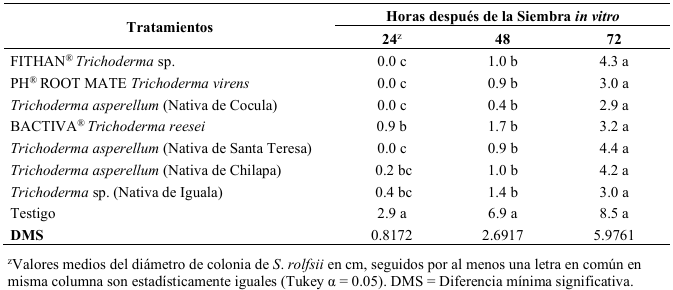
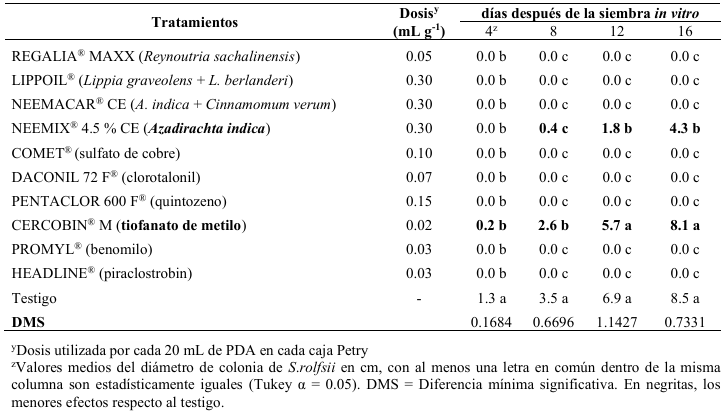
Resultados. La caracterización cultural, morfológica y molecular (PV569903, número de accesión NCBI) permitió identificar a Agroathelia rolfsii (S. rolfsii) como el agente causal del tizón sureño del chile criollo. En pruebas de patogenicidad se observaron síntomas idénticos a los identificados en campo. En ensayos de antibiosis, la inhibición micelial más alta de S. rolfsii se obtuvo con T. virens (65.18 %), Trichoderma sp. (65.18 %) y T. asperellum (66 %). En sensibilidad in vitro a fungicidas, la inhibición micelial completa (100 %) se obtuvo con sulfato de cobre, clorotalonil, quintozeno, benomilo y piraclostrobin. Extractos vegetales comerciales de Reynoutria sachalinensis, Lippia graveolens + L. berlanderi, y A. indica + Cinnamomum verum, inhibieron completamente el desarrollo micelial de S. rolfsii (100 %).

Conclusión. S. rolfsii es el patógeno que causa el tizón sureño en chile criollo en Guerrero. Trichoderma asperellum (nativo de Cocula), Trichoderma sp. (nativo de Iguala) y T. virens (PHC® ROOTMATE) inhibieron el crecimiento de S. rolfsii. así como algunos fungicidas comerciales y extractos vegetales. Estos se sugirieren como alternativas promisorias, previa validación in vivo en campo, para el manejo de este patógeno fúngico bajo un enfoque integrado sustentable.

Mostrar Figuras y/o Cuadros
Cuadro 1. Actividad antibiótica <em>in vitro</em> - PDA con siete productos/cepas de <em>Trichoderma</em> spp. contra <em>S. rolfsii</em> aislado de chile criollo de Guerrero (<em>Capsicum annuum</em>).
Cuadro 1. Actividad antibiótica in vitro - PDA con siete productos/cepas de Trichoderma spp. contra S. rolfsii aislado de chile criollo de Guerrero (Capsicum annuum).
Cuadro 2. Sensibilidad <em>in vitro</em> – PDA de <em>Sclerotium rolfsii</em>, aislado de chile criollo de Guerrero (<em>Capsicum annuum</em>), a fungicidas y extractos vegetales comerciales evaluados a intervalos de 4 días.
Cuadro 2. Sensibilidad in vitro – PDA de Sclerotium rolfsii, aislado de chile criollo de Guerrero (Capsicum annuum), a fungicidas y extractos vegetales comerciales evaluados a intervalos de 4 días.
Figura 1. Árbol filogenético construido con fines de diagnóstico a partir de secuencias de la región del espacio transcrito interno (ITS) de aislamientos de <em>Agroathelia</em> spp. del NCBI y el aislamiento encontrado en chile criollo en Guerrero CEP-ChSr7 (en circulo negro). Algoritmo máxima verosimilitud en MEGA 11, con Bootstrap a1000 simulaciones.
Figura 1. Árbol filogenético construido con fines de diagnóstico a partir de secuencias de la región del espacio transcrito interno (ITS) de aislamientos de Agroathelia spp. del NCBI y el aislamiento encontrado en chile criollo en Guerrero CEP-ChSr7 (en circulo negro). Algoritmo máxima verosimilitud en MEGA 11, con Bootstrap a1000 simulaciones.
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Primer reporte de muerte descendente en yaca (Artocarpus heterophyllus) causada por Lasiodiplodia theobromae en Nayarit, México

PorAntonio Betancourt Aranguré, Gregorio Luna Esquivel*, Graciela Guadalupe López Guzmán, Claudio Rios Velasco, Octavio Jhonathan Cambero Campos, Elia Cruz Crespo, Eliana Andrea Martínez Mera

Recibido: 11/marzo/2024 – Publicado: 31/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2403-3

Resumen Antecedentes/Objetivo. La yaca (Artocarpus heterophyllus) es una fruta de importancia económica para Nayarit ya que concentra más del 90 % del cultivo a nivel nacional. En últimos años se ha detectado una muerte de ramas terminales en árboles de yaca por lo que el objetivo fue de esta investigación fue identificar al agente causal de muerte descendente en ramas de A. heterophyllus en el estado de Nayarit, México.

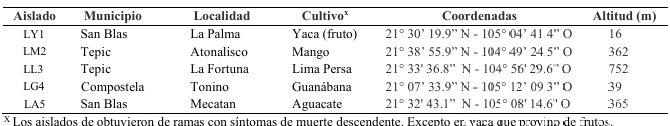
Materiales y Métodos. A partir de una colección de cepas de Lasiodiplodia theobromae provenientes de Nayarit de huertos comerciales de yaca, mango (Mangifera indica), guanábana (Annona muricata), aguacate (Persea americana), y lima persa (Citrus latifolia) se evaluó la patogenicidad de L. theobromae, en árboles de yaca de un año. Los aislados se identificaron molecularmente por secuenciación de las regiones del espaciador de transcrito interno (cebadores ITS5 y ITS4) y del factor de elongación de traducción 1 alfa (TEF1; cebadores EF-728/EF-986).

Resultados. Todos los aislados fueron patogénicos en yaca. LY1 y LG4, provenientes de frutos de yaca y guanábana, respectivamente mostraron alta agresividad en ramas. Los síntomas de muerte descendente se evidenciaron dos meses post-inoculación con pudrición de ápices, lesiones necróticas internas y fisuras de corteza en ramas y tallos, así como muerte del árbol. Las secuencias ITS y EF1-α de los aislados recuperados de las pruebas de patogenicidad mostraron 99 a 100 % de similitud con secuencias publicadas previamente publicadas en el Gen Bank para L. theobromae.

Conclusión. Este es primer reporte de L. theobromae como agente causal de muerte descendente de yaca A. heterophyllus en Nayarit, México.

Mostrar Figuras y/o Cuadros
Cuadro 1. Localización y fuente botánica de aislados de <em>Lasiodiplodia theobromae</em> empleados en pruebas de patogenicidad para determinar la implicación etiológica en muerte descendente de ramas de yaca (<em>Artocarpus heterophyllus</em>).
Cuadro 1. Localización y fuente botánica de aislados de Lasiodiplodia theobromae empleados en pruebas de patogenicidad para determinar la implicación etiológica en muerte descendente de ramas de yaca (Artocarpus heterophyllus).
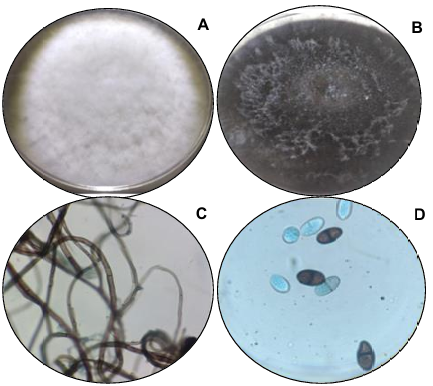
Figura 1. A. Cultivo de <em>Lasiodiplodia</em> a 3 día en PDA. B. Cultivo de <em>Lasiodiplodia</em> después de 7 en PDA. C. Hifas café marrón septadas vista en microscopio compuesto a 40X. D. Conidios característicos bicelulares obscuros a la maduración en microscopio compuesto a 40X.
Figura 1. A. Cultivo de Lasiodiplodia a 3 día en PDA. B. Cultivo de Lasiodiplodia después de 7 en PDA. C. Hifas café marrón septadas vista en microscopio compuesto a 40X. D. Conidios característicos bicelulares obscuros a la maduración en microscopio compuesto a 40X.
  • Vol. 2025, 43(3)
  • Nota Fitopatológica

Diversidad de bacterias endófitas en plantas de fresa (Fragaria sp.) en Sinaloa

PorRosa M Longoria Espinoza*, Rubén Félix Gastélum, Dulce R Hernández Luna

Recibido: 09/agosto/2024 – Publicado: 30/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2408-2

Resumen Antecedentes/Objetivo. Actualmente, los sistemas agrícolas requieren estrategias de manejo basadas en la sustentabilidad del cultivo. Las bacterias promotoras de crecimiento vegetal son una opción ecológica para disminuir la aplicación de productos químicos en la agricultura y favorecer prácticas agrícolas sostenibles. El objetivo de esta investigación fue aislar e identificar bacterias endófitas en plantas de fresa cultivadas (Fragaria x ananassa) en condiciones orgánicas y evaluar in vitro su capacidad para producir metabolitos relacionados con promoción de crecimiento vegetal.

Materiales y Métodos. Se colectaron 25 plantas de fresa, con aspecto sano, de la variedad Chanler en el ciclo otoño-invierno 2023-2024. A partir de muestras compuestas de tejido de raíz, tallo y hoja, se aisló el ADN genómico y amplificó el gen 16S ADNr.

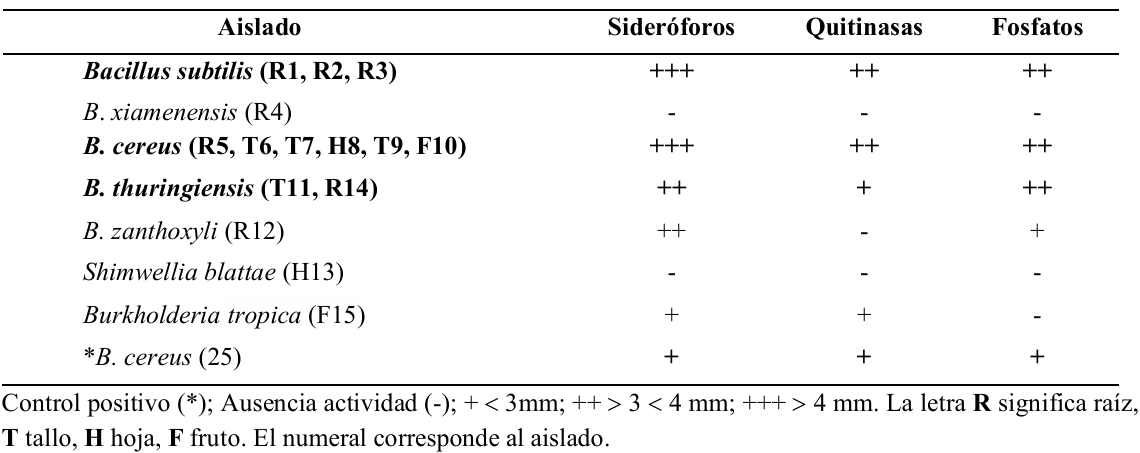
Resultados. El análisis de secuencias genómicas permitió identificar géneros bacterianos asociados al phylum Firmicutes predominando el género Bacillus con las especies B. cereus; B. subtilis, B. thuringiensis, B. xiamenensis, y B. zanthoxyli. En menor proporción se detectó a Shimwellia blattae y Burkholderia tropica. De estos aislados, B. cereus, B. subtilis, y B. thuringiensis, en ese orden, mostraron capacidad de producir sideróforos, quitinasa y solubilizar fósforo in vitro.

Conclusión. B. cereus, B. subtilis, y B. thuringiensis exhibieron in vitro características metabólicas relacionadas con promoción de crecimiento vegetal. Estos resultados muestran que existe una diversidad de bacterias endófitas en fresa comercial. Se aporta información para el entendimiento de la interacción bacteria endófita-planta en el entorno específico del cultivo de fresa en el norte del estado de Sinaloa.

Mostrar Figuras y/o Cuadros
Cuadro 1. Actividad cualitativa de producción de sideróforos, quitinasas y fosfatosde <em>in vitro</em> de seis especies de bacterias endófitas aisladas de plantas de fresa variedad Chanler establecidas bajo producción orgánica. Municipio de Ahome, Sinaloa, México.
Cuadro 1. Actividad cualitativa de producción de sideróforos, quitinasas y fosfatosde in vitro de seis especies de bacterias endófitas aisladas de plantas de fresa variedad Chanler establecidas bajo producción orgánica. Municipio de Ahome, Sinaloa, México.
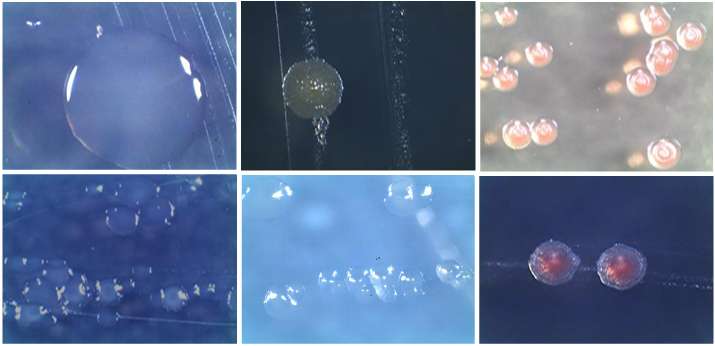
Figura 1. Morfología colonial <em>in vitro</em> de bacterias endófitas aisladas de raíz, tallo, hojas y fruto de plantas de fresa (<em>Fragaria</em> x <em>ananassa</em>) cv Chanler, visualizadas en estereoscopio digital a 48 h de crecimiento en Agar nutritivo. Notar diferente morfología: bordes lisos, traslúcidos, forma circular, superficie brillosa, coloración.
Figura 1. Morfología colonial in vitro de bacterias endófitas aisladas de raíz, tallo, hojas y fruto de plantas de fresa (Fragaria x ananassa) cv Chanler, visualizadas en estereoscopio digital a 48 h de crecimiento en Agar nutritivo. Notar diferente morfología: bordes lisos, traslúcidos, forma circular, superficie brillosa, coloración.
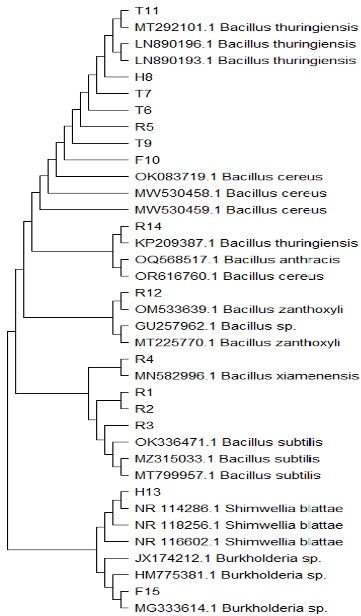
Figura 2. Dendograma obtenido con al algoritmo <em>Neighbor</em>-<em>Joining</em> a partir de secuencias del gen que codifica la subunidad 16S del ADNr obtenidas de bacterias endófitas aisladas de plantas de fresa (<em>Fragaria</em> x <em>ananassa</em>), variedad Chanler, de cultivos comerciales orgánicos. Municipio de Ahome, Sinaloa, México. Los aislados obtenidos en esta investigación se identifican con siglas y numeral: R-n: raíz, T-n: tallo; H-n: hoja y F-n: fruto.
Figura 2. Dendograma obtenido con al algoritmo Neighbor-Joining a partir de secuencias del gen que codifica la subunidad 16S del ADNr obtenidas de bacterias endófitas aisladas de plantas de fresa (Fragaria x ananassa), variedad Chanler, de cultivos comerciales orgánicos. Municipio de Ahome, Sinaloa, México. Los aislados obtenidos en esta investigación se identifican con siglas y numeral: R-n: raíz, T-n: tallo; H-n: hoja y F-n: fruto.
  • Vol. 2025, 43(3)
  • Artículo Científico

Caracterización de Sclerotium rolfsii y especies de Trichoderma en cultivos comerciales de papa en Sonora y Sinaloa, México

PorMaría Belén Irazoqui Acosta, Rubén Felix Gastelum*, Karla Yeriana Leyva Madrigal, Rosa Maria Longoria Espinoza, Gabriel Herrera Rodríguez, Sara Elodia Armenta López

Recibido: 09/agosto/2024 – Publicado: 28/agosto/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2408-1

Resumen Antecedentes/Objetivo. Sclerotium rolfsii causa pérdidas en la producción de papa (Solanum tuberosum) de hasta 20 % en los estados de Sonora y Sinaloa. No existen estudios sustentados con el método científico sobre la identificación del hongo, ni de las especies de Trichoderma presentes en suelo con potencial para control de S. rolfsii. Los objetivos del presente estudio fueron: a) Obtener aislados de S. rolfsii de predios de papa de Sonora y Sinaloa, y determinar la densidad poblacional de esclerocios del hongo; b) Aislar, cuantificar la densidad poblacional e identificar morfológica y molecularmente aislados de Trichoderma spp., en los mismos suelos con el fin de emplearlos en estudios subsiguientes para el control y d) Determinar la patogenicidad de S. rolfsii en tubérculos de papa en condiciones de laboratorio.

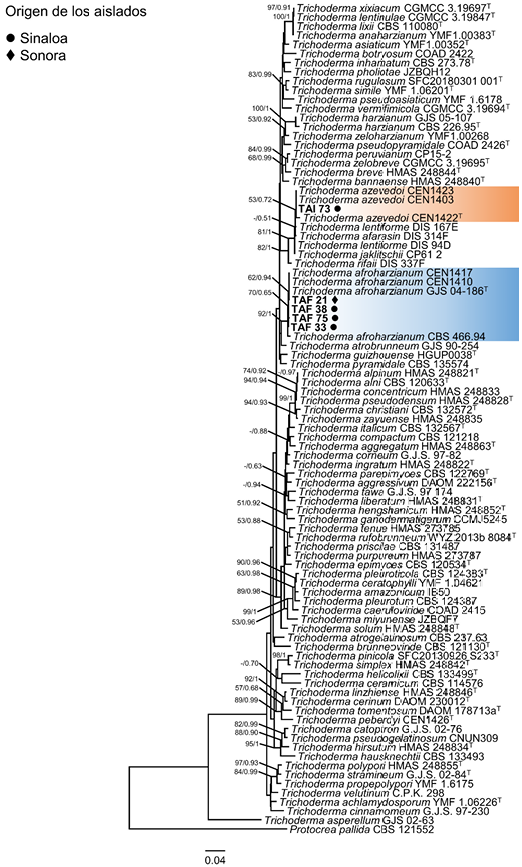
Materiales y Métodos. Los aislados se recolectaron en 239 predios comerciales de papa en Sonora y Sinaloa. La densidad poblacional se determinó por conteo de esclerocios de S. rolfsii y las Unidades Formadoras de Colonias (UFC g-1) de Trichoderma. La identificación se realizó mediante estudios morfométricos y moleculares a través de PCR, secuenciación y análisis filogenético del Espaciador Transcrito Interno (ITS) de S. rolfsii y la subunidad de ARN polimerasa II (RPB2) de Trichoderma spp. La patogenicidad de S. rolfsii se determinó en tubérculos de papa var. Fianna.

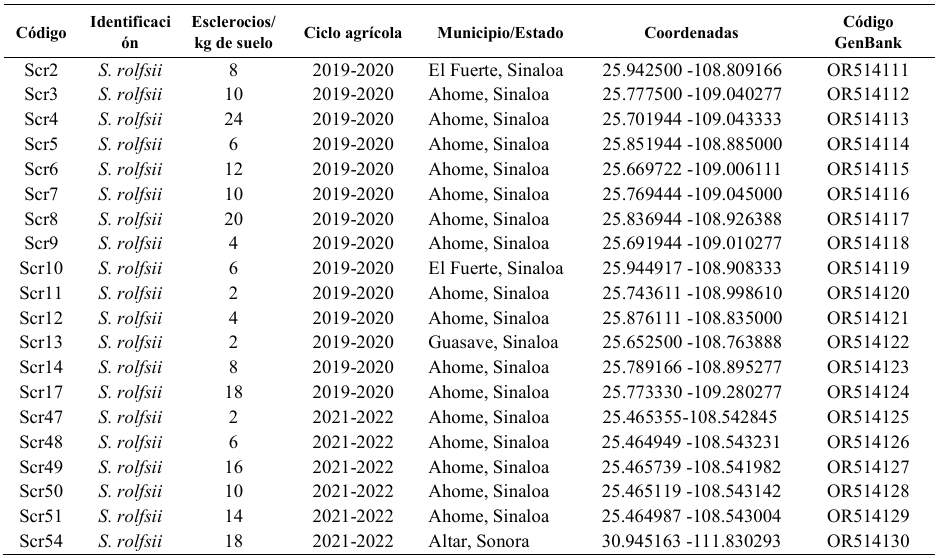
Resultados. Se identificaron 20 aislados de S. rolfsii cuya densidad poblacional varió de 2 a 24 esclerocios kg-1 de suelo. Por otro lado, se identificaron 26 aislados de Trichoderma spp., de los cuales 16 correspondieron a T. asperellum, cinco a T. asperelloides, cuatro a T. afroharzianum y uno a T. azevedoi con densidad poblacional de 2 a 8 UFC g-1 de suelo. Los aislados de S. rolfsii resultaron patogénicos en tubérculos de papa var. Fianna, con diferentes grados de agresividad.

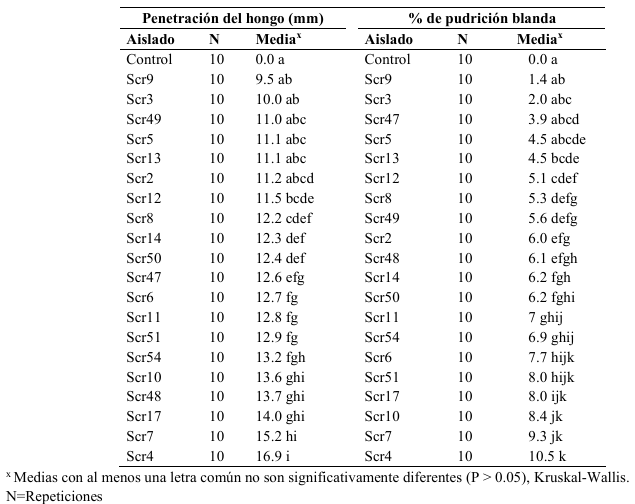
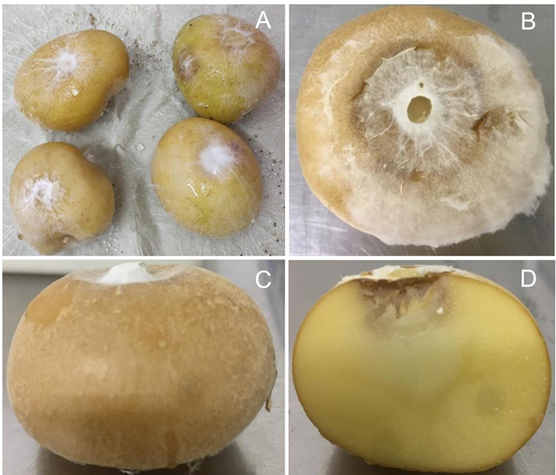
Conclusión. Se demostró la presencia de Sclerotium rolfsii en 8.4 % de los 239 predios de papa muestreados en Sonora y Sinaloa durante los ciclos 2019-2022, con densidades de 2 a 24 esclerocios kg-1 de suelo. La confirmación del patógeno mediante métodos convencionales y moleculares, así como su capacidad para inducir pudrición blanda en tubérculos var. Fianna, evidencia su impacto potencial productivo. La agresividad de los aislados fue variable, destacando el aislado Scr4, con penetración de hasta 16.9 mm y 10.5 % de pudrición. Paralelamente, se identificaron 26 aislados de Trichoderma spp. en 10.9 % de los predios, con densidades de 2 a 8 UFC g-1 de suelo. T. asperellum en Sinaloa y T. asperilloides en Sonora fueron los más prevalentes. Estos hallazgos subrayan la importancia de incorporar estrategias sustentables de manejo, considerando tanto la variabilidad del patogénica como la posible aplicación de antagonistas nativos. Además, resaltan la necesidad de investigar la dinámica del patógeno y las prácticas agrícolas que minimicen su prevalencia y carga de inóculo regional.

Mostrar Figuras y/o Cuadros
Cuadro 1. Identificación, densidad poblacional y origen de colecta 20 aislados de <em>S. rolfsii</em> obtenidos de suelo de 20 predios comerciales de papa (<em>S. tuberosum</em>) de un total 239 predios muestreados en Sonora y Sinaloa.
Cuadro 1. Identificación, densidad poblacional y origen de colecta 20 aislados de S. rolfsii obtenidos de suelo de 20 predios comerciales de papa (S. tuberosum) de un total 239 predios muestreados en Sonora y Sinaloa.
Cuadro 2. Identificación, densidad poblacional y origen de colecta de 26 aislados de <em>Trichoderma</em> obtenidos de suelos de predios comerciales de papa (<em>S. tuberosum</em>) en Sonora y Sinaloa.
Cuadro 2. Identificación, densidad poblacional y origen de colecta de 26 aislados de Trichoderma obtenidos de suelos de predios comerciales de papa (S. tuberosum) en Sonora y Sinaloa.
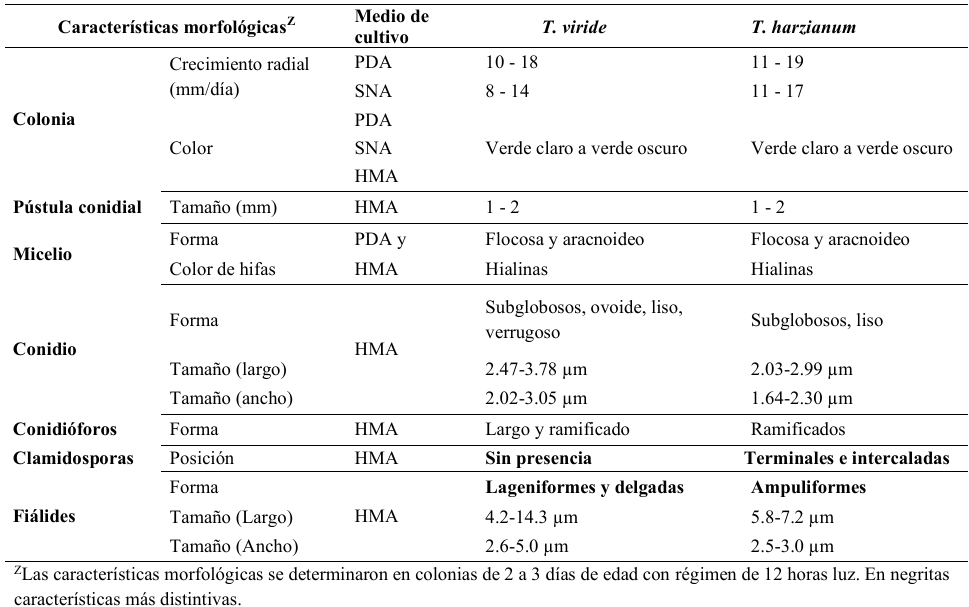
Cuadro 3. Características morfológicas de aislados de los complejos de especies <em>Trichoderma viride</em> y <em>Trichoderma harzianum</em> en tres medios de cultivo.
Cuadro 3. Características morfológicas de aislados de los complejos de especies Trichoderma viride y Trichoderma harzianum en tres medios de cultivo.
Cuadro 4. Penetración de <em>Sclerotium rolfsii</em> y porcentaje de pudrición blanda en tubérculos de papa variedad Fianna con inoculación artificial de discos 5mm/PDA-hongo.
Cuadro 4. Penetración de Sclerotium rolfsii y porcentaje de pudrición blanda en tubérculos de papa variedad Fianna con inoculación artificial de discos 5mm/PDA-hongo.
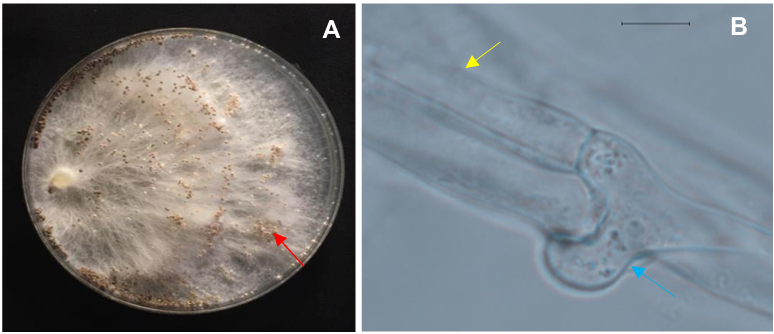
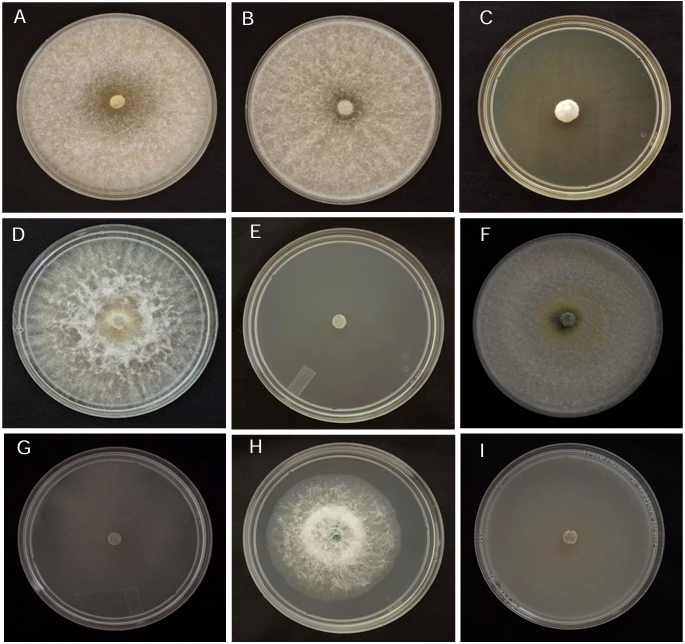
Figura 1. Características morfológicas de <em>Sclerotium rolfsii</em> (Scr17). (A) Morfología colonial en medio PDA, y esclerocios (flecha roja); (B) Hifa hialina (flecha amarilla) y fíbulas en septo (flecha azul) (100<sub>x</sub>). Escala: (B = 50 µm).
Figura 1. Características morfológicas de Sclerotium rolfsii (Scr17). (A) Morfología colonial en medio PDA, y esclerocios (flecha roja); (B) Hifa hialina (flecha amarilla) y fíbulas en septo (flecha azul) (100x). Escala: (B = 50 µm).
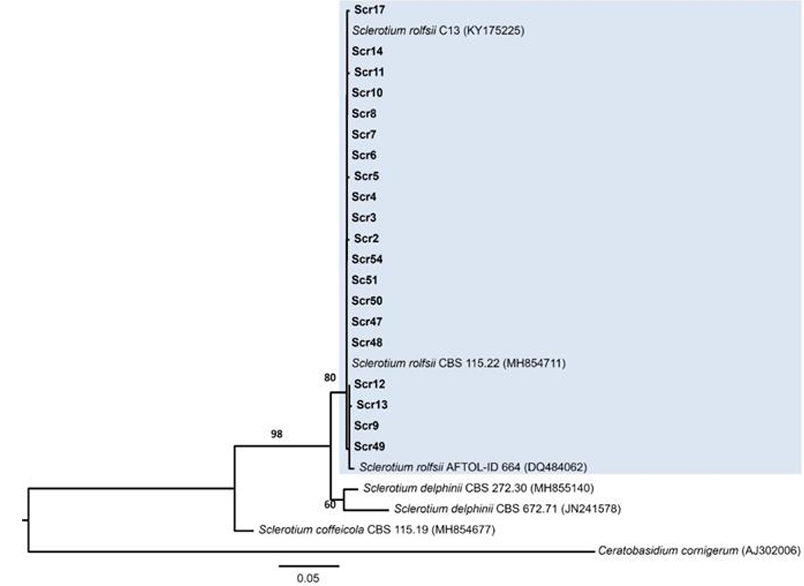
Figura 2. Análisis filogenético de aislados de <em>Sclerotium rolfsii</em> de Sonora y Sinaloa (Cuadro 1). Árbol de máxima verosimilitud basado en el Espaciador Transcrito Interno (ITS) de 20 aislados de <em>S. rolfsii</em>. Los aislados caracterizados en este estudio aparecen en negritas. Los valores bootstrap mayores a 50 se muestran como porcentajes. La barra de escala indica el número esperado de sustituciones de nucleótidos.
Figura 2. Análisis filogenético de aislados de Sclerotium rolfsii de Sonora y Sinaloa (Cuadro 1). Árbol de máxima verosimilitud basado en el Espaciador Transcrito Interno (ITS) de 20 aislados de S. rolfsii. Los aislados caracterizados en este estudio aparecen en negritas. Los valores bootstrap mayores a 50 se muestran como porcentajes. La barra de escala indica el número esperado de sustituciones de nucleótidos.
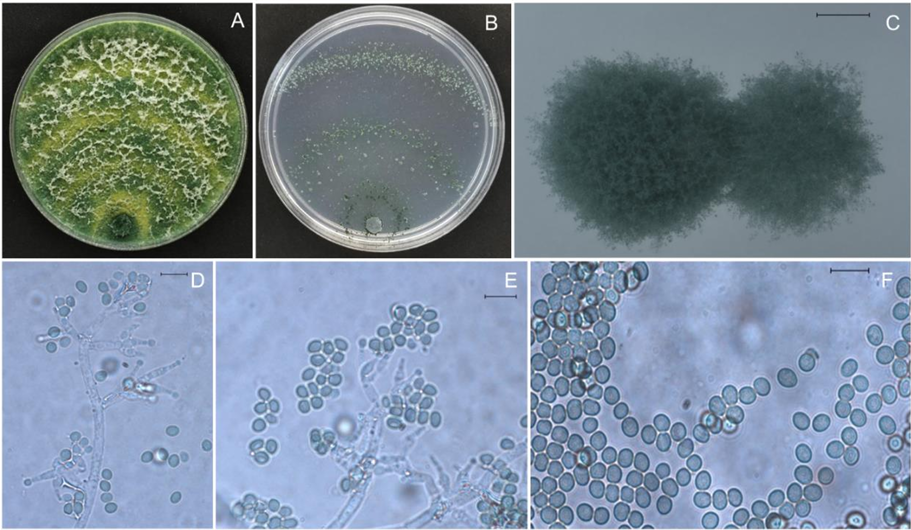
Figura 3. Morfología colonial y microscópica de <em>T. asperelloides</em> (TES19). (A) colonia en medio de cultivo PDA. (B) colonia en medio de cultivo SNA. (C) pústulas conidiales. (D y E) conidióforos y (F) conidios (100x). (C-F) en medio HMA. Escala: (C= 2 mm) (D= 10 µm) (E y F= 5 µm). Especie del complejo <em>T. viride</em>.
Figura 3. Morfología colonial y microscópica de T. asperelloides (TES19). (A) colonia en medio de cultivo PDA. (B) colonia en medio de cultivo SNA. (C) pústulas conidiales. (D y E) conidióforos y (F) conidios (100x). (C-F) en medio HMA. Escala: (C= 2 mm) (D= 10 µm) (E y F= 5 µm). Especie del complejo T. viride.
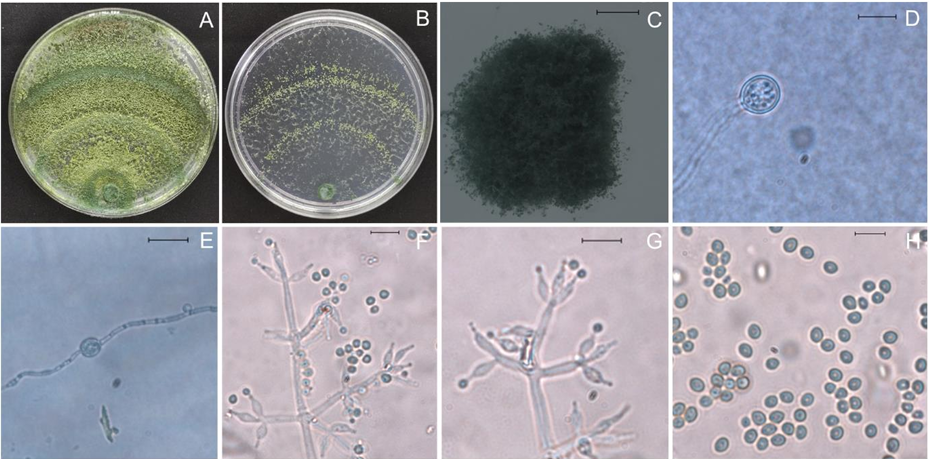
Figura 4. Morfología colonial y microscópica de <em>Trichoderma afroharzianum</em> (TAF33). (A) colonia en medio de cultivo PDA. (B) colonia en medio de cultivo SNA. (C) pústulas conidiales. (D y E) clamidosporas y (F y G) conidióforos (H) conidios (100x). (C-H) en medio HMA. Escala: (C= 2 mm) (D y H= 5 µm) (E, F y G= 10 µm). Especie del complejo <em>T. harzianum</em>.
Figura 4. Morfología colonial y microscópica de Trichoderma afroharzianum (TAF33). (A) colonia en medio de cultivo PDA. (B) colonia en medio de cultivo SNA. (C) pústulas conidiales. (D y E) clamidosporas y (F y G) conidióforos (H) conidios (100x). (C-H) en medio HMA. Escala: (C= 2 mm) (D y H= 5 µm) (E, F y G= 10 µm). Especie del complejo T. harzianum.
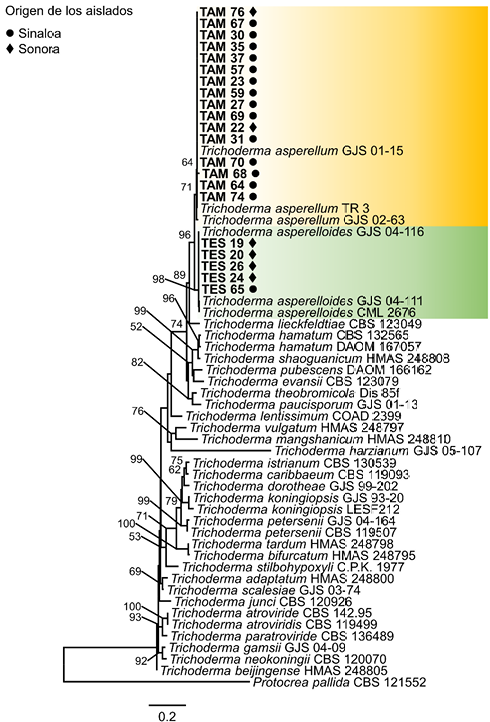
Figura 5. Filograma de Máxima Verosimilitud del complejo de especies <em>Trichoderma viride</em>, basado en la subunidad de ARN polimerasa II (RPB2). Los 21 aislados de <em>Trichoderma</em>, obtenidos de predios comerciales de papa de Sonora y Sinaloa, caracterizados en este estudio (Cuadro 2), aparecen en negrita. Los valores bootstrap >50 y de probabilidad posterior >0.5 se muestran en los nodos. La barra de escala indica el número esperado de sustituciones de nucleótidos.
Figura 5. Filograma de Máxima Verosimilitud del complejo de especies Trichoderma viride, basado en la subunidad de ARN polimerasa II (RPB2). Los 21 aislados de Trichoderma, obtenidos de predios comerciales de papa de Sonora y Sinaloa, caracterizados en este estudio (Cuadro 2), aparecen en negrita. Los valores bootstrap >50 y de probabilidad posterior >0.5 se muestran en los nodos. La barra de escala indica el número esperado de sustituciones de nucleótidos.
Figura 6. Filograma de Máxima Verosimilitud del complejo de especies <em>Trichoderma harzianum</em>, basado en la subunidad de ARN polimerasa II (RPB2). Los cinco aislados de <em>Trichoderma</em> obtenidos de predios comerciales de papa de Sonora y Sinaloa caracterizados en este estudio (Cuadro 2), aparecen en negrita. Los valores Bootstrap >50 y de probabilidad posterior >0.5 se muestran en los nodos. La barra de escala indica el número esperado de sustituciones de nucleótidos.
Figura 6. Filograma de Máxima Verosimilitud del complejo de especies Trichoderma harzianum, basado en la subunidad de ARN polimerasa II (RPB2). Los cinco aislados de Trichoderma obtenidos de predios comerciales de papa de Sonora y Sinaloa caracterizados en este estudio (Cuadro 2), aparecen en negrita. Los valores Bootstrap >50 y de probabilidad posterior >0.5 se muestran en los nodos. La barra de escala indica el número esperado de sustituciones de nucleótidos.
Figura 7. Síntomas de pudrición blanda en tubérculos de papa variedad Fianna, causados por el aislado Scr17 de <em>S. rolfsii</em> mediante inoculación artificial. (A) Tubérculos con síntomas de <em>S. rolfsii</em> en cámara húmeda. (B y C) lesiones con micelio algodonoso causadas por el hongo. (D) Corte transversal de tubérculo de papa con pudrición blanda.
Figura 7. Síntomas de pudrición blanda en tubérculos de papa variedad Fianna, causados por el aislado Scr17 de S. rolfsii mediante inoculación artificial. (A) Tubérculos con síntomas de S. rolfsii en cámara húmeda. (B y C) lesiones con micelio algodonoso causadas por el hongo. (D) Corte transversal de tubérculo de papa con pudrición blanda.

Página 5 de 16