-
O copiar el link


Filtros de Contribuciones
Buscar Contribución:
PorJuanita Guadalupe Hollman Aragón, Mirella Romero Bastidas*, Pablo Misael Arce Amezquita, Alejandro Palacios Espinosa
Recibido: 15/marzo/2023 – Publicado: 19/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2303-1
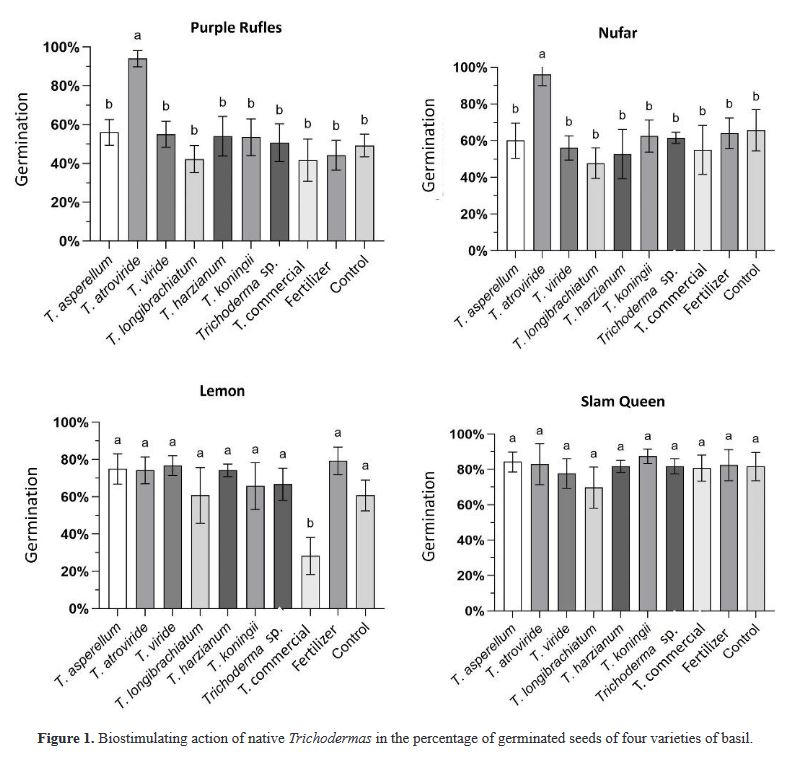
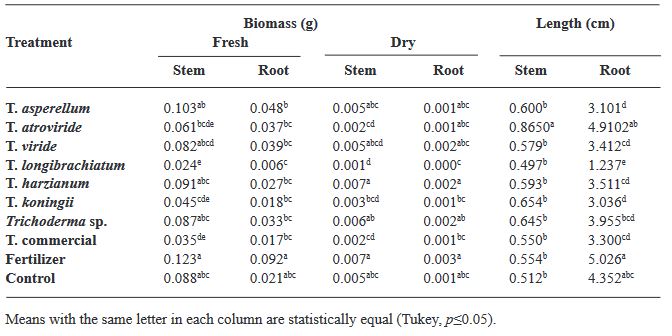
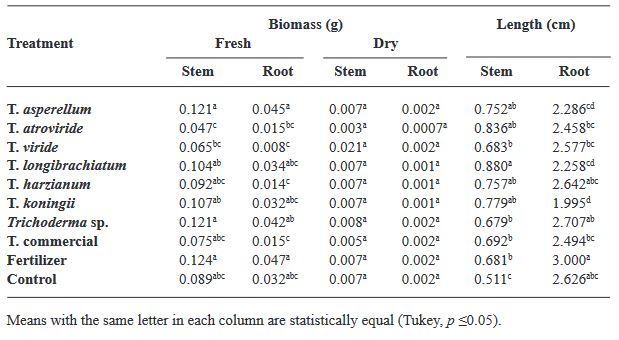
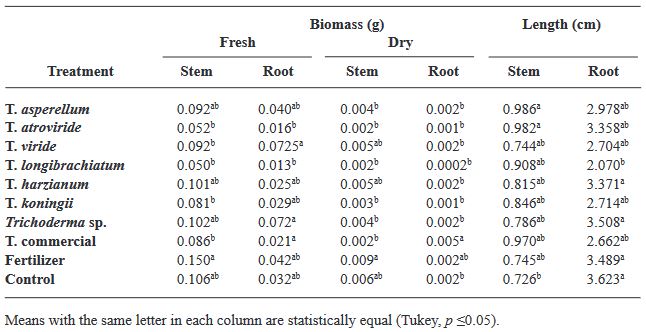
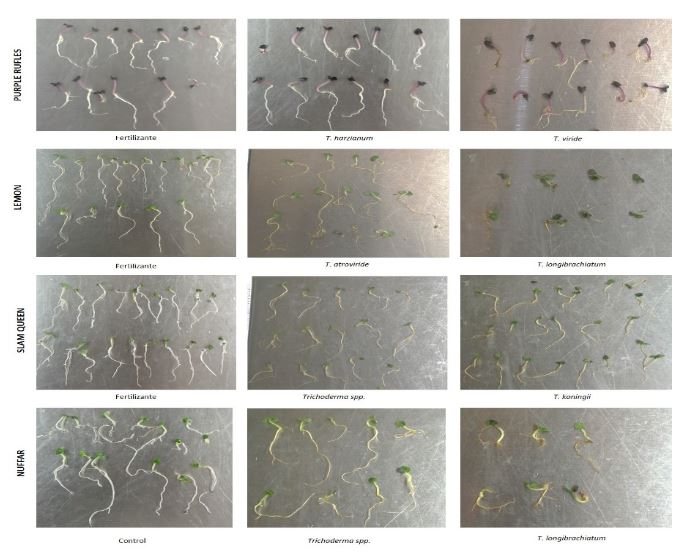
Resumen Antecedentes/Objetivo. Trichoderma es una herramienta eficiente como bioestimulante en cultivo de albahaca. Sin embargo, solo algunas especies han sido estudiadas sobre cultivares específicos. Por lo anterior, el objetivo de esta investigación fue evaluar la eficacia bioestimulante de cepas nativas de Trichoderma sobre la germinación y crecimiento de cuatro variedades de albahaca.
Materiales y Métodos. En el estudio se utilizaron seis especies de Trichoderma (T. asperellum, atroviride, viride, longibrachiatum, harzianum, koningii y Trichoderma sp.), una cepa de Trichoderma comercial (T. harzianum), fertilizante sintético (T17) y el control. 30 semillas de las variedades Purple Ruffles, Lemon, Siam Queen y Nufar fueron tratadas con una suspensión de esporas de cada Trichoderma. 48 h después, las semillas se sembraron e incubaron a 28 °C con un fotoperiodo de 12 h luz/oscuridad. Las variables a evaluar fueron; Tasa y porcentaje de germinación, biomasa y longitud de plántulas.
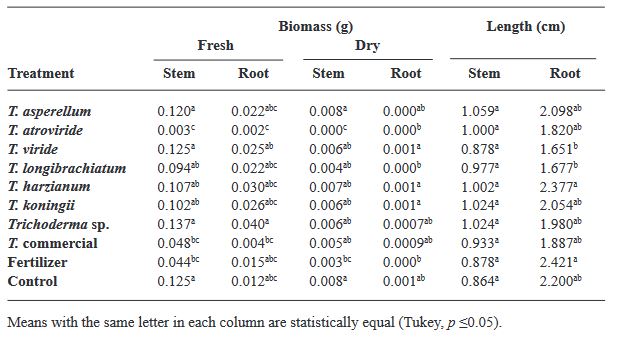
Resultados. T. atroviride presentó el mayor efecto bioestimulante en germinación. Mientras que T. asperellum registró una eficacia incrementada en biomasa y longitud de la planta en las cuatro variedades. La acción del T. comercial fue menor en todos los casos.
Conclusión. Este estudio demuestra que las cepas nativas de Trichoderma poseen efecto bioestimulante en las plantas y presentan mayor eficacia que las especies de tipo comercial.
-
O copiar el link
PorDaniel Castrillo Sequeira, Rodrigo Jiménez Robles, Milagro Granados Montero*
Recibido: 18/septiembre/2023 – Publicado: 27/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2309-3
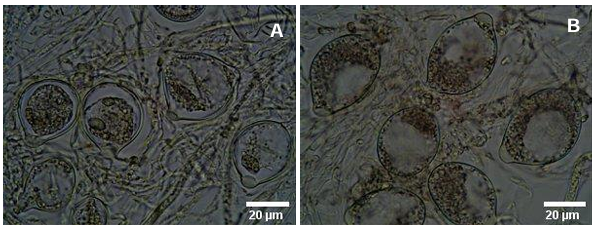
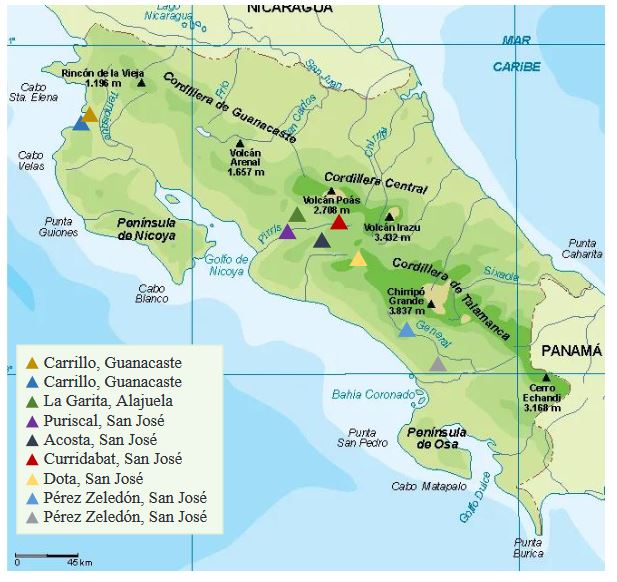
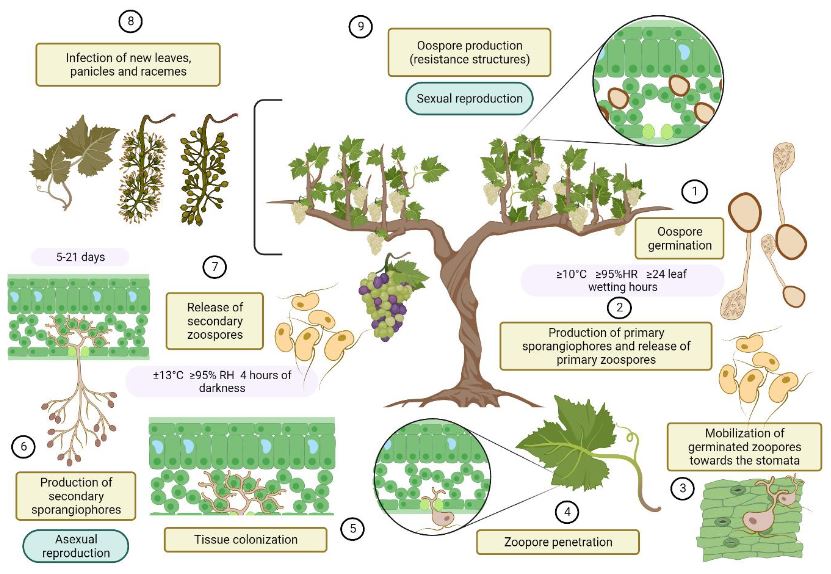
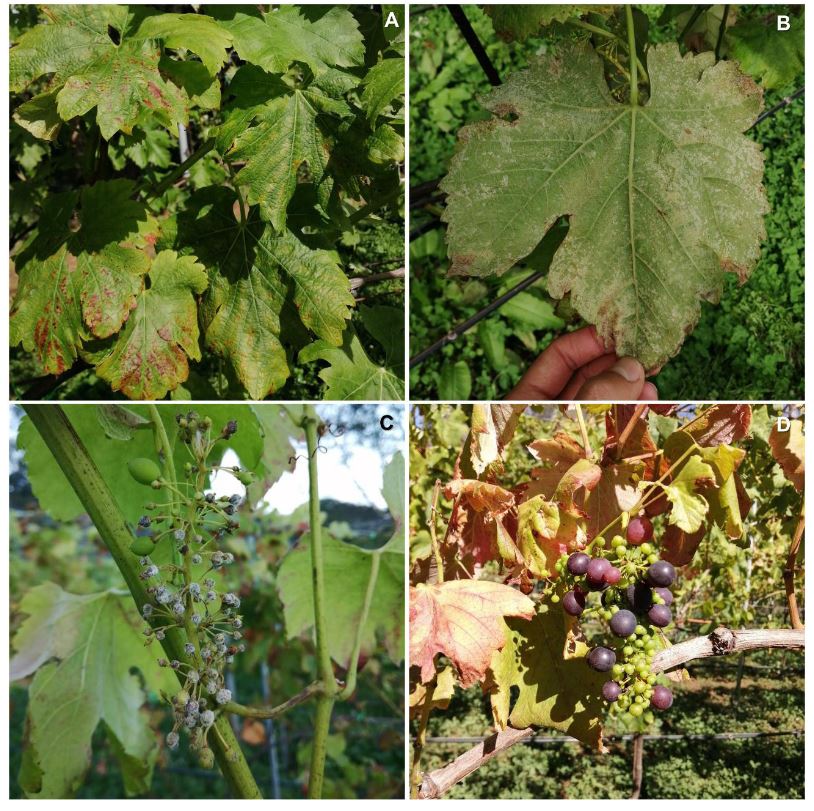
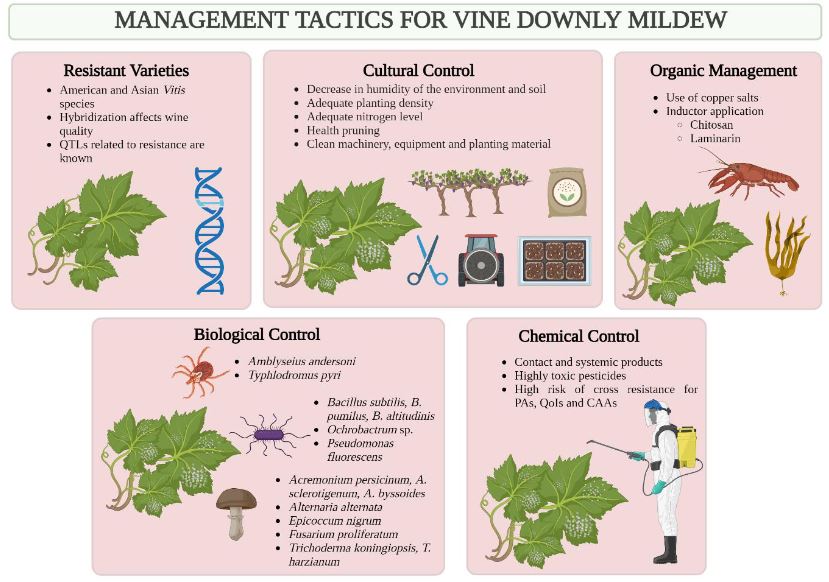
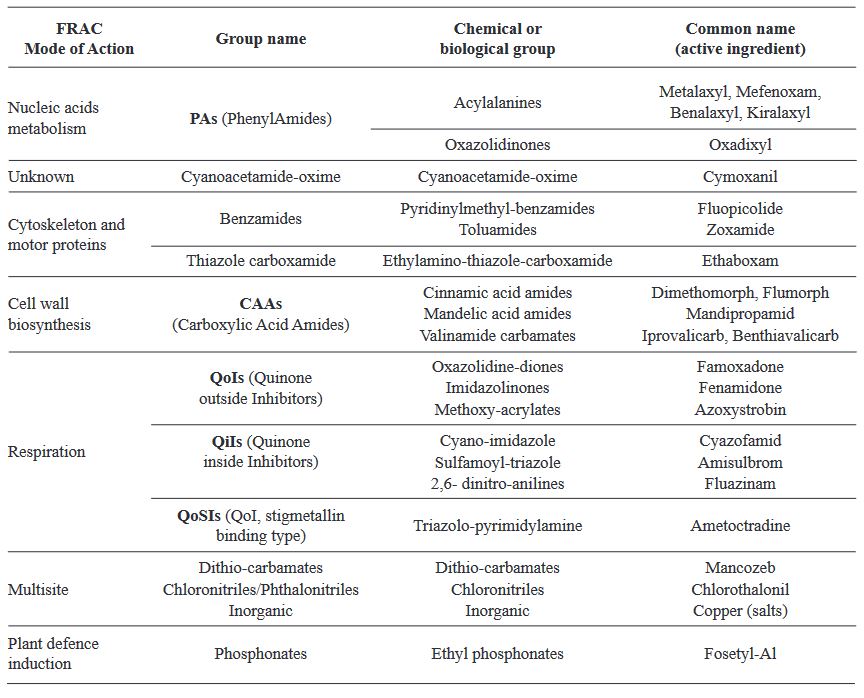
Resumen La viticultura es una de las actividades agrícolas de mayor antigüedad, y su explotación tradicionalmente se ha limitado a zonas de clima templado, de donde la vid (Vitis vinifera) y el vino son originarios. Ante los efectos del cambio climático, cada vez más áreas pierden capacidad para el desarrollo de este cultivo, y los trópicos se presentan como regiones potenciales para este mercado. En Costa Rica, la actividad vitícola se ha reportado desde mediados del siglo XX, sin embargo, la información técnica sobre el cultivo es escasa. El mildiú velloso, causado por el oomicete Plasmopara viticola, representa una de las enfermedades de mayor impacto económico para la viticultura a nivel global, así como el problema fitosanitario más limitante en Costa Rica. En condiciones de alta humedad, el desarrollo del patógeno es acelerado, y el hospedante se mantiene susceptible durante todo el ciclo de cultivo, lo cual dificulta el manejo adecuado de las epidemias. Globalmente, el combate químico es la estrategia de manejo más común; sin embargo, la aparición de poblaciones de P. viticola con resistencia a fungicidas se ha observado en la mayoría de las zonas productoras, por lo que la búsqueda de alternativas más ecológicas constituye una necesidad. En la actualidad, Costa Rica no cuenta con estrategias de manejo integrado que permitan la producción sostenible, y solo existe un producto registrado para la protección contra este patógeno. Esta situación justifica prestar mayor atención al estudio de este patosistema.
-
O copiar el link
Inducción de respuesta de defensa por inulina de tubérculos de dalia (Dahlia sp.) en Capsicum annuum
PorJulio César López Velázquez, Soledad García Morales, Joaquín Alejandro Qui Zapata*, Zaira Yunuen García Carvajal, Diego Eloyr Navarro López, Rebeca García Varela
Recibido: 10/mayo/2023 – Publicado: 29/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2305-2
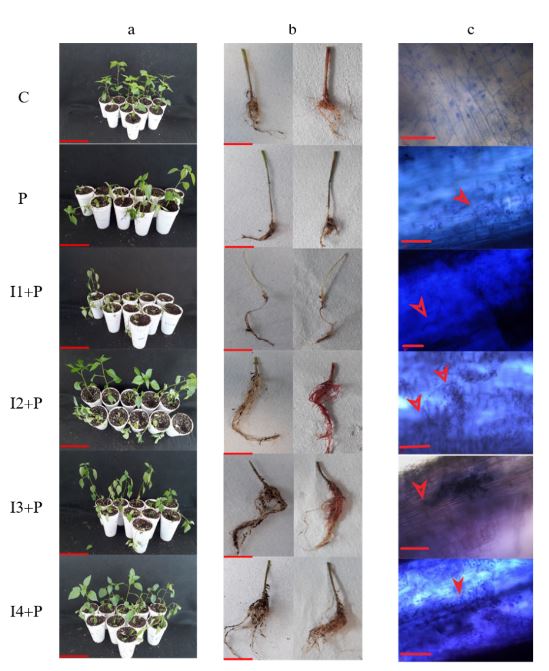
Resumen Antecedentes/Objetivo. Phytophthora capsici es el agente causal de la marchitez del chile. Entre las estrategias para su control está el uso de inductores de resis tencia. Los fructanos son moléculas que presentan propiedades biológicas interesantes, incluyendo la capacidad de inducir mecanismos de resistencia en algunas plantas. En este trabajo se evaluó el efecto de protección de cuatro concentraciones de inulina de tubérculos de dalia en chile infectado con P. capsici.
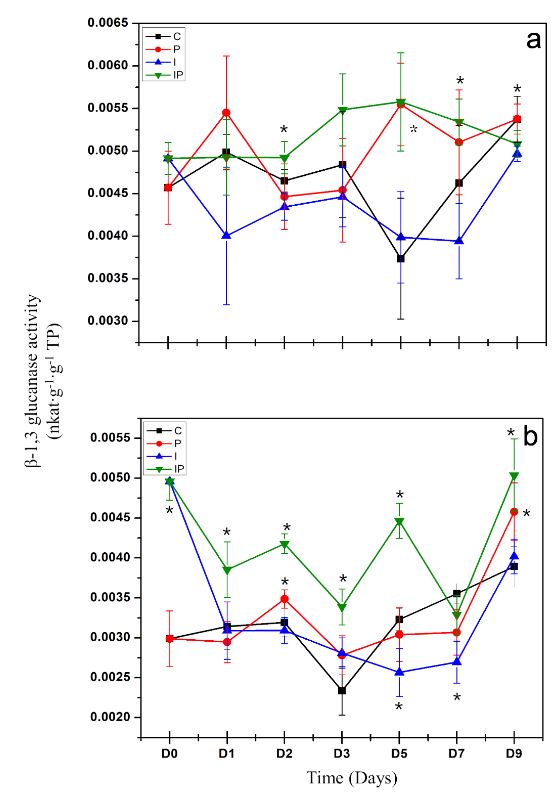
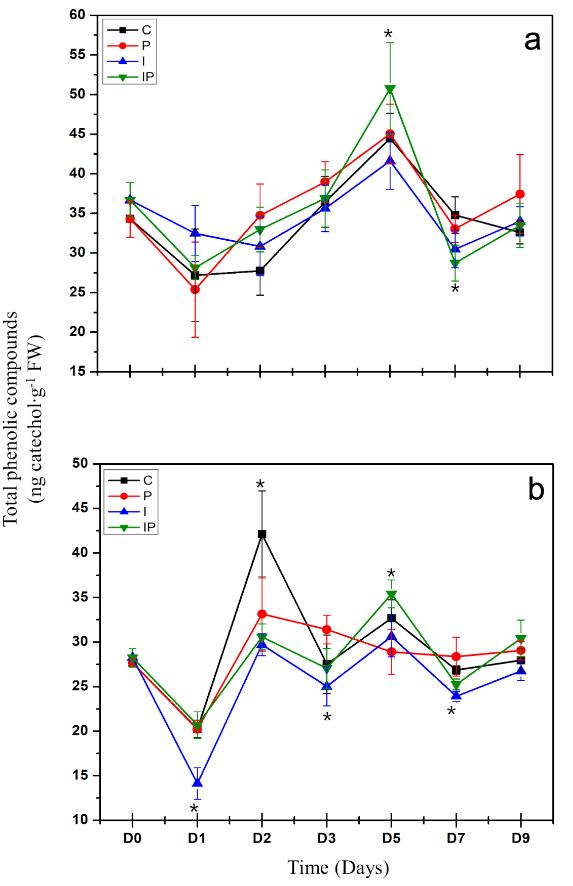
Materiales y Métodos. La concentración que presentó mayor protección se eligió para evaluar la inducción de respuesta de defensa mediante la actividad enzimática de β-1,3 glucanasas, peroxidasas y la producción de compuestos fenólicos totales.
Resultados. La inulina mostró un efecto protector contra la infección a concentraciones de 100 a 300 μM, ya que disminuyeron los síntomas y las plántulas mostraron mejor desarrollo vegetativo. Se observó que la inulina en concentración 200 μM indujo una respuesta de defensa efectiva asociada al aumento de la actividad de β-1,3 glucanasas y peroxidasas mediante una respuesta local y sistémica en las plántulas. Esta respuesta fue diferenciada entre las plántulas tratadas con inulina y las plántulas infectadas con P. capsici.
Conclusión. Se concluyó que la inulina tiene la capacidad de proteger al chile de P. capsici por la inducción de resistencia.
-
O copiar el link

PorMaría Guadalupe Aguilar Rito, Amaury Martín Arzate Fernández*, Hilda Guadalupe García Núñez, Tomas Héctor Norman Mondragón
Recibido: 02/octubre/2023 – Publicado: 20/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2310-1
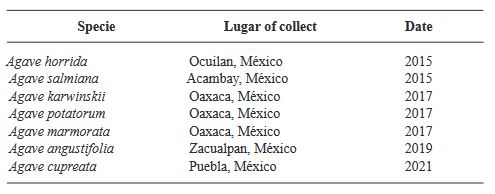
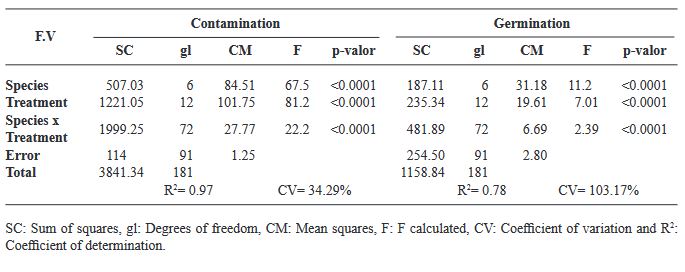
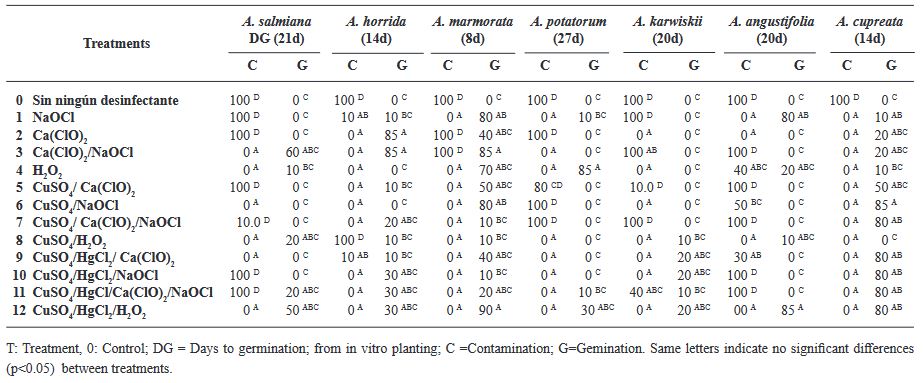
Resumen Antecedentes/Objetivo. La desinfección de las semillas de Agave es un paso crucial en el cultivo in vitro para prevenir la contaminación, la cual puede ser causada por microorganismos como bacterias, hongos y virus que pueden afectar el crecimiento de las plántulas y reducir la tasa de germinación de las semillas. Por lo tanto, la desinfección adecuada de las semillas es esencial para garantizar un crecimiento vegetal vigoroso y saludable. El objetivo principal de esta investigación fue: evaluar 12 tratamientos para generar un protocolo eficiente de desinfección in vitro en semillas de seis especies de Agave mezcalero y un pulquero con desinfectantes y combinaciones diferentes.
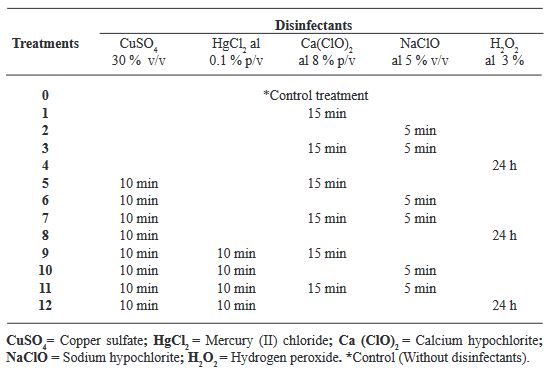
Materiales y Métodos. Los desinfectantes utilizados fueron; Peróxido de Hidrógeno al 3 % por 24 h, Hipoclorito de Sodio comercial al 5 % (v/v) por 5 min, Hipoclorito de Calcio al 8 % (p/v) por 15 min, Sulfato de cobre (PENTAMAX®) al 30 % (v/v) por 10 min, Cloruro de Mercurio II al 0.1 % (p/v) por 10 min.
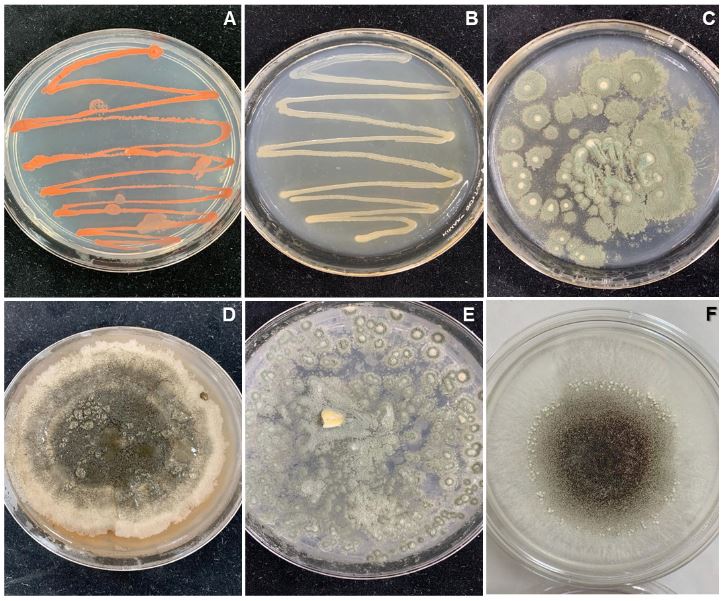
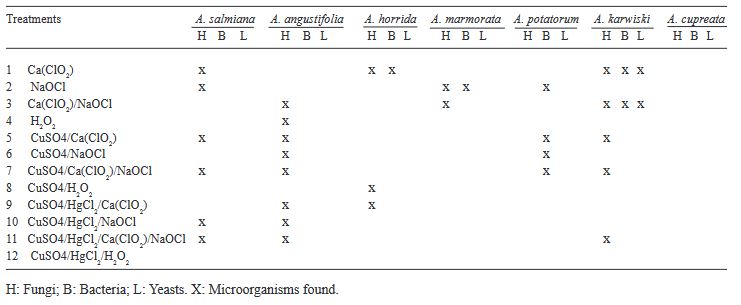
Resultados. Los microorganismos contaminantes identificados fueron cuatro géneros de hongos: Monilinia sp., Aspergillus sp., Penicillium sp., y Alternaria alternata, una bacteria; Bacillus sp., y una levadura, Schizosaccharomyces sp.
Conclusión. El mejor tratamiento para la desinfección de las semillas fue Peróxido de Hidrógeno al 3 % por 24 h en combinación con Sulfato de cobre al 30 % (v/v) por 10 min y Cloruro de Mercurio II al 0.1 % (p/v) por 10 min, obteniendo un 100 % de desinfección y logrando que germinaran todas las especies.
-
O copiar el link

PorEdgar Guevara Avendaño, Itzel Anayansi Solís García, Alfonso Méndez Bravo, Fernando Pineda García, Guillermo Angeles Alvarez, Carolina Madero Vega, Sylvia P Fernández Pavía, Alejandra Mondragón Flores, Frédérique Reverchon*
Recibido: 17/septiembre/2023 – Publicado: 08/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2309-2
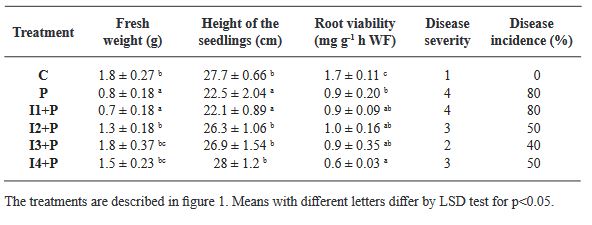
Resumen Antecedentes/Objetivo. El objetivo fue corroborar la capacidad como agente de biocontrol de la cepa Bacillus sp. A8a en árboles de aguacate (Persea americana) infectados por Phytophthora cinnamomi.
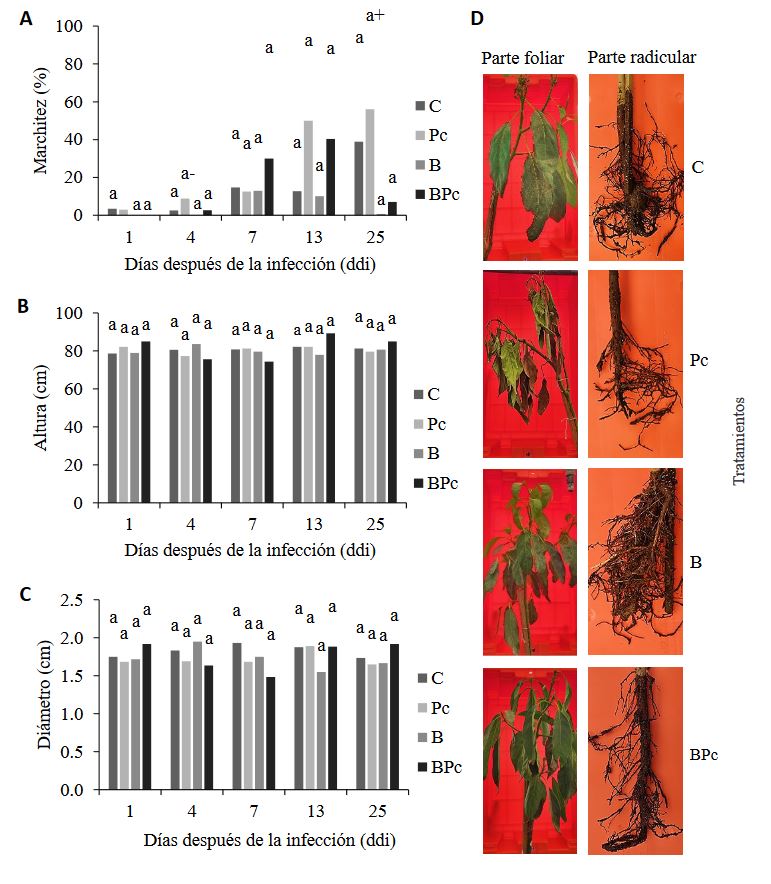
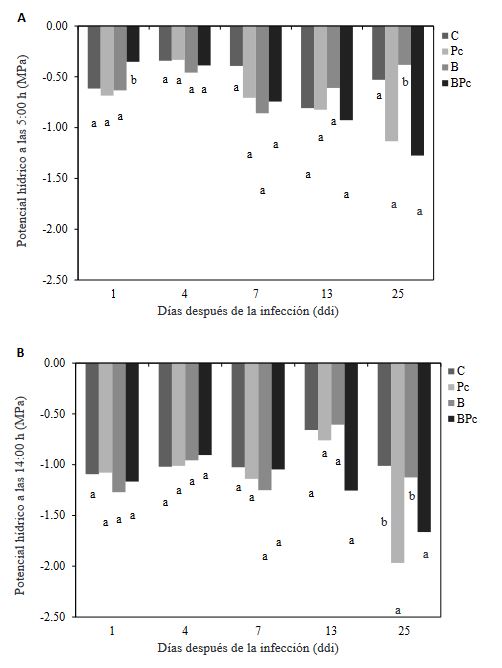
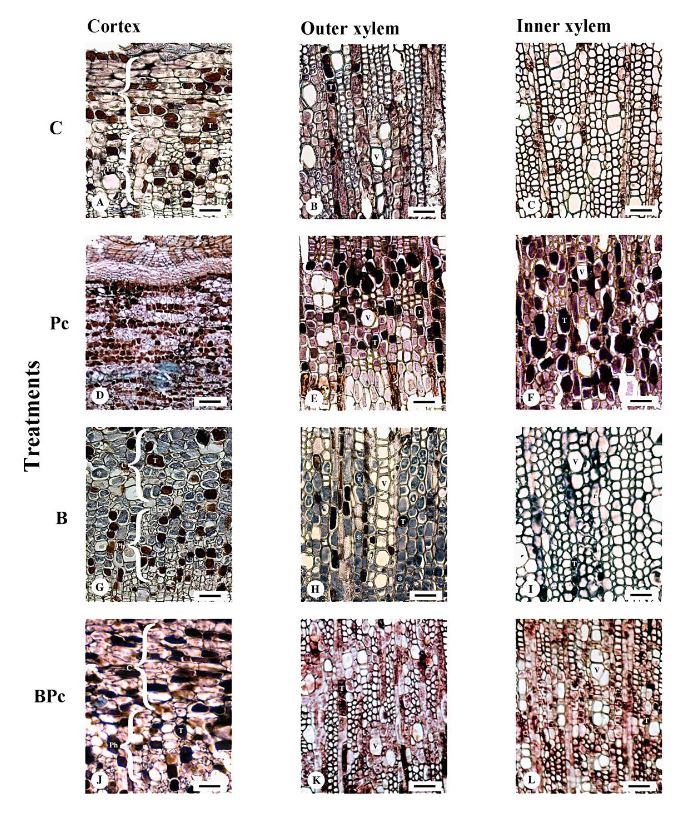
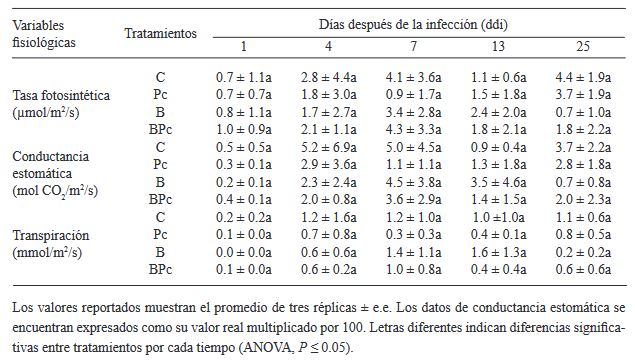
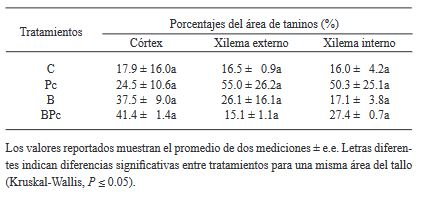
Materiales y Métodos. Se implementó un experimento en invernadero con cuatro tratamientos: 1) plantas control; 2) plantas infectadas por P. cinnamomi; 3) plantas inoculadas con Bacillus sp. A8a; 4) plantas infectadas por P. cinnamomi e inoculadas con Bacillus sp. A8a. Se evaluaron distintas variables morfo-fisiológicas durante el experimento, hasta 25 días después de la infección (ddi). Además, se analizó la densidad de taninos en cortes de tallo a los 25 ddi, para determinar la respuesta de defensa de los árboles ante la enfermedad.
Resultados. La inoculación de la cepa A8a redujo los síntomas de marchitez en un 49% a los 25 ddi, en comparación con las plantas no inoculadas. No se encontraron diferencias en las variables morfo-fisiológicas registradas entre tratamientos. Sin embargo, se detectó una mayor acumulación de taninos en el xilema de tallos de plantas infectadas, mientras que las plantas inoculadas con la cepa A8a mostraron una mayor densidad de taninos en el córtex.
Conclusión. Nuestros resultados confirman la actividad de biocontrol de Bacillus sp. A8a en aguacate e indican que la acumulación diferencial de taninos en el córtex de plantas inoculadas con la bacteria podría contribuir a la mayor tolerancia de las plantas de aguacate ante la marchitez por Phytophthora
-
O copiar el link
PorRosa María Longoria Espinoza*, Cristal Leyva Ruiz, Gloria Margarita Zamudio Aguilasocho, Rubén Félix Gastélum
Recibido: 02/octubre/2023 – Publicado: 23/enero/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2310-4
Resumen Antecedentes/Objetivo. El propósito de esta investigación consistió en evaluar la actividad promotora de crecimiento vegetal in vitro de bacterias endófitas aisladas en tejido de plantas de papa variedad Atlantic del municipio de Guasave, Sinaloa, México.
Materiales y Métodos. Se aisló la población de bacterias en medio de cultivo agar Lb; se obtuvieron dos aislados bacterianos de raíz y dos de tallo, los cuatro Gram positivos. La población bacteriana de las muestras de tejido se expresó como (UFC g-1). Se evaluó cualitativamente la capacidad de solubilización de fosfato, producción de Quitinasas y sideróforos.
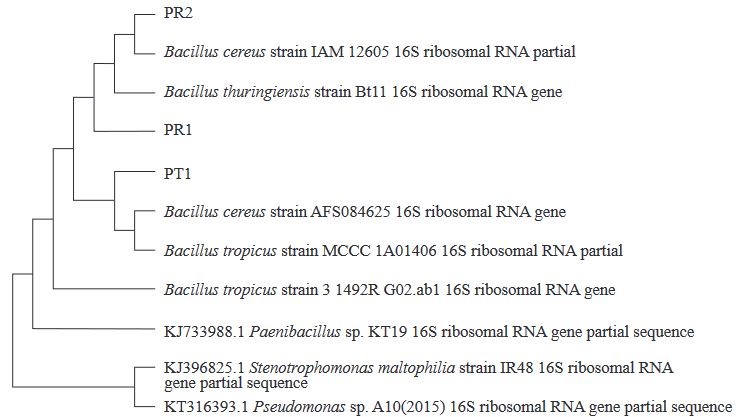
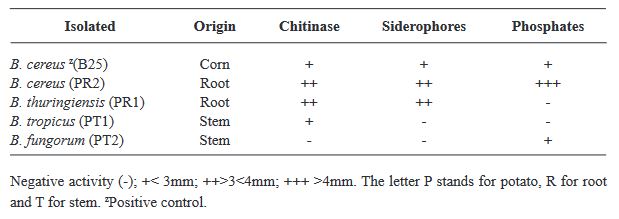
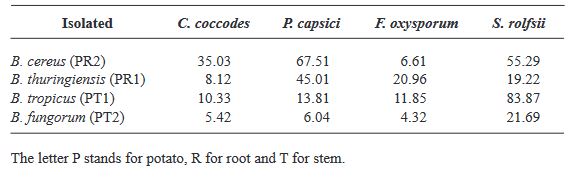
Resultados. Se realizó una secuenciación parcial del gen 16S ADNr, lo que permitió identificar especies de bacterias asociadas dentro de los Firmicutes. El 100 % de las cepas se identificaron como Bacillus sp. con identidades mayores al 97 %: B. cereus, B. tropicos, B. thuringiensis, B. fungorum. Las cepas B. thuringiensis y B. cereus mostraron actividad positiva en promoción de crecimiento vegetal in vitro mediante la solubilización de fosfato, producción de Quitinasas y sideróforos. B. cereus y B. tropicus presentaron capacidad inhibitoria mayor al 50 % para Sclerothium rolfsii.
Conclusión. Es relevante continuar en las investigaciones realizadas en laboratorio, con el fin de determinar su potencial en el campo mejorando la producción del cultivo de papa.
-
O copiar el link
PorAna María López López, Juan Manuel Tovar Pedraza, Josefina León Félix, Raúl Allende Molar, Nelson Bernardi Lima, Isidro Márquez Zequera, Raymundo Saúl García Estrada*
Recibido: 27/septiembre/2023 – Publicado: 13/febrero/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2309-5
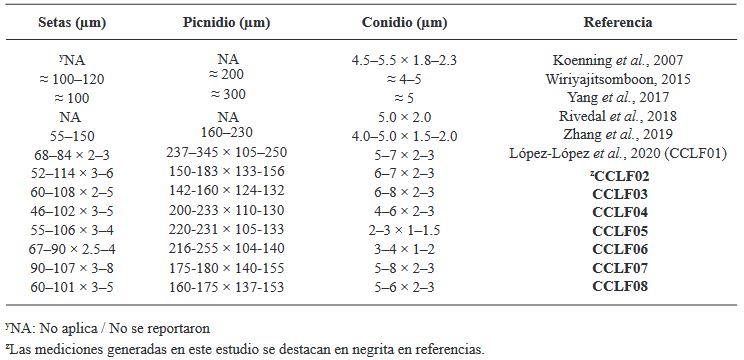
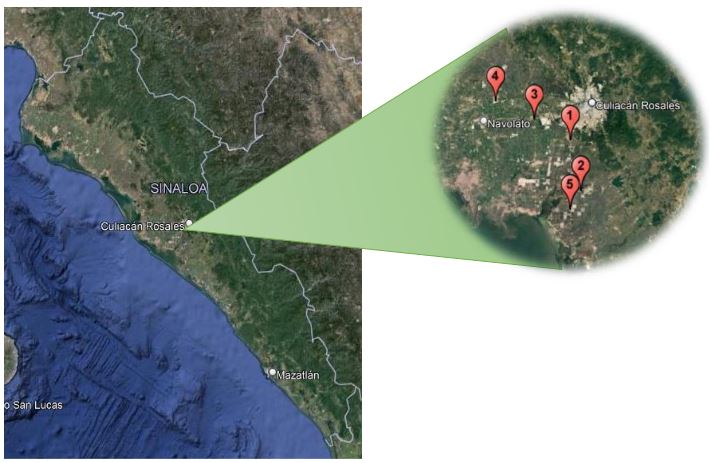
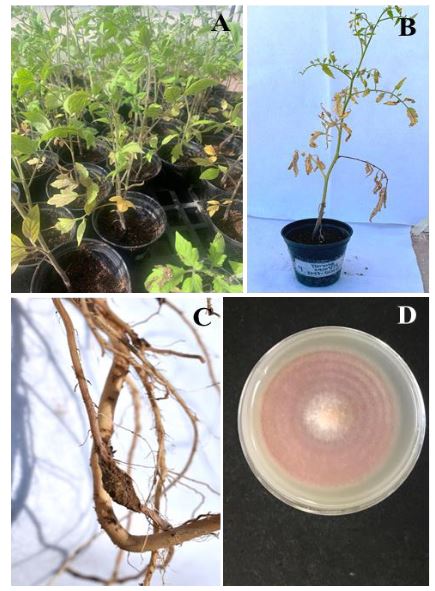
Resumen Antecedentes/Objetivo. El jitomate (Solanum lycopersicum) es uno de los principales cultivos en México. En los años 2017 y 2018, se observaron síntomas de raíz corchosa y rosada con una incidencia de 10 a 20 % en Culiacán, Sinaloa, México. En el follaje, las plantas presentaron clorosis generalizada, con crecimiento raquítico y senescencia de las hojas. En las raíces, se desarrollaron lesiones de color café oscuro y rosa, además de textura corchosa. El objetivo de este estudio fue caracterizar morfológica y molecularmente a los aislados fúngicos asociados a los síntomas de raíz corchosa y rosada en campos de jitomate de Culiacán, Sinaloa, así como evaluar su patogenicidad.
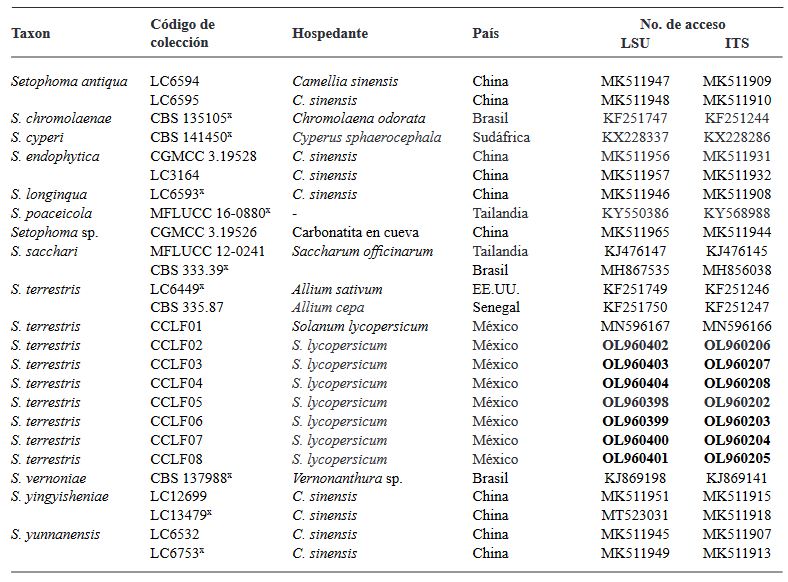
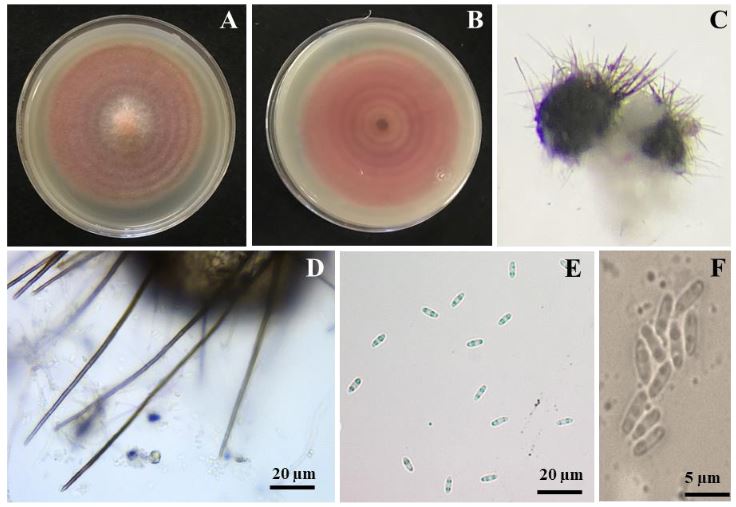
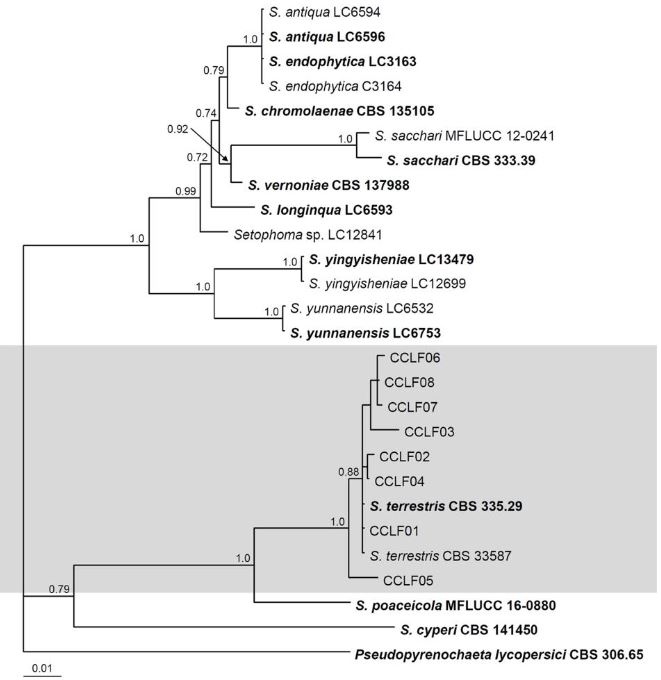
Materiales y Métodos. Se obtuvieron aislados monoconidiales y se identificaron como Setophoma terrestris con base en los caracteres morfológicos. Para la confirmación de la identidad, se amplificó y se secuenció la región de los espaciadores transcritos internos (ITS) del ADNr, así como un fragmento del gen 28S del ARNr (LSU).
Resultados. Con las secuencias obtenidas se construyó un árbol filogenético con el método de Inferencia Bayesiana y se encontró que las secuencias se agruparon con las secuencias ex–tipo de Setophoma terrestris. La patogenicidad de los aislados se verificó mediante la inoculación de discos miceliales en raíces de 10 plántulas de jitomate de un mes de edad. Las raíces de plántulas que se inocularon con discos de PDA sin micelio, sirvieron como control. Treinta días después de la inoculación se observaron síntomas de raíz corchosa y rosada, mientras que las raíces de las plantas de control permanecieron sanas
Conclusión. De acuerdo con la caracterización morfológica, la identificación molecular y las pruebas de patogenicidad, se confirmó que Setophoma terrestris es el agente causal de la raíz corchosa y rosada en campos agrícolas de jitomate distribuidos en Culiacán, Sinaloa
-
O copiar el link

El género Orthotospovirus en Costa Rica: Un caso centroamericano
PorMauricio Montero Astúa*, Natasha Dejuk Protti, David Bermúdez Gómez, Elena Vásquez Céspedes, Laura Garita Salazar, Federico J Albertazzi, Scott Adkins, Lisela Moreira Carmona
Recibido: 23/agosto/2023 – Publicado: 28/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2023-6
Resumen Antecedentes/Objetivo. El género Orthotospovirus, conocido por impacto significativo en una variedad de cultivos de importancia global, se manifiesta en virus emergentes con plantas económicamente perjudiciales. Aunque estos virus fitopatógenos están bien documentados en América del Norte y del Sur, su presencia y dinámica en América Central, particularmente en Costa Rica, un punto crítico entre los dos continentes, siguen siendo menos comprendidos. El objetivo de este trabajo fue determinar la prevalencia de los Orthotospovirus en Costa Rica y obtener secuencias parciales del genoma para analizar la variabilidad genética.
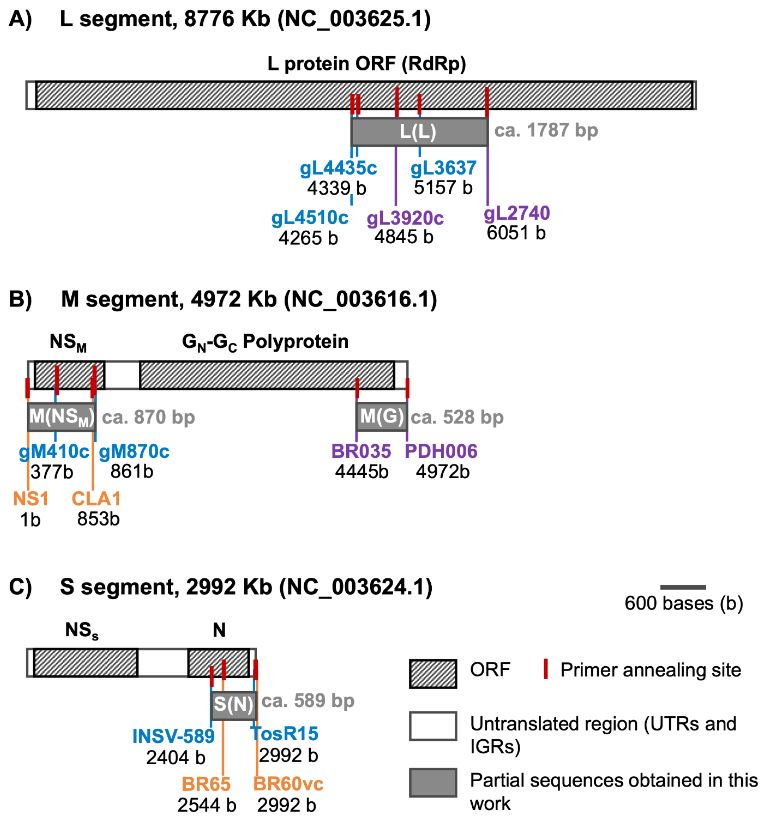
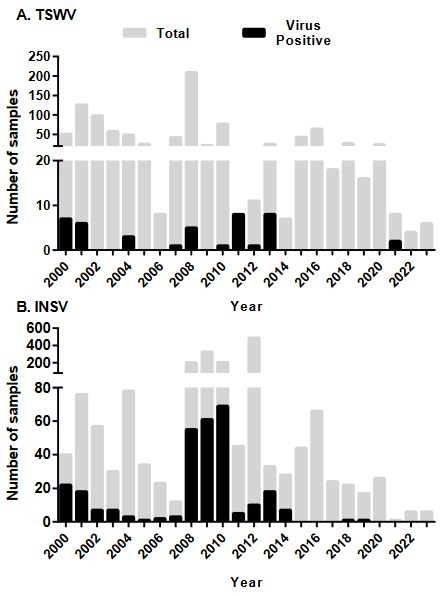
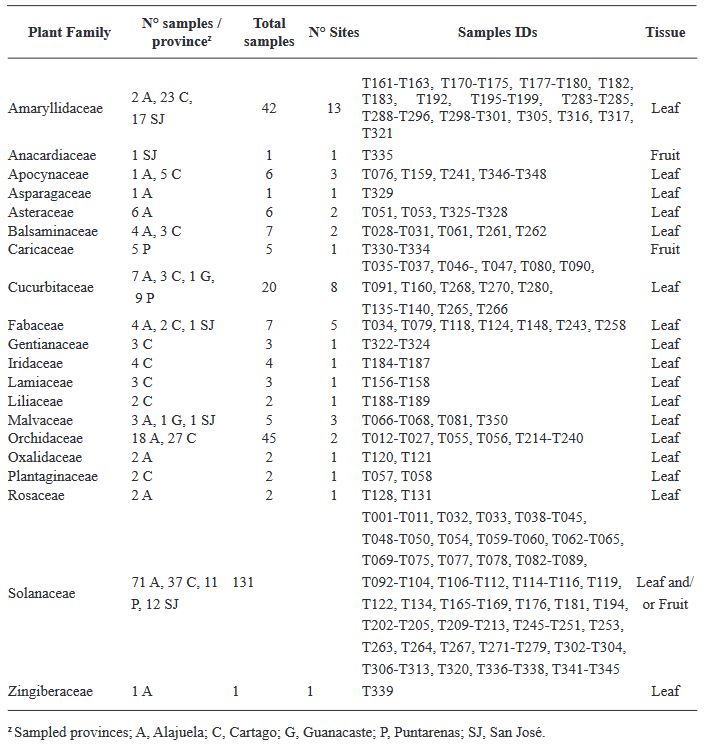
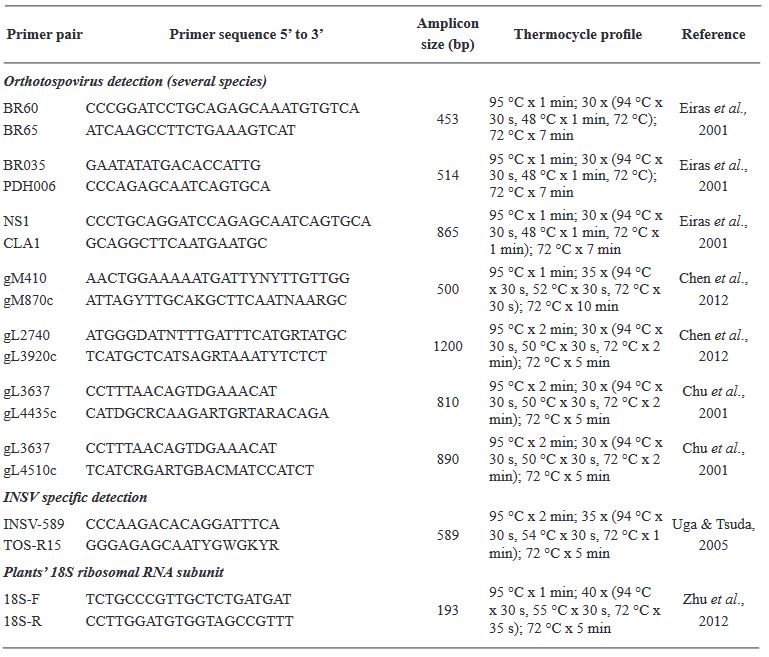
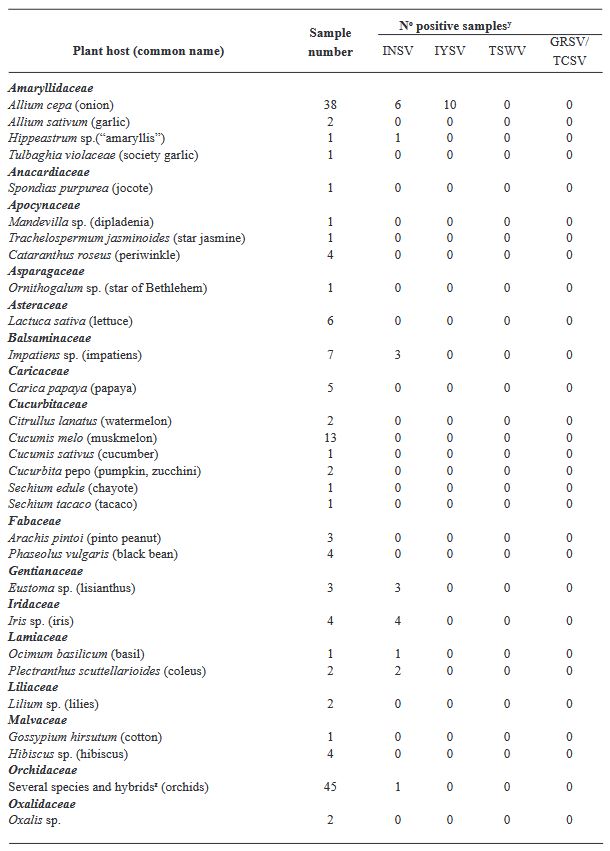
Materiales y Métodos. El estudio consistió en un análisis exhaustivo de 295 muestras de plantas utilizando el ensayo de inmunoadsorción ligado a enzimas (ELISA), una técnica sensible para detectar antígenos específicos, para evaluar la prevalencia de INSV, IYSV, TSWV y el serogrupo GRSV/TCSV. Una caracterización molecular más profunda de 20 muestras se realizó mediante la reacción en cadena de la polimerasa con transcripción inversa (RT-PCR), utilizando cebadores tanto de amplio espectro como específicos de especie para aumentar la precisión de la detección.
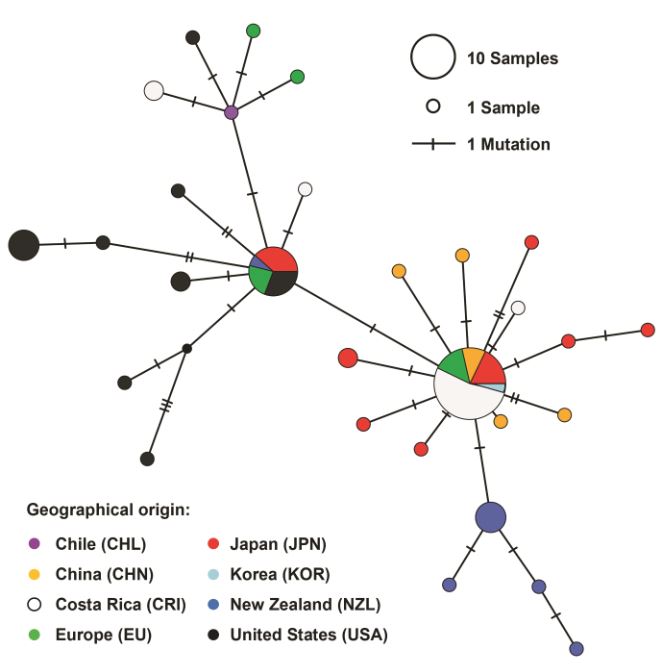
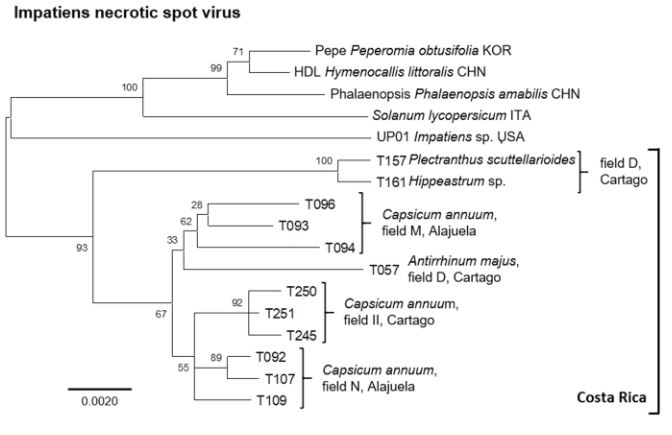
Resultados. Los resultados de ELISA revelaron la no detección de TSWV y el serogrupo GRSV/TCSV, divergiendo de informes de diagnóstico previos. La confirmación de INSV en Costa Rica a través de ELISA, RT-PCR y secuenciación parcial subraya su prevalencia tanto en campos abiertos como en invernaderos. A pesar de los informes diagnósticos anteriores que sugerían la presencia de TSWV en Costa Rica, nuestro estudio no detectó este virus. El análisis RT-PCR con cebadores degenerados tampoco encontró evidencia de otras especies de Orthotospovirus en nuestras muestras. La identificación de un haplotipo dominante de INSV, junto con tres variantes adicionales, sugiere la probabilidad de al menos dos introducciones independientes del virus en la región.
Conclusión. Estos hallazgos subrayan la necesidad de realizar muestreos e investigaciones más exhaustivas sobre los Orthotospovirus en América Central para comprender mejor su epidemiología e impacto en la agricultura
-
O copiar el link


Viroma del nopal verdura en la zona centro de México
PorCandelario Ortega Acosta, Daniel L Ochoa Martínez*, Reyna I Rojas Martínez, Cristian Nava Díaz, Rodrigo A Valverde
Recibido: 31/julio/2023 – Publicado: 27/diciembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2023-2
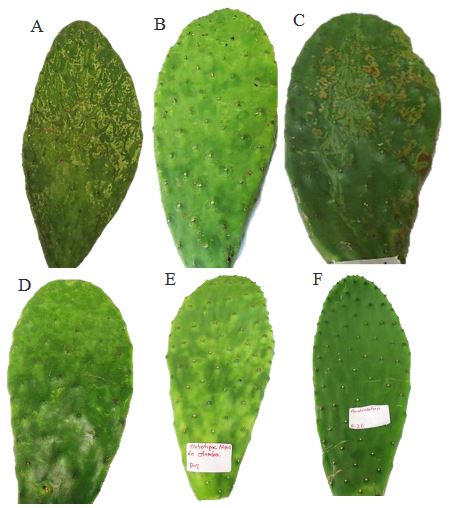
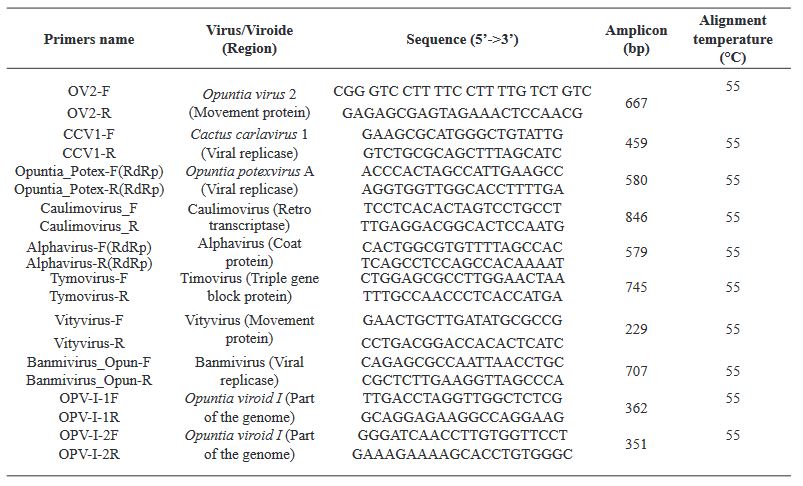
Resumen Antecedentes/Objetivo. En este estudio se aprovechó la capacidad de la secuenciación de alto rendimiento (HTS) para detectar virus en nopal verdura.
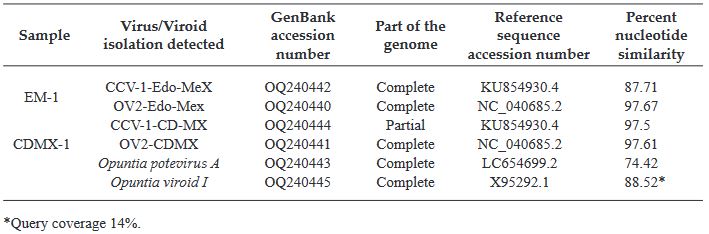
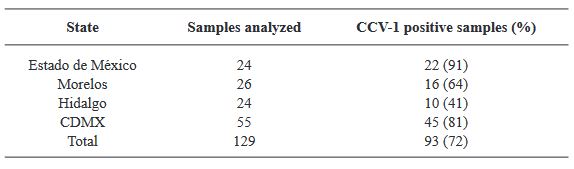
Materiales y Métodos. Se analizaron muestras del Estado de México (EDMX), Hidalgo y Morelos, así como de la Ciudad de México (CDMX).
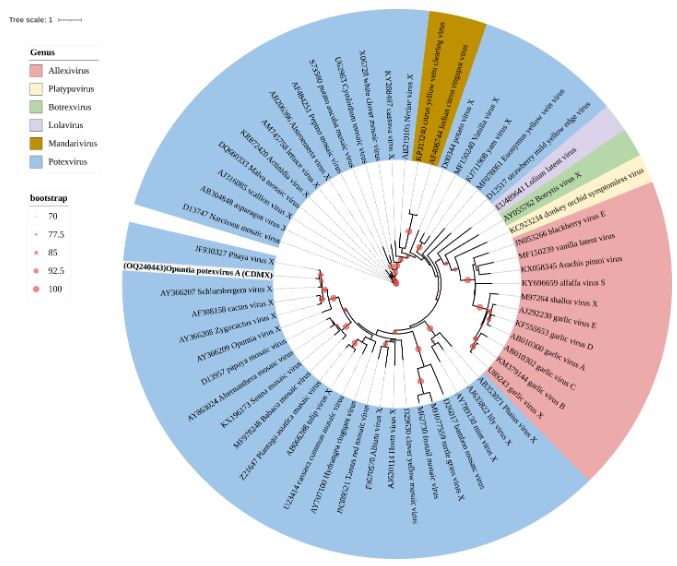
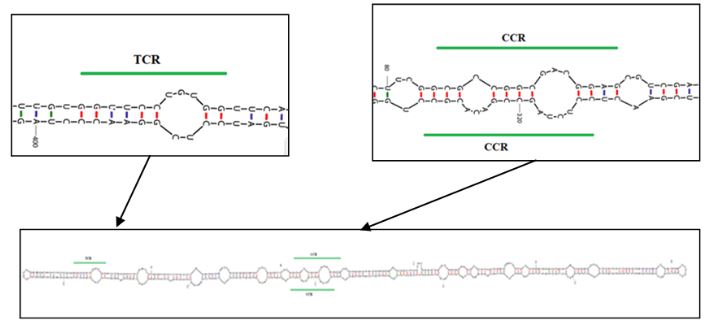
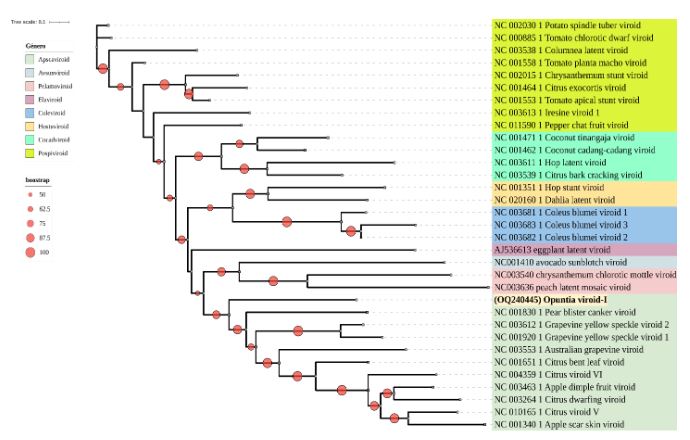
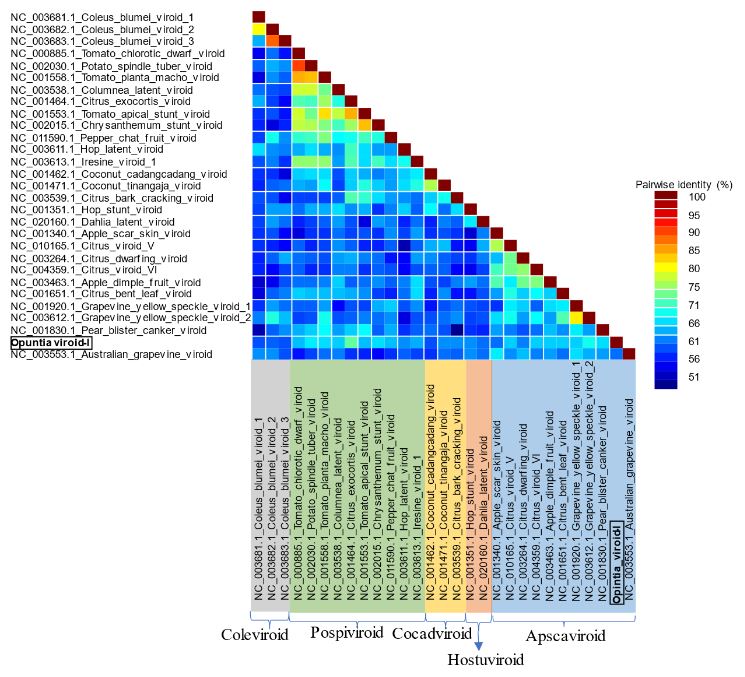
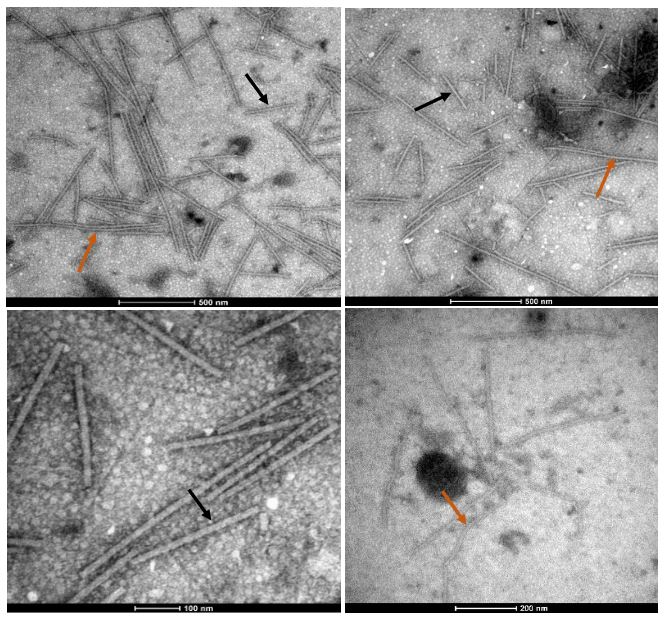
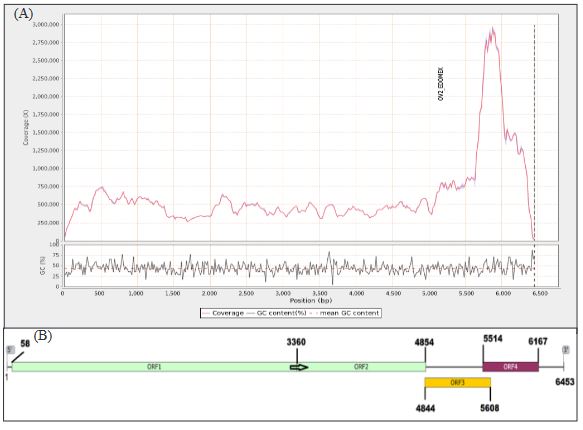
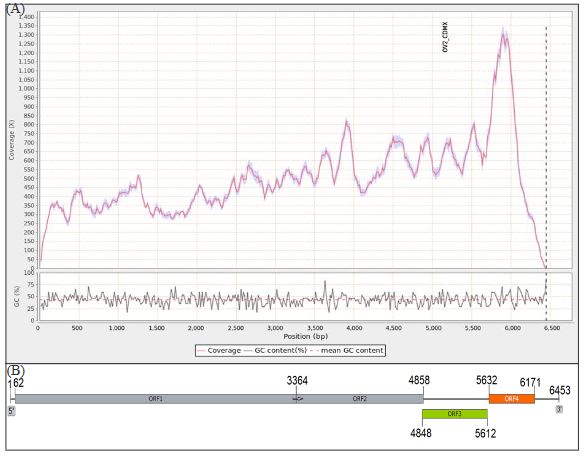
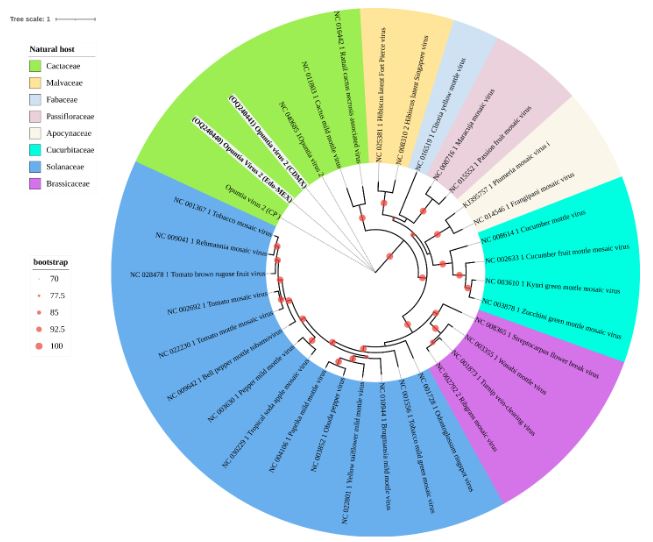
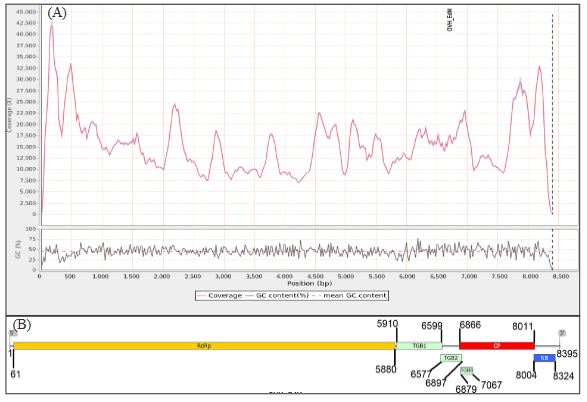
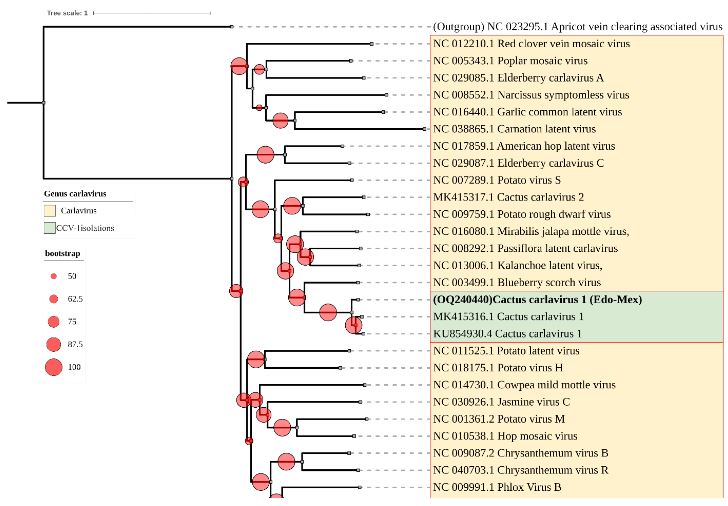
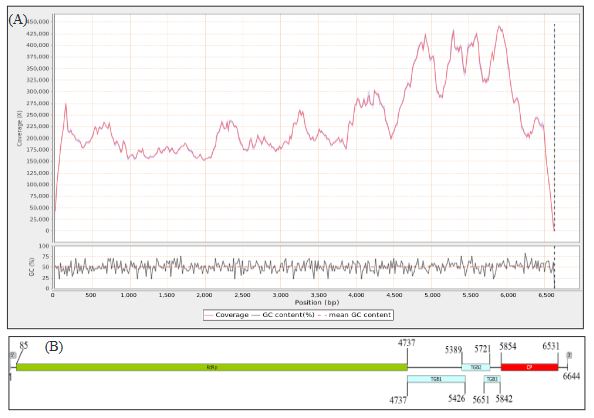
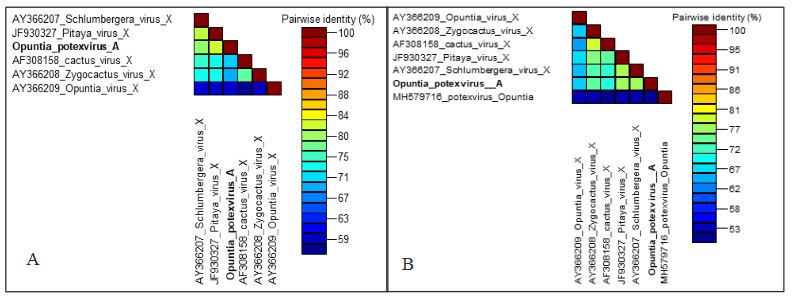
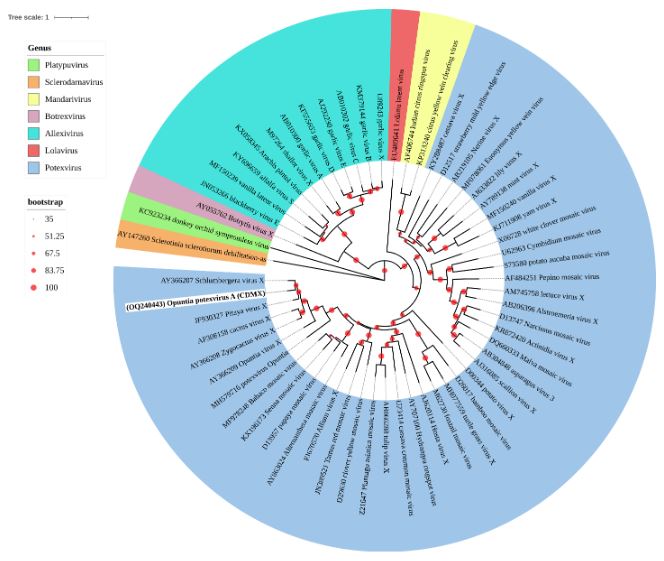
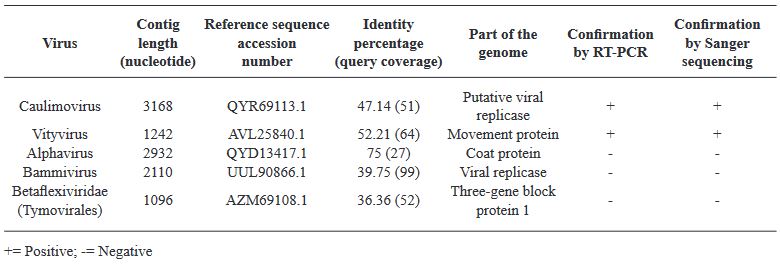
Resultados. En la muestra proveniente de EDMX, se detectaron y recuperaron los genomas de Opuntia virus 2 (OV2, género Tobamovirus) y Cactus carlavirus 1 (CCV-1, género Carlavirus). En la muestra proveniente de CDMX, además de OV2 y CCV-1, se detectó un nuevo viroide y un potexvirus. El primero tiene un genoma RNA circular con 412 nt de longitud para el cual se propone el nombre de “Opuntia viroid I” (OVd-I). La estructura primaria de este viroide mostró una identidad de secuencia de nucleótidos de menos del 80 % con cualquiera de los viroides actualmente conocidos y una relación filogenética con el género Apscaviroid, (Familia Pospiviroidae) con el que comparte motivos estructurales conservados.
Conclusión. El nuevo potexvirus se denominó Opuntia potexvirus A (OPV-A), cuya secuencia de la replicasa viral tiene un 77.7 % de identidad de aminoácidos con Schlumbergera virus X. Finalmente, en 93 (72 %) de 129 muestras de nopal verdura recolectadas en las cuatro entidades, se detectó al CCV-1.
-
O copiar el link
Aspergillus oryzae: Una oportunidad para la agricultura
PorKaren Berenice García Conde, Ernesto Cerna Chávez, Yisa María Ochoa Fuentes*, Jazmín Janet Velázquez Guerrero
Recibido: 23/febrero/2023 – Publicado: 14/noviembre/2023
DOI: https://doi.org/10.18781/R.MEX.FIT.2302-2
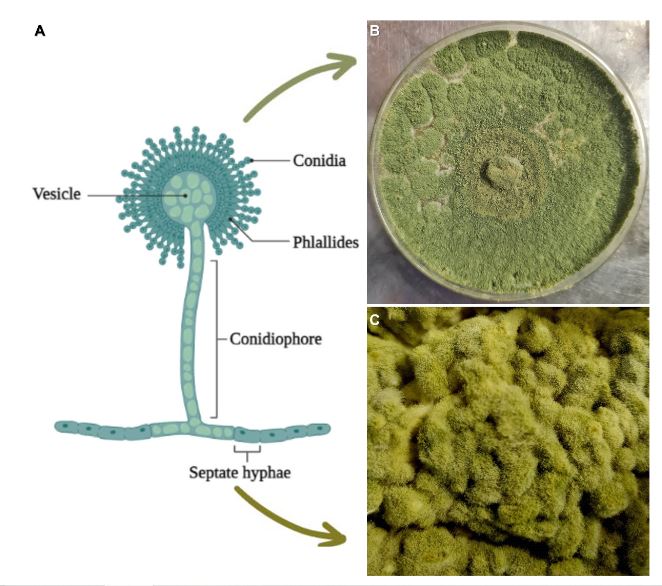
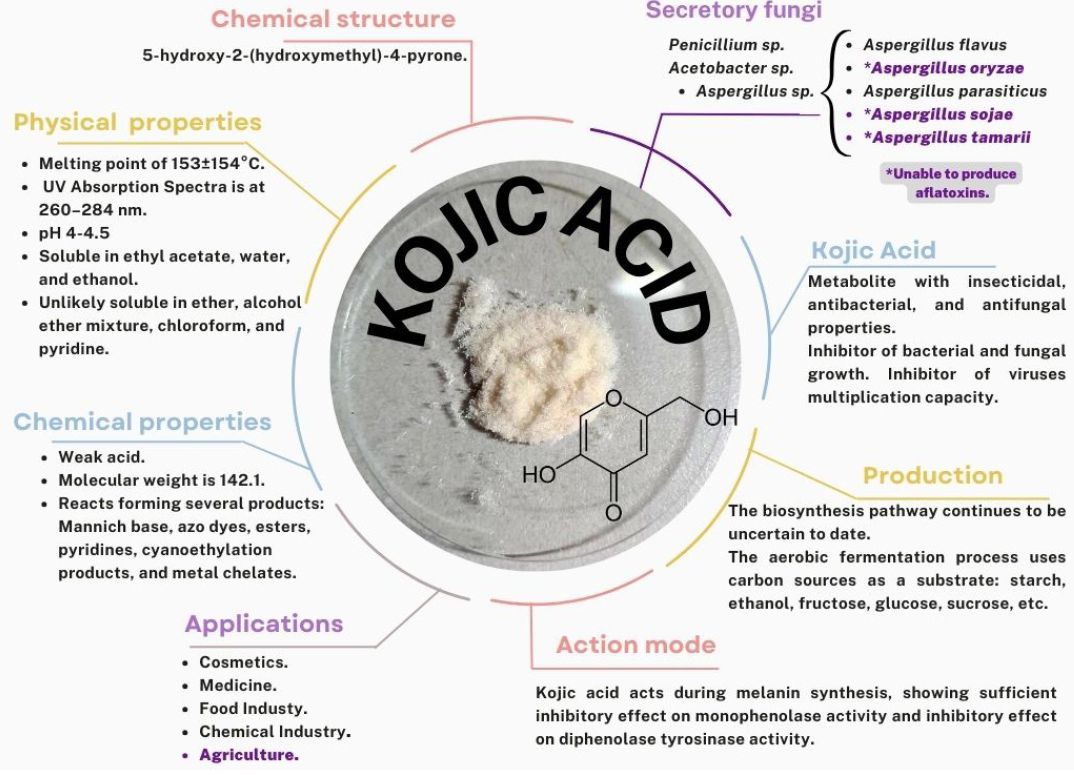
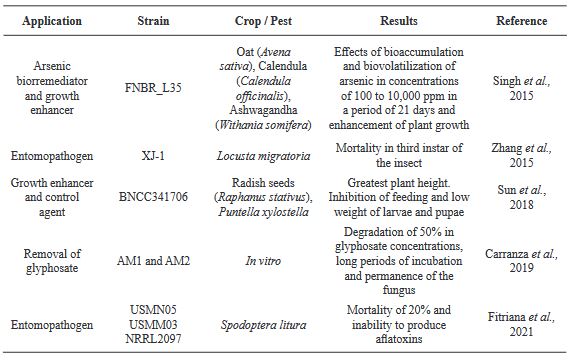
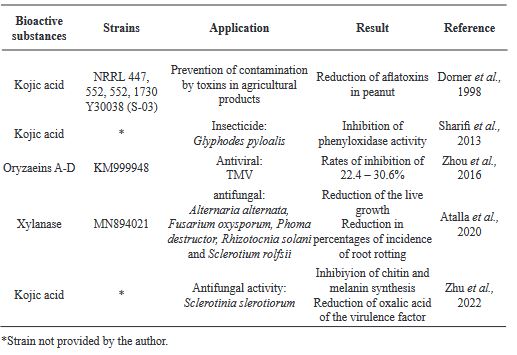
Resumen Aspergillus oryzae es un hongo filamentoso, capaz de degradar diversas sustancias empleando enzimas, por lo que es ampliamente utilizado en la industria biotecnológica, productos farmacéuticos, enzimas para uso industrial, agentes blanqueadores y tratamientos textiles anticontaminación. Sin embargo, son pocos los trabajos centrados en las aplicaciones de campo de este microorganismo. El presente manuscrito revisa las posibles aplicaciones con potencial benéfico de A. oryzae y algunos subproductos en la agricultura como control biológico, inductor de crecimiento y biorremediador de suelos contaminados con metales pesados.
-
O copiar el link