
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)

Todos los Artículos

  • Vol. 2025, 43(1)
  • Artículo de Revisión

Tobamovirus fructirugosum una enfermedad emergente: revisión y situación actual en México

PorUbilfrido Vásquez Gutiérrez, Juan Carlos Delgado Ortiz*, Gustavo Alberto Frías Treviño, Luis Alberto Aguirre Uribe, Alberto Flores Olivas

Recibido: 28/enero/2024 – Publicado: 15/octubre/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2401-7

Resumen Antecedentes/Objetivo. La especie Tobamovirus fructirugosum (ToBRFV) es considerado una plaga cuarentenaria a nivel mundial que limita la producción de Solanum lycopersicum y Capsicum annum, actualmente presente en tres países del continente americano. El objetivo de este trabajo fue profundizar en la variabilidad genética del ToBRFV con respecto a los diversos aislados, la caracterización físico-molecular y sintomática, los métodos tradicionales y más actuales implementadas para el diagnóstico, rango de hospedantes reservorios del virus, y la epidemiología. Resultados. ToBRFV se generó de una mutación resultado de la recombinación genética con TMV, considerado principal progenitor y ToMMV progenitor secun¬dario. Análisis filogenéticos reportan la existencia de cinco clados con respecto a la diversidad genética del ToBRFV. Los primeros cebadores para la detección se diseñaron en 2015 que codifican proteínas de replicación, movimiento y cápside. Los métodos serológicos pueden ser utilizados para un diagnóstico preventivo, mientras que las moleculares y NGS pueden confirmar la infección por el virus aún en bajas concentraciones en la planta. Se reportan 16 familias de malezas y cultivos hospedantes, registrados en 47 países. Para lograr una estrategia efectiva, es necesario disminuir las fuentes de inóculo, desarrollar compuestos inhibidores de la transmisión mecánica y el desarrollo de genotipos tolerantes. Conclusión. ToBRFV está distribuido a nivel nacional, y representa un riesgo fitosanitario para México; el análisis exhaustivo del estudio de técnicas de diagnóstico, rango de hospedantes, diseminación, epidemiología y estrategias de control, contribuye al conocimiento del ToBRFV.

Mostrar Figuras y/o Cuadros
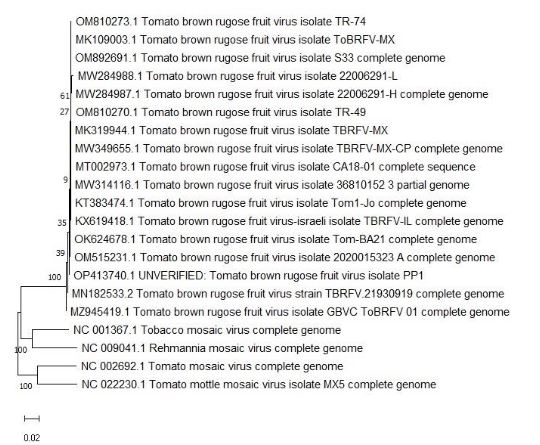
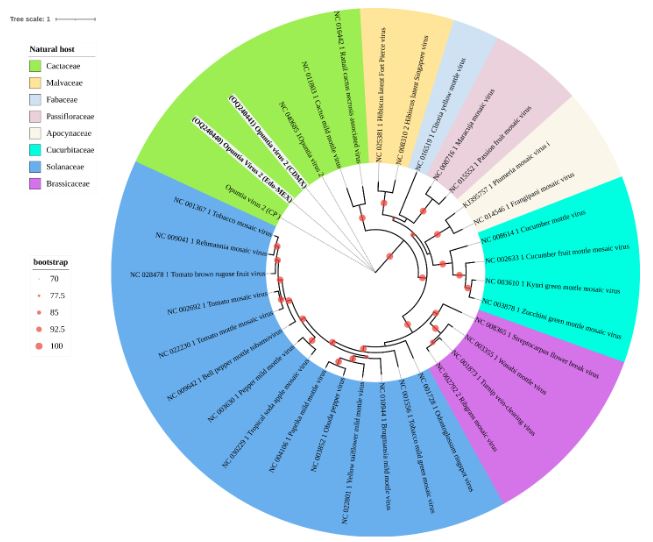
Figura 1. Análisis filogenéticos de secuencias reportadas en el NCBI de ToBRFV. Para la reconstrucción del árbol filogenético se utilizó el software Molecular Evolutionary Genetics Analysis version 11 mediante el modelo de Neighbor joining con 10,000 réplicas (Bootstrap). Con una distancia genética de 0.02.
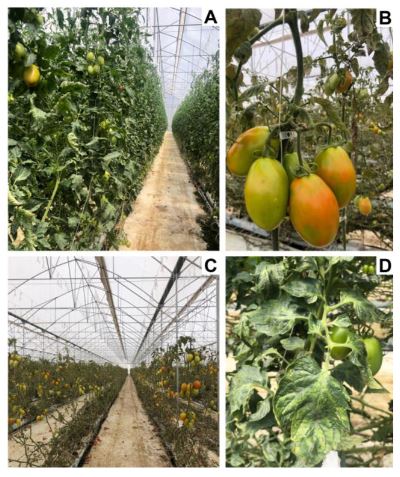
Figura 2. Síntomas manifestados en jitomate por ToBRFV cultivados en invernadero. A) Plantas de jitomate a 180 días de la siembra mostrando alta incidencia de ToBRFV; B) Irregularidades en la maduración de los frutos; C) Plantas en estado de colapso debido a la severidad alta de ToBRFV; D) Presencia de mosaicos, moteados y ampollamientos en las hojas.
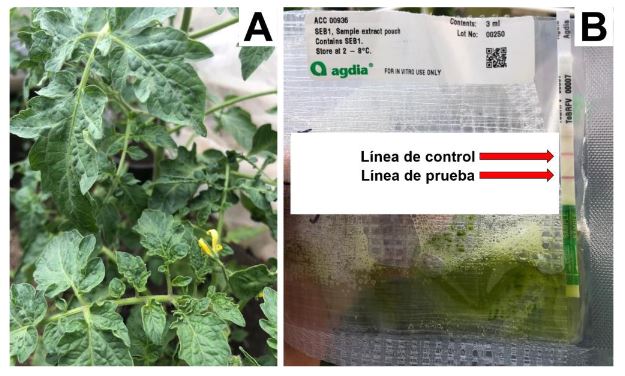
Figura 3. Procedimiento de detección rápida para ToBRFV con tiras inmunológicas Agdia®. A) selección de tejido sintomático (hojas jóvenes); B) Macerado y reacción positiva a ToBRFV, donde se observa la línea de control y la línea de prueba (ambas en color rojo)
  • Vol. 2024, 42(3)
  • Artículo Científico

Optimización de la temperatura y el tiempo de fermentación para la producción de un extracto antifúngico de Bacillus amyloliquefaciens B17

PorMaria Magdalena Rivera Salas, José Basilio Heredia, Juan Manuel Tovar Pedraza, Cesar San Martín Hernández, José Benigno Valdez Torres, Isabel Cruz Lachica, Raymundo Saúl García Estrada*

Recibido: 22/mayo/2024 – Publicado: 23/agosto/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-11

Resumen Antecedentes/Objetivo. Actualmente, las especies del género Bacillus están ganando interés debido a su capacidad para producir metabolitos secundarios con propiedades antifúngicas contra diversos hongos fitopatógenos. El objetivo de este estudio fue optimizar la temperatura y el tiempo de fermentación para la producción de un extracto antifúngico de Bacillus amyloliquefaciens B17 y verificar su actividad contra Gilbertella persicaria, Choanephora cucurbitarum, Colletotrichum asianum y Botrytis cinerea.

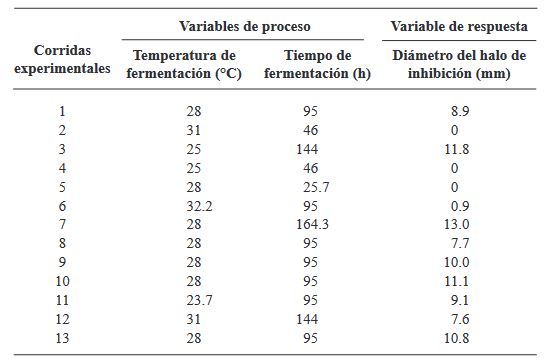
Materiales y Métodos. Se utilizó un diseño central compuesto (DCC) con dos factores y cinco niveles (temperatura de fermentación: 23.7, 25, 28, 31 y 32.2 °C y tiempo de fermentación: 25, 46, 95, 144 y 164.3 h). Trece combinaciones de temperatura y tiempo de fermentación se realizaron de manera aleatoria. Los trece extractos crudos de B. amyloliquefaciens B17 se obtuvieron, del caldo de fermentación libre de células, mediante precipitación ácida seguida de solubilización alcalina. La variable de respuesta fue el diámetro de los halos de inhibición generados al colocar gotas de los diferentes extractos crudos sobre el medio inoculado con una suspensión de esporas de Gilbertella persicaria.

Resultados. Las condiciones óptimas para la producción del extracto con mayor actividad antifúngica en B. amyloliquefaciens B17 fueron 26.8 °C y 158.6 h.

Conclusión. El extracto crudo optimizado de B. amyloliquefaciens B17 exhibió una gran capacidad para inhibir el crecimiento micelial y la germinación de esporas de Gilbertella persicaria, Choanephora cucurbitarum, Colletotrichum asianum y Botrytis cinerea.

Mostrar Figuras y/o Cuadros
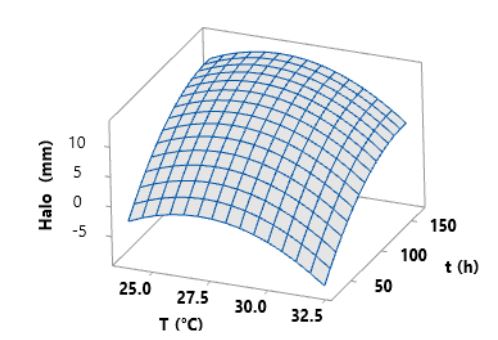
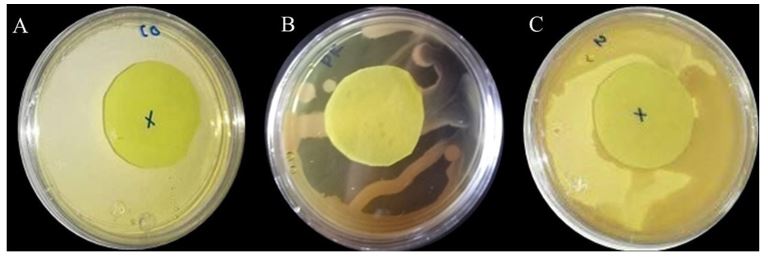
Figura 1. Gráfico de superficie de respuesta para el diámetro del halo de inhibición en función del tiempo y temperatura de fermentación.
Cuadro 1. Resultados experimentales de los halos de inhibición generadas por los extractos crudos de <em>B. amyloliquefaciens</em> obtenidos bajo diferentes condiciones de fermentación.
Cuadro 1. Resultados experimentales de los halos de inhibición generadas por los extractos crudos de B. amyloliquefaciens obtenidos bajo diferentes condiciones de fermentación.
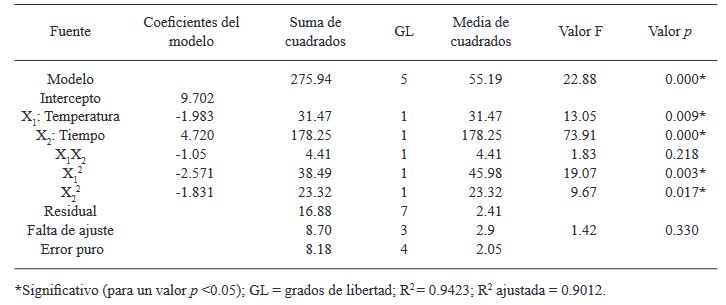
Cuadro 2. ANDEVA y análisis de regresión para la variable de respuesta (diámetro del halo de inhibición) generado por los extractos crudos de <em>B. amyloliquefaciens</em> obtenidos bajo diferentes condiciones de fermentación.
Cuadro 2. ANDEVA y análisis de regresión para la variable de respuesta (diámetro del halo de inhibición) generado por los extractos crudos de B. amyloliquefaciens obtenidos bajo diferentes condiciones de fermentación.
  • Vol. 2024, 42(3)
  • Nota Fitopatológica

Caracterización del viroma en haba: Primera detección de Potyvirus phaseoluteum y Orthotospovirus impatiensnecromaculae en Montecillo, Texcoco, México

PorErick Ortega Piña, Daniel Leobardo Ochoa Martínez*, Reyna Isabel Rojas Martínez, Alfredo Díaz Lara

Recibido: 15/febrero/2024 – Publicado: 12/agosto/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2402-8

Resumen Antecedentes/Objetivo. En cultivos de haba (Vicia faba) establecidos en Montecillo, Texcoco, Estado de México se observó un 100 % de plantas con síntomas de virosis consistentes en mosaico, moteado, enrollamiento de hojas, marchitamiento y un decremento notable en el desarrollo de las plantas. Estos síntomas condujeron a una reducción significativa en el rendimiento y calidad de las semillas. En este contexto, se realizó el presente estudio con el objetivo de identificar las especies virales asociadas con estos síntomas.

Materiales y Métodos. La estrategia experimental consistió en extracción de ARN total de hojas manifestando los síntomas mencionados, seguido de secuenciación de nueva generación.

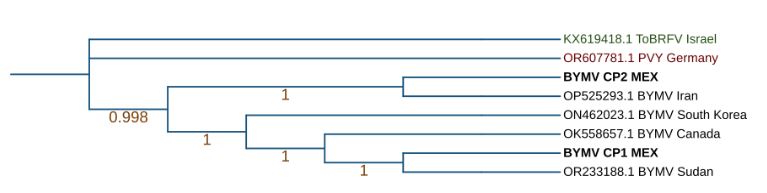
Resultados. En los resultados se obtuvieron los genomas completos de Orthotospovirus impatiensnecromaculae (antes impatiens necrotic spot virus) y de dos aislamientos del Potyvirus phaseoluteum (antes bean yellow mosaic virus). El análisis filogenético reveló que el aislamiento de O. impatiensnecromaculae (INSV CPMEX) muestra divergencias significativas respecto a los previamente reportados en otras especies vegetales. Por otro lado, los dos aislamientos de P. phaseoluteum (BYMV CP1MEX y BYMV CP2MEX) demostraron ser distintos entre sí, estando relacionados con aislamientos reportados en Sudán e Irán.

Conclusión. Este hallazgo sugiere una diversidad genética considerable entre los virus asociados a los síntomas de virosis en cultivos de haba en la región, lo que subraya la importancia de una identificación precisa para el manejo y control de estas infecciones virales

Mostrar Figuras y/o Cuadros
Cuadro 1. Cebadores diseñados para la corroboración de la presencia de <em>Potyvirus phaseoluteum</em> (Pp) y <em>Orthotospovirus impatiensnecromaculae</em> (Oi) en tejido foliar de haba con síntomas de mosaico, moteado, enrollamiento foliar, marchitamiento y disminución del crecimiento
Cuadro 1. Cebadores diseñados para la corroboración de la presencia de Potyvirus phaseoluteum (Pp) y Orthotospovirus impatiensnecromaculae (Oi) en tejido foliar de haba con síntomas de mosaico, moteado, enrollamiento foliar, marchitamiento y disminución del crecimiento
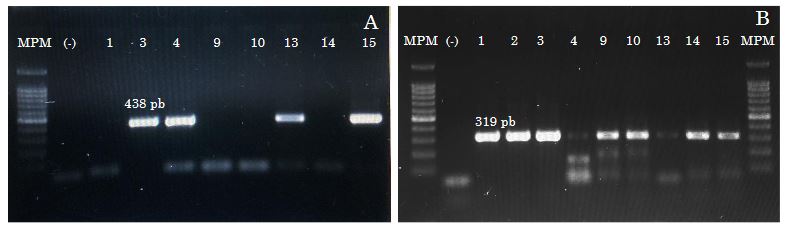
Figura 1. Detección de <em>Orthotospovirus impatiensnecromaculae</em> y <em>Potyvirus phaseoluteum</em> en plantas de haba mediante RT-PCR. A) Producto de RT-PCR de un fragmento de 438 pb del segmento L que codifica la replicasa viral de <em>O. impatiensne cromaculae</em>: MPM= Marcador de peso molecular 100 pb PROMEGA, control negativo (-). Carriles 1, 3, 4, 9, 10, 13, 14 y 15 muestras de plantas de haba con síntomas de mosaico, moteado, enrollamiento y marchitamiento. B) Producto de RT-PCR de un fragmento de 319 pb del ORF del P. phaseoluteum que codifica para la nucleocápside: MPM= Marcador de peso molecular 100 pb PROMEGA, control negativo (-). Carriles 1, 2, 3, 4, 9, 10, 13, 14 y 15 plantas de haba con síntomas de mosaico, moteado, enrollamiento y marchitamiento. Las secuencias de los amplicones obtenidos tuvieron un 99% de cobertura y 99 % de identidad con aislados de <em>P. phaseoluteum</em> y <em>O. impatiensnecromaculae</em> depositados en el GenBank, respectivamente
Figura 1. Detección de Orthotospovirus impatiensnecromaculae y Potyvirus phaseoluteum en plantas de haba mediante RT-PCR. A) Producto de RT-PCR de un fragmento de 438 pb del segmento L que codifica la replicasa viral de O. impatiensne cromaculae: MPM= Marcador de peso molecular 100 pb PROMEGA, control negativo (-). Carriles 1, 3, 4, 9, 10, 13, 14 y 15 muestras de plantas de haba con síntomas de mosaico, moteado, enrollamiento y marchitamiento. B) Producto de RT-PCR de un fragmento de 319 pb del ORF del P. phaseoluteum que codifica para la nucleocápside: MPM= Marcador de peso molecular 100 pb PROMEGA, control negativo (-). Carriles 1, 2, 3, 4, 9, 10, 13, 14 y 15 plantas de haba con síntomas de mosaico, moteado, enrollamiento y marchitamiento. Las secuencias de los amplicones obtenidos tuvieron un 99% de cobertura y 99 % de identidad con aislados de P. phaseoluteum y O. impatiensnecromaculae depositados en el GenBank, respectivamente
Figura 2. Árbol filogenético de los aislados de <em>Potyvirus phaseoluteum</em> CP1MEX y BYMV CP2MEX utilizando el modelo General-Time-Reversible y el método de máxima verosimilitud con 500 repeticiones de bootstrap.
Figura 2. Árbol filogenético de los aislados de Potyvirus phaseoluteum CP1MEX y BYMV CP2MEX utilizando el modelo General-Time-Reversible y el método de máxima verosimilitud con 500 repeticiones de bootstrap.
  • Vol. 2024, 42(3)
  • Artículo Científico

Uniformidad en el desarrollo de brotes en injertos de aguacate y su importancia para establecer niveles de resistencia indirecta a Phytophthora cinnamomi

PorYeison David López Galé*, Mauricio Fernando Martínez, Lizeth Paola Palacios Joya, Nubia Murcia Riaño, Mario Augusto García Dávila

Recibido: 22/noviembre/2023 – Publicado: 08/agosto/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2311-1

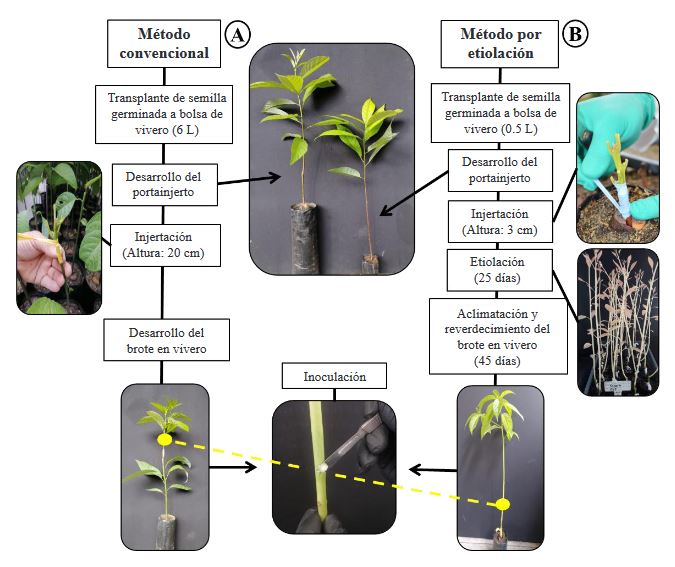
Resumen Antecedentes/Objetivo. El nivel de resistencia a Phytophthora cinnamomi en germoplasma de aguacate puede ser evaluado de forma indirecta a través de la inoculación del patógeno por herida al tallo. El objetivo de este trabajo fue comparar el método de desarrollo convencional de injertos y el método de injertos etiolados para determinar niveles de resistencia indirecta a P. cinnamomi a través de la técnica de inoculación por herida al tallo.

Materiales y Métodos. En el estudio, se utilizaron tres aislamientos de P. cinnamomi y dos genotipos de aguacate con diferente nivel de resistencia al pató geno, Duke-7 (medianamente resistente) y Hass (susceptible). La multiplicación clonal de los genotipos se realizó con yemas injertadas sobre portainjertos propagados por semillas de aguacate antillano. La inoculación fue realizada en el brote a la altura de 8 cm y el crecimiento de las lesiones se midieron durante 24 días. Con los datos, se determinó el Área Bajo la Curva del Progreso de la Enferme dad (ABCPE) y el Coeficientes de Variación (CV). La información fue analiza da con un diseño experimental completamente al azar con arreglo factorial 2*2*3 (Método*Genotipo*Aislamiento).

Resultados. El análisis de varianza para el ABCPE no mostró diferencias entre métodos (p=0.1881); sin embargo, se presentaron diferencias entre genotipos, aislamientos y entre las interacciones genotipo*método y genotipo*aislamiento (p≤0.05). Con el método convencional, el desarrollo de los brotes fue tardío (141- 159 días) y el tamaño de las lesiones fue altamente variable (CV=38.9-64.4 %). Los brotes etiolados y reverdecidos en vivero, por el contrario, presentaron rápido crecimiento (101-107 días) y mayor uniformidad en las lesiones generadas por el patógeno (CV=11.1-24.2 %), lo que permitió discriminar niveles de resistencia entre genotipos, así como grados de agresividad entre aislamientos.

Conclusión. El desarrollo de brotes etiolados en injertos de aguacate se propone como un método alternativo rápido que puede garantizar mayor uniformidad en el desarrollo de lesiones dentro de las unidades experimentales de un tratamiento, logrando de esta manera mayor confiabilidad al momento de evaluar y seleccionar de forma preliminar genotipos de aguacate con atributos de resistencia indirecta a P. cinnamomi.

Mostrar Figuras y/o Cuadros
Figura 1. Proceso de propagación y desarrollo de brotes en injertos de aguacate. A) Método convencional de desarrollo de injertos, B) método de desarrollo de injertos etiolados. Los puntos y líneas amarillas indican la ubicación en donde se realizó la herida e inoculación de <em>P. cinnamomi</em>
Figura 1. Proceso de propagación y desarrollo de brotes en injertos de aguacate. A) Método convencional de desarrollo de injertos, B) método de desarrollo de injertos etiolados. Los puntos y líneas amarillas indican la ubicación en donde se realizó la herida e inoculación de P. cinnamomi
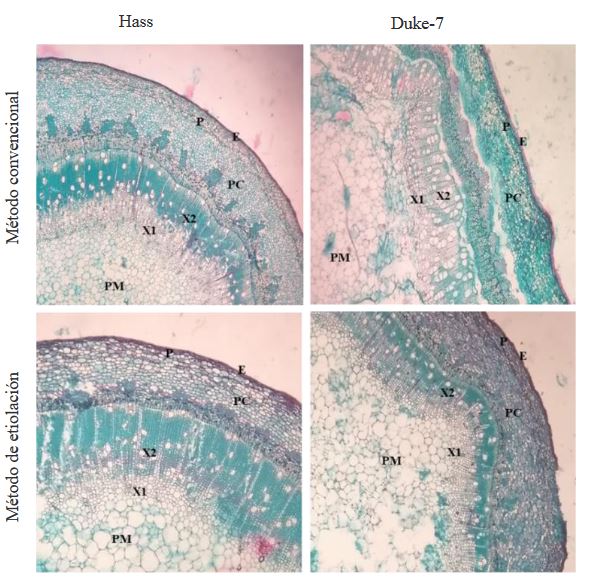
Figura 2. Micrografías de cortes histológicos de tallos de aguacate Hass y Duke-7 desarrollados por el método convencional y por el método de etiolación (40X). (PM) Parénquima medular, (X1) xilema primario, (X2) xilema secundario, (PC) parénquima cortical, (P) peridermis, (E) epidermis.
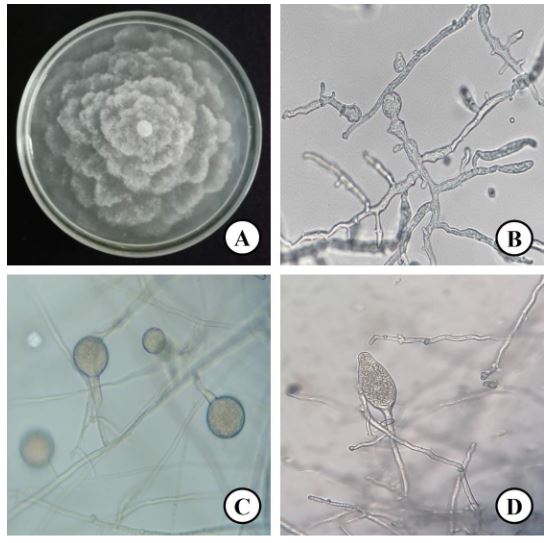
Figura 3. Características macroscópicas y microscópicas del aislamiento A-Ag- 041 de <em>P. cinnamomi</em>. (A) Crecimiento de colonia en medio de cultivo PDA, (B) micelio (hifas), (C) clamidosporas, (D) esporangio.
Figura 3. Características macroscópicas y microscópicas del aislamiento A-Ag- 041 de P. cinnamomi. (A) Crecimiento de colonia en medio de cultivo PDA, (B) micelio (hifas), (C) clamidosporas, (D) esporangio.
  • Vol. 2024, 42(3)
  • Artículo de Revisión

Infecciones virales mixtas en cultivos de hortalizas: aspectos bioquímicos y moleculares

PorMario Sánchez Sánchez, Irasema Vargas Arispuro, Juan Manuel Tovar Pedraza, Cristóbal González Pérez Pedraza, Emmanuel Aispuro Hernández, Eber Addí Quintana Obregón, Miguel Ángel Martínez Téllez*

Recibido: 05/abril/2024 – Publicado: 06/agosto/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2404-3

Resumen Las infecciones virales mixtas se refieren a la coinfección de dos o más virus en la planta, que regularmente provocan síntomas exacerbados en hojas y frutos. La dinámica de las coinfecciones puede seguir una interacción sinérgica, antagónica o neutral que afecta la gravedad de los síntomas y la infección. Las infecciones virales mixtas ocurren debido a la convergencia de características fundamentales revisadas en este manuscrito. La interrelación virus-planta huésped influye en el establecimiento y los patrones de propagación de infecciones virales mixtas. Se debe prestar atención a los posibles cambios en la dinámica de transmisión y prevalencia de enfermedades virales de las plantas debido al efecto de alteraciones antropogénicas y naturales en sistemas agroecológicos complejos o sus componentes, incluidos huéspedes, reservorios, vectores, nichos ecológicos y la aparición de nuevas cepas de virus.

Mostrar Figuras y/o Cuadros
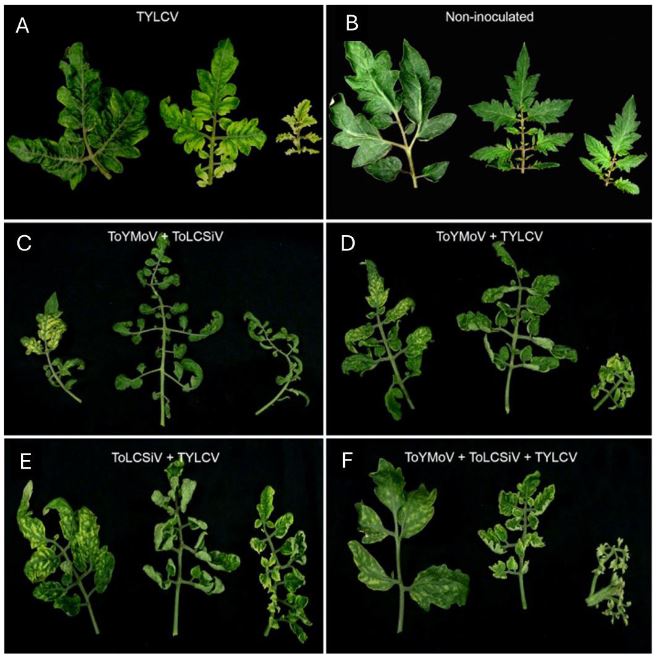
Figura 1. Transición de síntomas en las hojas inferiores, medias y superiores de plantas de tomate agroinoculadas con los componentes de ADN-A y DNA-B de clones infecciosos de aislados de TYLCV (ToYMoV-[CR:Gre:GR1:90]), y Tomato leaf curl Sinaloa virus (ToLCSiV-[CR:Lib:L1:02]) de Costa Rica y un clon infeccioso del ADN genó mico de TYLCV de la República Dominicana (TYLCV-[DO]) de forma individual o en todas las combinacio nes. (A) TYLCV; (B) planta de tomate no inoculada; (C) ToYMoV y ToLCSiV; (D) ToYMoV y TYLCV; (E) ToLCSiV y TYLCV; (F) ToYMoV, ToLCSiV y TYLCV. Las plantas fueron fotografiadas 21 días después de la agroinoculación (con el permiso de Maliano <em>et al.,</em> 2022)
Figura 1. Transición de síntomas en las hojas inferiores, medias y superiores de plantas de tomate agroinoculadas con los componentes de ADN-A y DNA-B de clones infecciosos de aislados de TYLCV (ToYMoV-[CR:Gre:GR1:90]), y Tomato leaf curl Sinaloa virus (ToLCSiV-[CR:Lib:L1:02]) de Costa Rica y un clon infeccioso del ADN genó mico de TYLCV de la República Dominicana (TYLCV-[DO]) de forma individual o en todas las combinacio nes. (A) TYLCV; (B) planta de tomate no inoculada; (C) ToYMoV y ToLCSiV; (D) ToYMoV y TYLCV; (E) ToLCSiV y TYLCV; (F) ToYMoV, ToLCSiV y TYLCV. Las plantas fueron fotografiadas 21 días después de la agroinoculación (con el permiso de Maliano et al., 2022)
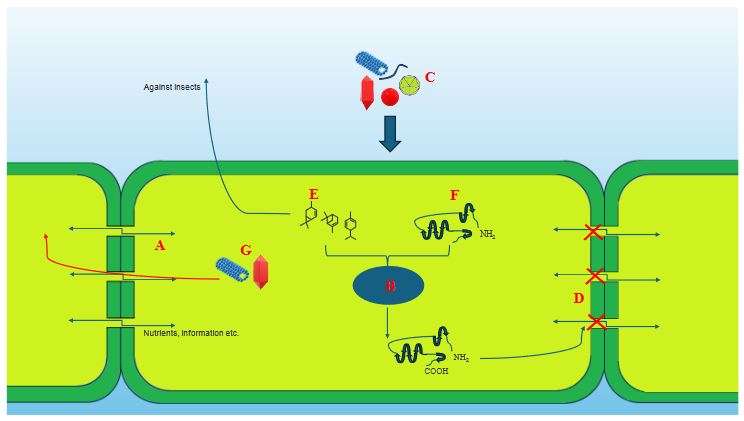
Figura 2. Componentes vegetales involucrados en las infecciones virales mixtas. El proceso normal de comunicación entre las células vegetales de las plantas implica la interrelación de estructuras tales como los plasmodesmos (A) y el núcleo (B); los primeros se encuentran en las paredes celulares que permiten el pasaje de moléculas en el citoplasma. En presencia de una infección viral (C), la célula contrarresta la acción mediante vías bioquímicas bien definidas, como la inhibición de la función de los plasmodesmos y el tráfico intracelular (D), la producción de metabolitos de respuesta específica (que pueden ocurrir antes o durante el desarrollo de la infección viral), (E) o el aumento en la producción de proteínas involucradas en los procesos de desintoxicación (F). Por otro lado, después de una internalización exitosa por dos virus, ocurre un efecto sinérgico de la infección viral mixta (G)
  • Vol. 2024, 42(3)
  • Artículo de Revisión

Sclerotinia sclerotiorum en frijol y papa en Sinaloa: Etiología, epidemiología y alternativas de manejo

PorRubén Félix Gastélum*, Gabriel Herrera Rodríguez, Norma Ávila Alistac, Elizabeth León

Recibido: 22/abril/2024 – Publicado: 06/agosto/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2404-6

Resumen El moho blanco (Sclerotinia sclerotiorum) es la principal enfermedad del frijol y de la papa en Sinaloa. Se describen los síntomas y signos de la enfermedad, las características culturales y morfológicas del teleomorfo del patógeno, su ecología y la epidemiología de la enfermedad. Se aborda la implementación de un sistema de predicción que contempla la germinación carpogénica de los esclerocios y la fenología del frijol y de la papa para el manejo de la enfermedad. Dicho sistema incluye la temperatura del suelo a 2.5 cm de profundidad y la floración en dichos cultivos. Una vez que en el suelo ocurren temperaturas de 13 a 19 °C e inicia la floración en los cultivos, se realiza la primera aplicación preventiva de fungicida sintético contra la enfermedad. Estudios de laboratorio indicaron que Trichoderma harzianum, T. viride y T. atroviride ejercen inhibición in vitro contra S. sclerotiorum y controlaron el moho blanco en campo, pues hubo un incremento en el rendimiento de 40 %, con respecto a las parcelas que se aplicaron con el fungicida fluazinam. Se proponen nuevas líneas de investigación enfocadas a la ecología del patógeno y al manejo de la enfermedad donde se incluyan estos hongos benéficos en el sistema de predicción.

Mostrar Figuras y/o Cuadros
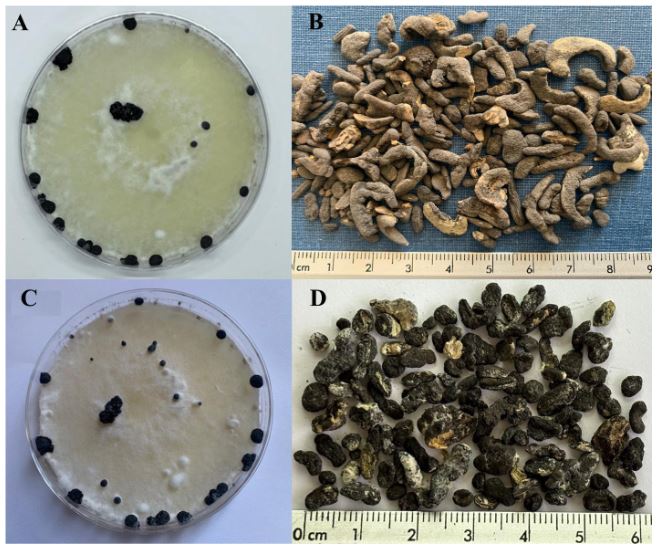
Figura 1. Crecimiento micelial y esclerocios de <em>Sclerotinia sclerotiorum</em>. A). Crecimiento del hongo obtenida de frijol y esclerocios en doble círculo en caja de Petri con PDA; B). Esclerocios de color café claro producidos en plantas de frijol en campo; C). Crecimiento del hongo obtenido de planta de papa con esclerocios dispersos en caja de Petri con PDA; D). Esclerocios color negro producidos en plantas de papa en campo
Figura 1. Crecimiento micelial y esclerocios de Sclerotinia sclerotiorum. A). Crecimiento del hongo obtenida de frijol y esclerocios en doble círculo en caja de Petri con PDA; B). Esclerocios de color café claro producidos en plantas de frijol en campo; C). Crecimiento del hongo obtenido de planta de papa con esclerocios dispersos en caja de Petri con PDA; D). Esclerocios color negro producidos en plantas de papa en campo
  • Vol. 2024, 42(3)
  • Artículo Científico

Valorización del nejayote como medio de cultivo para Pseudomonas fluorescens y producción de extractos antifúngicos

PorVíctor Manuel Rodríguez Romero, Ramón Villanueva Arce, Enrique Durán Páramo*

Recibido: 05/marzo/2024 – Publicado: 20/junio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-3

Resumen Antecedentes/Objetivo. El nejayote es un residuo agroindustrial alcalino que se genera a partir del proceso de nixtamalización del maíz. El propósito de este trabajo fue demostrar que el nejayote puede ser utilizado como medio de cultivo para el crecimiento de Pseudomonas fluorescens NR113647 y para la producción de metabolitos con actividad antifúngica para el manejo sustentable de Aspergillus niger, Botrytis cinerea y Fusarium solani.

Materiales y Métodos. Se formularon medios de cultivo con nejayote y nejayote con glicerol, con pH 6 y 12. La biomasa bacteriana fue separada por centrifugación y filtración y se determinó la capacidad antifúngica in vitro de los extractos contra A. niger, B. cinerea y F. solani. Además, se realizó la determinación de los metabolitos presentes en los extractos. P. fluorescens NR113647 fue capaz de crecer en todos los medios.

Resultados. Los extractos provenientes de nejayote a pH 12 mostraron inhibición del crecimiento de todos los hongos evaluados; se identificaron al menos cinco metabolitos producidos por P. fluorescens NR113647 involucrados en el biocontrol de fitopatógenos.

Conclusión. El nejayote puede ser usado como medio de cultivo para P. fluorescens NR113647, para la producción de biomasa y metabolitos secundarios con capacidad antifúngica; además, el nejayote podría usarse para el cultivo de otros microorganismos.

Mostrar Figuras y/o Cuadros
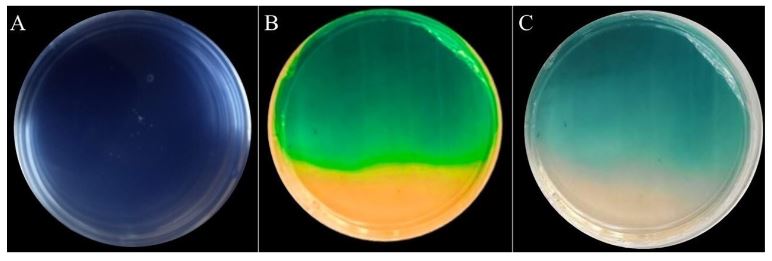
Figura 1. Identificación de la producción de cianuro de hidrógeno en placa de Petri. Testigo negativo de agua destilada (A), extractos libres de células de <em>P. fluorescens</em> NR113647 en medio KB6 (B) y extractos libres de células de <em>P. fluorescens</em> NR113647 en medio N12 (C).
Figura 1. Identificación de la producción de cianuro de hidrógeno en placa de Petri. Testigo negativo de agua destilada (A), extractos libres de células de P. fluorescens NR113647 en medio KB6 (B) y extractos libres de células de P. fluorescens NR113647 en medio N12 (C).
Figura 2. Identificación de sideróforos, placa de Petri con agua destilada estéril como testigo (A) y extractos libres de células de <em>P. fluorescens</em> NR113647 (B) (Trejo-Raya <em>et al.,</em> 2021) y extractos libres de células de <em>P. fluorescens</em> NR113647 en medio N12 (C)
Figura 2. Identificación de sideróforos, placa de Petri con agua destilada estéril como testigo (A) y extractos libres de células de P. fluorescens NR113647 (B) (Trejo-Raya et al., 2021) y extractos libres de células de P. fluorescens NR113647 en medio N12 (C)
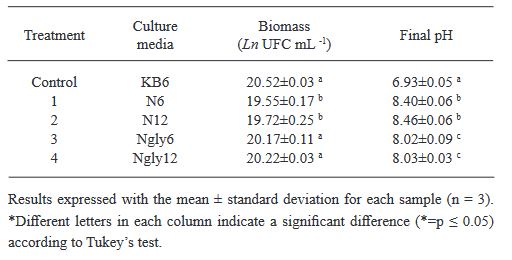
Cuadro 1. Evaluación del crecimiento de <em>P. fluorescens</em> NR113647 y valores de pH de los distintos tratamientos después de 72 h de incubación
Cuadro 1. Evaluación del crecimiento de P. fluorescens NR113647 y valores de pH de los distintos tratamientos después de 72 h de incubación
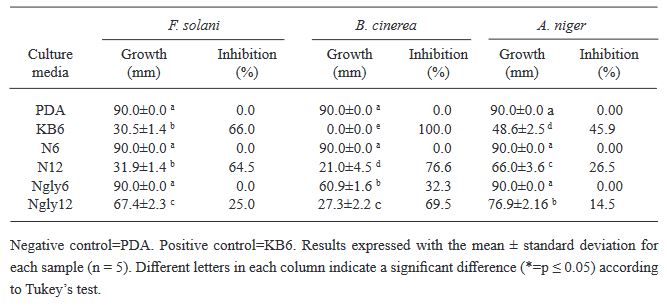
Cuadro 2. Evaluación del efecto antifúngico de los extractos obtenidos de <em>P. fluorescens</em> NR113647, sobre el crecimiento micelial y la inhibición de <em>Fusarium solani</em>, <em>Botrytis cinerea</em> y <em>Aspergillus niger</em>.
Cuadro 2. Evaluación del efecto antifúngico de los extractos obtenidos de P. fluorescens NR113647, sobre el crecimiento micelial y la inhibición de Fusarium solani, Botrytis cinerea y Aspergillus niger.
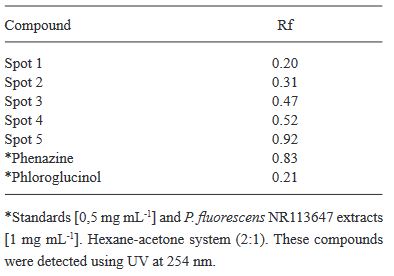
Cuadro 3. Factores de retención de los extractos de <em>P. fluorescens</em> NR113647 obtenidos del tratamiento N12, comparación contra compuestos estándar.
Cuadro 3. Factores de retención de los extractos de P. fluorescens NR113647 obtenidos del tratamiento N12, comparación contra compuestos estándar.
  • Vol. 2024, 42(3)
  • Nota Fitopatológica

Hoja pequeña de Bocconia frutescens, nueva enfermedad asociada a una raza relacionada a ‘Candidatus Phytoplasma pruni’ en Costa Rica

PorWilliam Villalobos Muller, Laura Garita Salazar, Ana María Conejo Salazar, Izayana Sandoval Carvajal, Mauricio Montero Astúa, Lisela Moreira Carmona*

Recibido: 05/marzo/2024 – Publicado: 20/junio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2403-1

Resumen Antecedentes/Objetivo. Bocconia frutescens (Papaveraceae) es un árbol pequeño, distribuido naturalmente desde México hasta Argentina y en la cuenca del Caribe. Árboles de Bocconia con síntomas semejantes a los inducidos por fitoplasmas, como hoja pequeña y escobas de bruja, fueron encontrados en la provincia de Cartago, Costa Rica. Detectar e identificar al posible fitoplasma asociado con dichos síntomas fue el objetivo de este estudio.

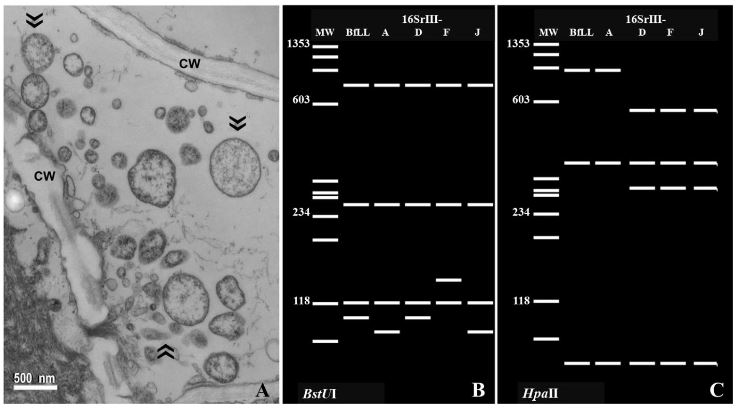
Materiales y Métodos. Se evaluó tejido foliar empleando microscopia electrónica de transmisión (TEM), PCR anidada empleando cebadores universales y específicos para amplificar los genes ARNr 16S, y secA de fitoplasmas. Las secuencias nucleotídicas (método Sanger) obtenidas de los amplicones, se emplearon para BLASTn, análisis filogenéticos y RFLP’s in silico.

Resultados. La presencia de fitoplasmas en el tejido del floema se observó mediante TEM solamente en los árboles sintomáticos. Los diferentes análisis con las secuencias parciales (genes 16Sr y secA) indicaron la presencia de una cepa relacionada al Candidatus Phytoplasma pruni en las muestras evaluadas.

Conclusión. Fitoplasmas se encontraron sólo en los árboles sintomáticos de Bocconia evaluados. Los fitoplasmas se identificaron como una cepa relacionada al ´Ca. Phytoplasma pruni´. Este es el primer reporte de B. frutescens como un hospedero natural de Ca . Phytoplasma pruni.

Mostrar Figuras y/o Cuadros
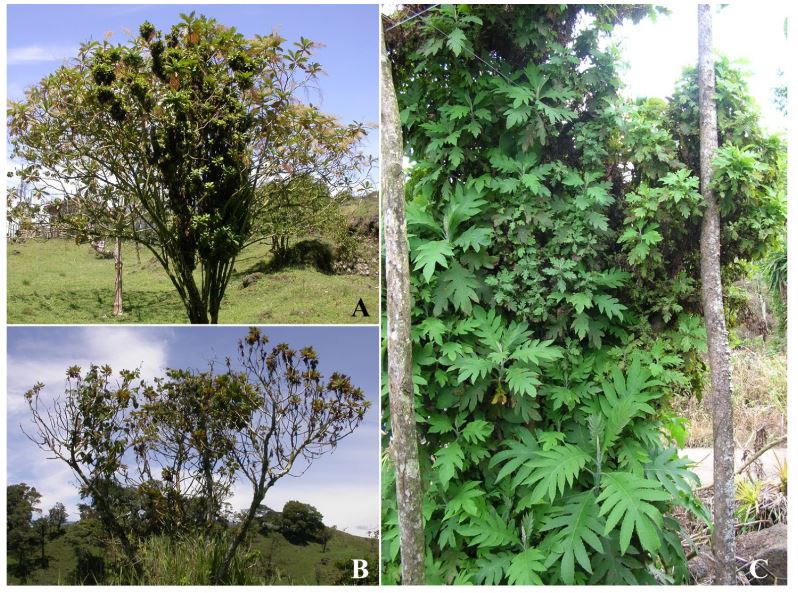
Figura 1. Árboles de <em>Bocconia frutescens</em> (Papaveraceae) con síntomas asociados a fitoplasmas observados en la provincia de Cartago, Costa Rica; A) “escobas de bruja” (“witches’-broom”) y racimos de hojas pequeñas observados en algunas ramas; B) “Escoba de bruja”, defoliación y muerte descendente; C) Detalle de la brotación axilar múltiple con hojas de reducido tamaño
Figura 1. Árboles de Bocconia frutescens (Papaveraceae) con síntomas asociados a fitoplasmas observados en la provincia de Cartago, Costa Rica; A) “escobas de bruja” (“witches’-broom”) y racimos de hojas pequeñas observados en algunas ramas; B) “Escoba de bruja”, defoliación y muerte descendente; C) Detalle de la brotación axilar múltiple con hojas de reducido tamaño
Figura 2. A) Cuerpos pleomórficos de fitoplasmas (») encontrados en el floema de árboles de <em>Bocconia frutescens</em> con síntomas de hoja pequeña y “escobas de bruja”, observados en la provincia de Cartago, Costa Rica. CW = pared celular; B y C) Perfiles de los RFLPs virtuales obtenidos en el iPhyClassifier del fragmento 16Sr F2/R2n del fitoplasma asociado a la hoja pequeña en B. frutescens (BfLL, GenBank Acc. No. PP353584) usando BstUI (C) y HpaII. (D). Fragmentos (pb) del marcador de peso molecular (MW): 1353, 1078, 872, 603, 310, 281, 271, 234, 194, 118, 72.
Figura 2. A) Cuerpos pleomórficos de fitoplasmas (») encontrados en el floema de árboles de Bocconia frutescens con síntomas de hoja pequeña y “escobas de bruja”, observados en la provincia de Cartago, Costa Rica. CW = pared celular; B y C) Perfiles de los RFLPs virtuales obtenidos en el iPhyClassifier del fragmento 16Sr F2/R2n del fitoplasma asociado a la hoja pequeña en B. frutescens (BfLL, GenBank Acc. No. PP353584) usando BstUI (C) y HpaII. (D). Fragmentos (pb) del marcador de peso molecular (MW): 1353, 1078, 872, 603, 310, 281, 271, 234, 194, 118, 72.
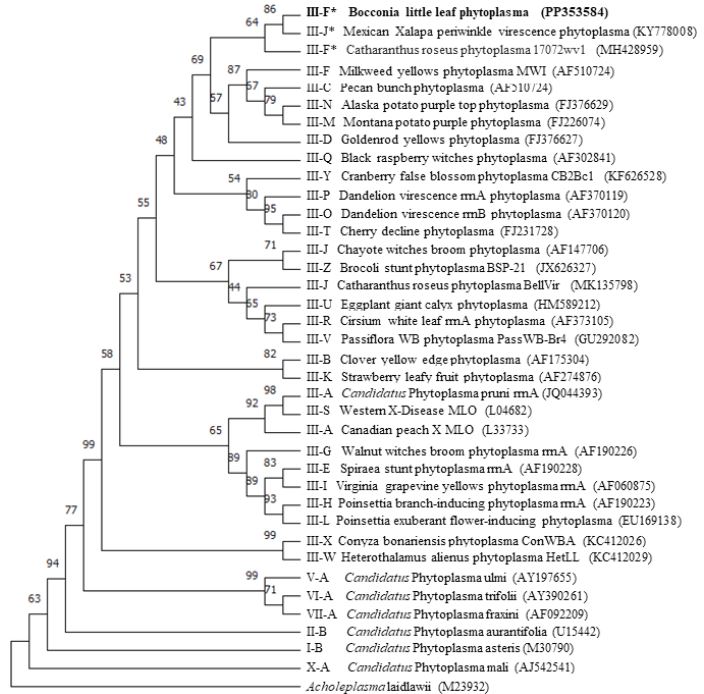
Figura 3. Dendrograma obtenido del análisis filogenético usando el método de Máxima Parsimonia en las secuencias parciales ARNr 16S del fitoplasma asociado a hoja pequeña de <em>Bocconia frutescens</em> (BfLL), 29 secuencias de razas del grupo 16SrIII, siete especies de ‘Ca. Phytoplasma´ y Acholeplasma laidlawii como grupo externo. El “bootstrap” seleccionado para la prueba fue de 1000 repeticiones. Los números de acceso en el GenBank para cada secuencia se muestran en paréntesis. El fitoplasma asociado a BfLL se resalta en negrita. * = nuevos subgrupos tentativamente
Figura 3. Dendrograma obtenido del análisis filogenético usando el método de Máxima Parsimonia en las secuencias parciales ARNr 16S del fitoplasma asociado a hoja pequeña de Bocconia frutescens (BfLL), 29 secuencias de razas del grupo 16SrIII, siete especies de ‘Ca. Phytoplasma´ y Acholeplasma laidlawii como grupo externo. El “bootstrap” seleccionado para la prueba fue de 1000 repeticiones. Los números de acceso en el GenBank para cada secuencia se muestran en paréntesis. El fitoplasma asociado a BfLL se resalta en negrita. * = nuevos subgrupos tentativamente
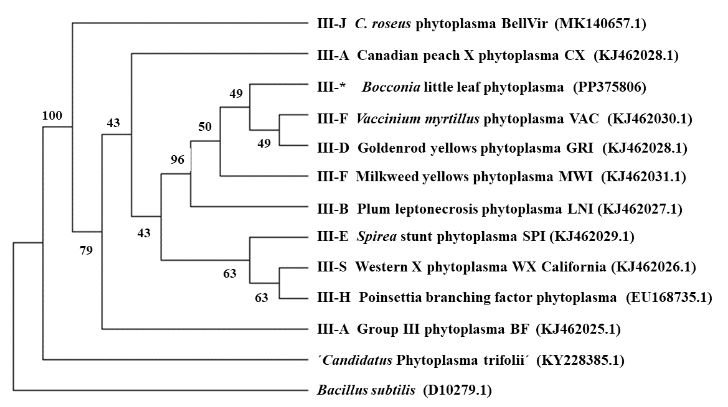
Figura 4. Dendrograma obtenido mediante el análisis filogenético con Máxima Parsimonia usando las secuencias parciales del gen secA del fitoplasma asociado a hoja pequeña de la <em>Bocconia frutescens</em>, diez secuencias de secA de diferentes subgrupos 16SrIII, ‘Ca. Phytoplasma trifolii´ y Bacilus subtilis (grupo externo). El “bootstrap” seleccionado fue de 1000 repeticiones. Los números de registro en GenBank para cada secuencia se muestran entre paréntesis. * = tentativamente nuevo subgrupo
Figura 4. Dendrograma obtenido mediante el análisis filogenético con Máxima Parsimonia usando las secuencias parciales del gen secA del fitoplasma asociado a hoja pequeña de la Bocconia frutescens, diez secuencias de secA de diferentes subgrupos 16SrIII, ‘Ca. Phytoplasma trifolii´ y Bacilus subtilis (grupo externo). El “bootstrap” seleccionado fue de 1000 repeticiones. Los números de registro en GenBank para cada secuencia se muestran entre paréntesis. * = tentativamente nuevo subgrupo
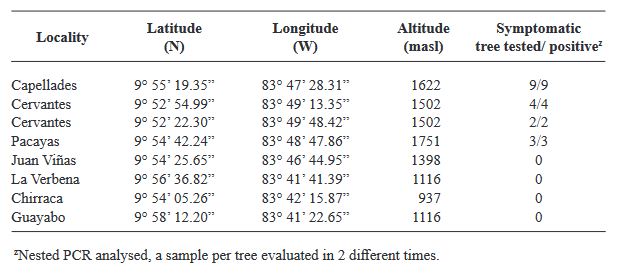
Cuadro 1. Localidades en la provincia de Cartago, Costa Rica, donde se observaron árboles de <em>Bocconia frutescens</em> con síntomas de hoja pequeña asociadas a fitoplasmas.
Cuadro 1. Localidades en la provincia de Cartago, Costa Rica, donde se observaron árboles de Bocconia frutescens con síntomas de hoja pequeña asociadas a fitoplasmas.
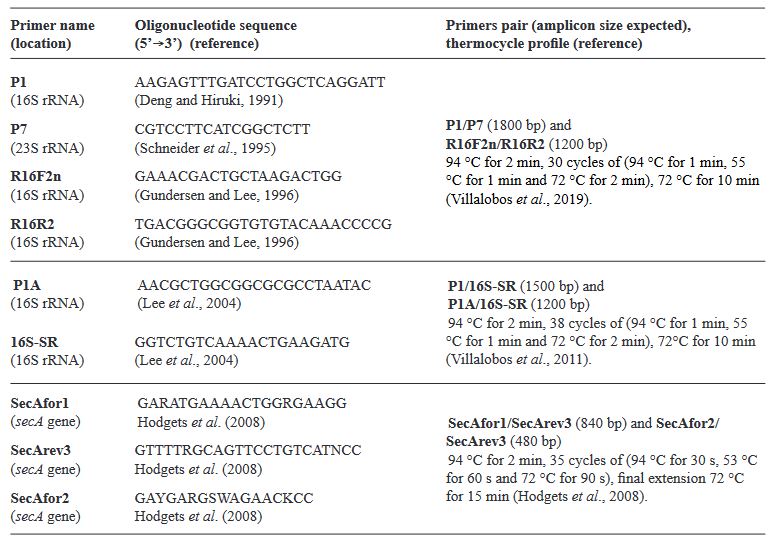
Cuadro 2. Datos sobre los oligonucleótidos (iniciadores) y perfiles térmicos empleados en este estudio para la detección de fitoplasmas mediante los genes ARNr 16S y la translocasa secA.
Cuadro 3. Regiones únicas de secuencias de oligonucleótidos (UOSRs, por sus siglas en inglés) en el gen ARNr 16S del <em>Candidatus Phytoplasma pruni</em> rrnA (JQ044393, Davis <em>et al.,</em> 2013) comparado a la secuencia 16Sr del fitoplasma asociado a BfLL (PP353584). La posición en la secuencia respectiva se muestra entre paréntesis, cada nucleótido correspondiente a un SNP se indica en los colores estándar para los nucleótidos del ADN, además se resalta y subraya
Cuadro 3. Regiones únicas de secuencias de oligonucleótidos (UOSRs, por sus siglas en inglés) en el gen ARNr 16S del Candidatus Phytoplasma pruni rrnA (JQ044393, Davis et al., 2013) comparado a la secuencia 16Sr del fitoplasma asociado a BfLL (PP353584). La posición en la secuencia respectiva se muestra entre paréntesis, cada nucleótido correspondiente a un SNP se indica en los colores estándar para los nucleótidos del ADN, además se resalta y subraya
  • Vol. 2024, 42(3)
  • Nota Fitopatológica

Identificación de fitoplasmas asociados al Bunchy Top de la papaya en Colima, México

PorPedro Valadez Ramírez, Daniel Leobardo Ochoa Martínez*, Guadalupe Valdovinos Ponce, Edith Blanco Rodríguez, Sergio Aranda Ocampo, Candelario Ortega Acosta, Marco Tulio Buenrostro Nava, Jetzajary Ayerim Rodríguez Barajas, Luis Rafael De la Torre Velázquez, Carlos Luis Leopardi Verde

Recibido: 05/marzo/2024 – Publicado: 18/junio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2403-2

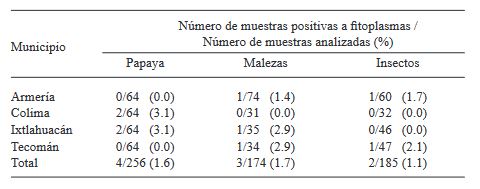
Resumen Antecedentes/Objetivo. Fitoplasmas, rickettsias y virus se han detectado en plantas de papaya con la enfermedad Bunchy Top (BT). En agroecosistemas de papaya ubicados en Colima, México, durante 2019 se observaron plantas con síntomas similares al BT. Con la finalidad de determinar la presencia de fitoplasmas e identificar las especies y/o subgrupos asociados a esta enfermedad, se recolectaron plantas asintomáticas y con síntomas en cuatro municipios productores del estado, así como malezas e insectos asociados al cultivo.

Materiales y Métodos. La detección e identificación de fitoplasmas se hizo a través de PCR, secuenciación y análisis filogenéticos de la subunidad SecA de la translocasa (secA) y 16S RNA ribosomal (16Sr), y PCR-RFLPs in vitro e in silico del gen 16Sr.

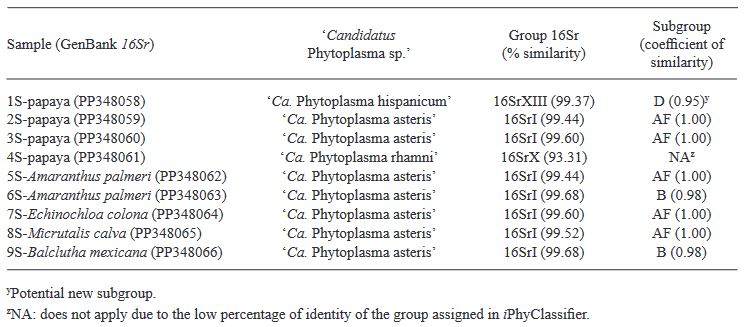
Resultados. En papaya se identificaron fitoplasmas de los grupos 16SrI (subgrupo AF), 16SrX y 16SrXIII, en el 2.08% (4 de 192) de las muestras con síntomas. Los resultados del análisis RFLPs in silico del gen 16Sr mostraron la presencia de los (sub)grupos 16SrX y 16SrXIII. En malezas e insectos, se identificaron fitoplasmas del grupo 16SrI (subgrupos AF y B) en el 1.7% (3 de 174) y 1.1% (2 de 185) de las muestras analizadas, respectivamente. Las malezas portadoras de fitoplasmas fueron Amaranthus palmeri y Echinochloa colona, mientras que los insectos fueron Micrutalis calva y Balclutha mexicana. Se reporta por primera vez la presencia de fitoplasmas 16SrI-AF, 16SrX y 16SrXIII en plantas de papaya con síntomas de Bunchy Top en agroecosistemas del estado de Colima, México. Los fitoplasmas de los grupos 16SrX y 16SrXIII se registran por primera vez a nivel mundial y en México en papaya, respectivamente. Las malezas e insectos portadores de fitoplasmas constituyen nuevos registros como reservorios naturales y potenciales vectores de las bacterias.

Mostrar Figuras y/o Cuadros
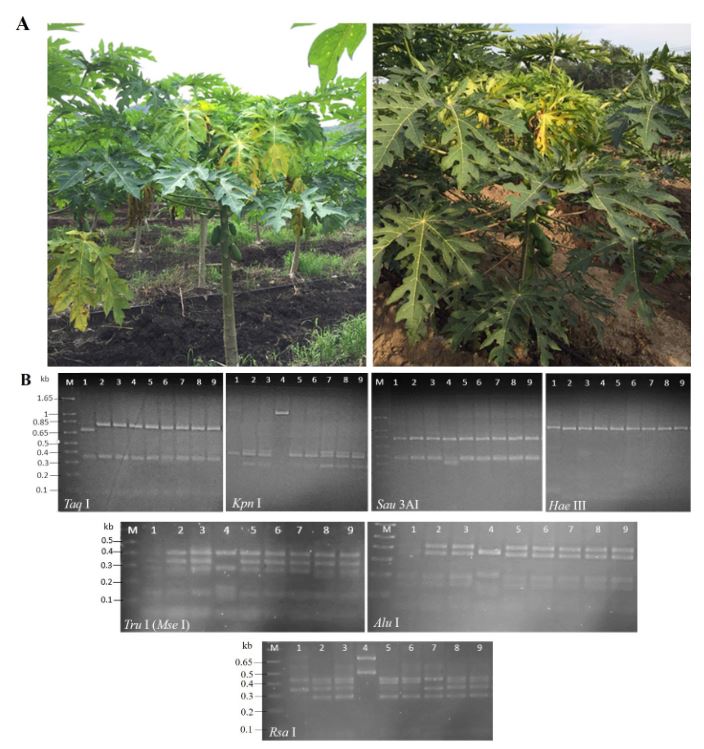
Figura 1. Detección de fitoplasmas en agroecosistemas de papaya con Bunchy Top en Colima, México. A) Plantas de papaya con tallos con acortamiento de entrenudos y hojas amarillas y cloróticas, positivas a fitoplasmas. B) Perfiles RFLPs <em>in vitro</em> del gen 16Sr (iniciadores R16F2n/R16R2) de los fitoplasmas en estudio. Carriles 1-4: muestras 1S-4S-papaya, Carriles 5-6: muestras 5S-6S-<em>Amaranthus palmeri</em>; Carril 7: muestra 7S-<em>Echinochloa colona</em>; Carril 8: muestra 8S<em>Micrutalis calva</em>; y Carril 9: muestra 9S-<em>Balclutha mexicana</em>. El ADN se digirió con 10 U de cada enzima y los productos se separaron por electroforesis en geles de agarosa 3% (p/v) en TAE 1×. Carril M: marcador de masa molecular 1 kb plus (Thermo Scientific, EUA)
Figura 1. Detección de fitoplasmas en agroecosistemas de papaya con Bunchy Top en Colima, México. A) Plantas de papaya con tallos con acortamiento de entrenudos y hojas amarillas y cloróticas, positivas a fitoplasmas. B) Perfiles RFLPs in vitro del gen 16Sr (iniciadores R16F2n/R16R2) de los fitoplasmas en estudio. Carriles 1-4: muestras 1S-4S-papaya, Carriles 5-6: muestras 5S-6S-Amaranthus palmeri; Carril 7: muestra 7S-Echinochloa colona; Carril 8: muestra 8SMicrutalis calva; y Carril 9: muestra 9S-Balclutha mexicana. El ADN se digirió con 10 U de cada enzima y los productos se separaron por electroforesis en geles de agarosa 3% (p/v) en TAE 1×. Carril M: marcador de masa molecular 1 kb plus (Thermo Scientific, EUA)
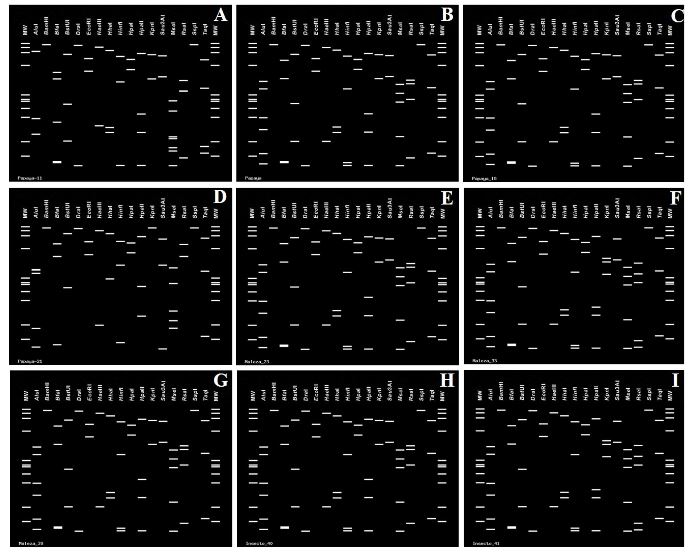
Figura 2. Perfiles RFLPs <em>in silico</em> del gen 16Sr de los fitoplasmas en estudio, generados con iPhyClassifier con 17 enzimas de restricción. A) muestra 1S-papaya; B) muestra 2S-papaya; C) muestra 3S-papaya; D) muestra 4S-papaya, E) muestra 5S-<em>Amaranthus palmeri</em>; F) muestra 6S-<em>Amaranthus palmeri</em>; G) muestra 7S-<em>Echinochloa colona</em>; H) muestra 8S- <em>Micrutalis calva</em>; I) muestra 9S-<em>Balclutha mexicana</em>. Carriles MW: ADN de φX174 digerido con Hae III
Figura 2. Perfiles RFLPs in silico del gen 16Sr de los fitoplasmas en estudio, generados con iPhyClassifier con 17 enzimas de restricción. A) muestra 1S-papaya; B) muestra 2S-papaya; C) muestra 3S-papaya; D) muestra 4S-papaya, E) muestra 5S-Amaranthus palmeri; F) muestra 6S-Amaranthus palmeri; G) muestra 7S-Echinochloa colona; H) muestra 8S- Micrutalis calva; I) muestra 9S-Balclutha mexicana. Carriles MW: ADN de φX174 digerido con Hae III
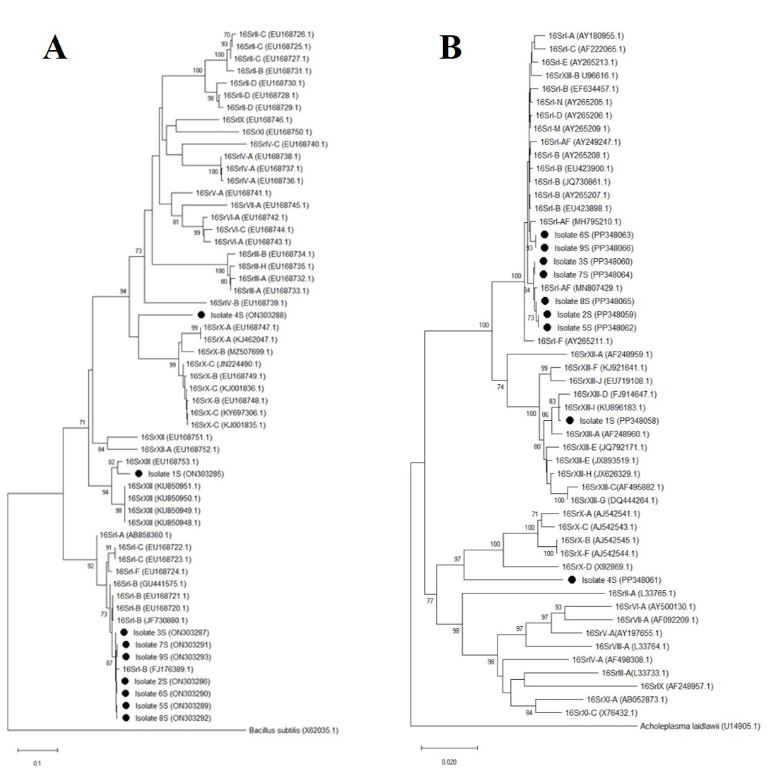
Figura 3. Árboles filogenéticos de los genes secA (A) y 16Sr (B) obtenidos con el método de neighbor-joining de grupos 16Sr de fitoplasmas identificados en agroecosistemas de papaya en Colima, México (círculos negros) y de grupos de fitoplasmas de otras partes del mundo. Los números de acceso se muestran en paréntesis. Muestras 1S-4S: papaya, muestras 5S-6S: <em>Amaranthus palmeri</em>, muestra 7S: <em>Echinochloa colona</em>, muestra 8S: <em>Micrutalis calva</em>, muestra 9S: <em>Balclutha mexicana</em>. La secuencia del gene secA de <em>Bacillus</em> subtilis y la del 16Sr de Acholeplasma laidlawii se usaron como grupos externos. En cada filogenia, los valores de bootstrap (por 1000 réplicas, mayores a 70 %) se muestran en las ramas. La barra indica el número de sustituciones nucleotídicas por sitio.
Figura 3. Árboles filogenéticos de los genes secA (A) y 16Sr (B) obtenidos con el método de neighbor-joining de grupos 16Sr de fitoplasmas identificados en agroecosistemas de papaya en Colima, México (círculos negros) y de grupos de fitoplasmas de otras partes del mundo. Los números de acceso se muestran en paréntesis. Muestras 1S-4S: papaya, muestras 5S-6S: Amaranthus palmeri, muestra 7S: Echinochloa colona, muestra 8S: Micrutalis calva, muestra 9S: Balclutha mexicana. La secuencia del gene secA de Bacillus subtilis y la del 16Sr de Acholeplasma laidlawii se usaron como grupos externos. En cada filogenia, los valores de bootstrap (por 1000 réplicas, mayores a 70 %) se muestran en las ramas. La barra indica el número de sustituciones nucleotídicas por sitio.
Cuadro 1. Detección de fitoplasmas en papaya (Carica papaya), malezas e insectos asociados a su cultivo en Colima, México, durante noviembre y diciembre de 2019.
Cuadro 2. Fitoplasmas identificados en papaya, malezas e insectos asociados al cultivo en Colima, México, durante noviembre-diciembre de 2019
  • Vol. 2024, 42(3)
  • Nota Fitopatológica

Antagonismo in vitro de Clonostachys sp. contra hongos asociados a enfermedades en cultivos de importancia económica

PorMaría Emilia Belingheri Lagunes, Rosario Medel Ortiz*, Alejandro Salinas Castro, Dora Trejo Aguilar

Recibido: 15/enero/2024 – Publicado: 07/junio/2024
DOI: https://doi.org/10.18781/R.MEX.FIT.2401-1

Resumen Antecedentes/Objetivo. El objetivo de este trabajo fue evaluar la capacidad antagónica in vitro de una cepa de Clonostachys sp., contra cinco especies de hongos asociados a enfermedades en cultivos de importancia económica.

Materiales y Métodos. Se probaron cinco especies de hongos asociados a enfermedades de cultivos: Alternaria alternata, Colletotrichum kahawae, C. musae, Fusarium oxysporum y F. solani. Se realizaron cultivos duales con cinco repeticiones mas los controles. Se registró el crecimiento cada 24 horas, hasta completar 360 horas. Se determinaron las interacciones, el grado de antagonismo y se calculó el porcentaje de colonización. Los análisis estadísticos se realizaron con un modelo lineal generalizado (GLM).

Resultados. Todas las especies evaluadas mostaron antagonsimo del tipo sobrecrecimiento. El grado de antagonismo se clasificó en tres clases, siendo la clase dos la que se presentó en tres de las especies. El porcentaje de colonización fue del 100 % a las 216 h en tres de las especies y de 264 h para las otras dos. No hubo diferencias significativas en el porcentaje de colonización (p =0.0073), pero sí en el tiempo de invasión (p< 0.0001).

Conclusión. Los ensayos duales para comprobar el efecto antagónico in vitro constituyen la base para la selección de candidatos para el control biológico de hongos.

Mostrar Figuras y/o Cuadros
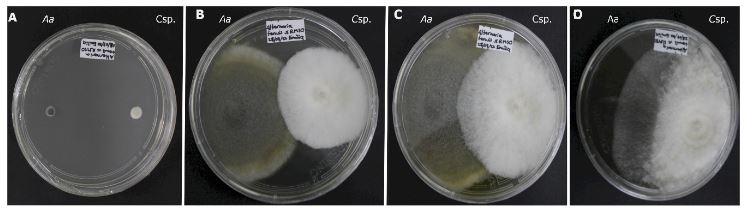
Figura 1. Antagonismo <em>in vitro</em> de <em>Clonostachys sp.</em> (Csp.) contra <em>Alternaria alternata</em> (Aa). A: 24 horas de la evaluación. B. 120 horas de evaluación. C. 216 horas de evaluación. D. día 15 de evaluación.
Figura 1. Antagonismo in vitro de Clonostachys sp. (Csp.) contra Alternaria alternata (Aa). A: 24 horas de la evaluación. B. 120 horas de evaluación. C. 216 horas de evaluación. D. día 15 de evaluación.
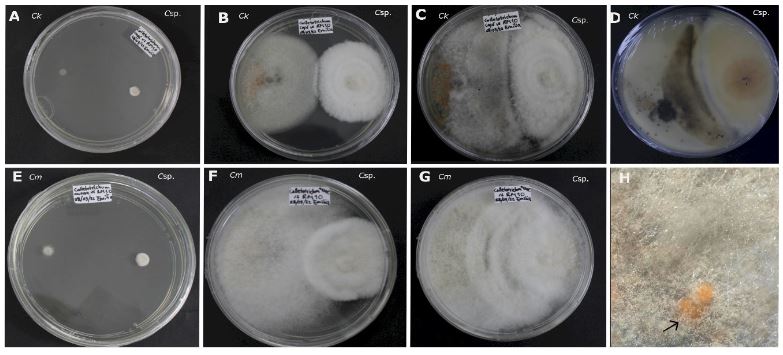
Figura 2. Antagonismo <em>in vitro</em> de <em>Clonostachys sp.</em> (Csp.) frente a <em>Colletotrichum kahawae</em> (Ck) y <em>Colletotrichum musae</em> (Cm). A-D) <em>Colletotrichum kahawae</em> (Ck). A: a las 24 horas de la evaluación. B: a las 192 horas de evaluación. C: 360 horas de evaluación. D: reverso de la caja en el día 15 de evaluación. E-H) <em>Colletotrichum musae</em> (Cm) contra <em>Clonostachys sp.</em> (Csp.). E: 24 horas de la evaluación. F: 192 horas de evaluación. G: 360 horas de evaluación. H: Conidióforos de <em>Clonostachys sp.</em> creciendo sobre acérvulos de <em>C. musae</em>
Figura 2. Antagonismo in vitro de Clonostachys sp. (Csp.) frente a Colletotrichum kahawae (Ck) y Colletotrichum musae (Cm). A-D) Colletotrichum kahawae (Ck). A: a las 24 horas de la evaluación. B: a las 192 horas de evaluación. C: 360 horas de evaluación. D: reverso de la caja en el día 15 de evaluación. E-H) Colletotrichum musae (Cm) contra Clonostachys sp. (Csp.). E: 24 horas de la evaluación. F: 192 horas de evaluación. G: 360 horas de evaluación. H: Conidióforos de Clonostachys sp. creciendo sobre acérvulos de C. musae
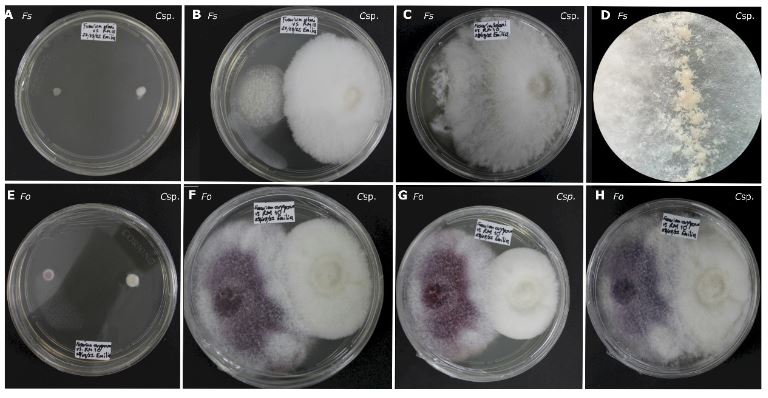
Figura 3. Antagonismo <em>in vitro</em> de <em>Clonostachys sp.</em> frente a <em>Fusarium spp.</em> A-D) <em>Fusarium solani</em> (Fs) contra <em>Clonostachys sp.</em> (Csp.) A: A las 24 horas de evaluación. B: a las 96 horas de evaluación. C: a las 360 horas de evaluación. D: masas de conidióforos de consistencia acuosa en el margen de <em>Clonostachys sp.</em> E-H) <em>Fusarium oxysporum</em> (Fo) contra <em>Clonostachys sp.</em> (Csp.) E: a las 24 horas de evaluación. F: a als 144 horas de evaluación. G: a las 192 horas de evaluación. H: a las 360 de evaluación
Figura 3. Antagonismo in vitro de Clonostachys sp. frente a Fusarium spp. A-D) Fusarium solani (Fs) contra Clonostachys sp. (Csp.) A: A las 24 horas de evaluación. B: a las 96 horas de evaluación. C: a las 360 horas de evaluación. D: masas de conidióforos de consistencia acuosa en el margen de Clonostachys sp. E-H) Fusarium oxysporum (Fo) contra Clonostachys sp. (Csp.) E: a las 24 horas de evaluación. F: a als 144 horas de evaluación. G: a las 192 horas de evaluación. H: a las 360 de evaluación
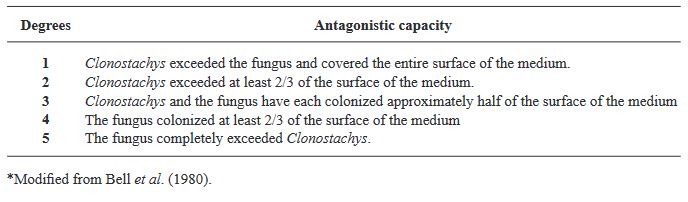
Cuadro 1. Escala cualitativa del grado de antagonismo de <em>Clonostachys sp.</em> y los hongos asociados a enfermedades evaluados.
Cuadro 1. Escala cualitativa del grado de antagonismo de Clonostachys sp. y los hongos asociados a enfermedades evaluados.
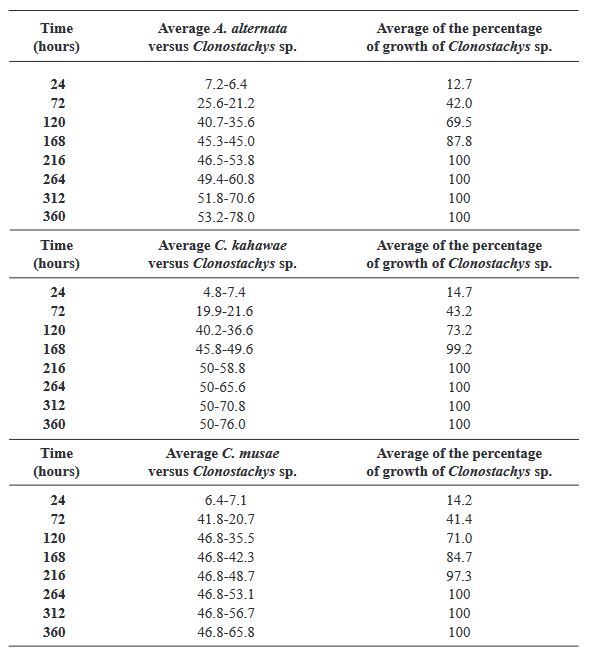
Cuadro 2. Porcentaje de crecimiento de <em>Clonostachys sp.</em> frente a los hongos.
Cuadro 2. Porcentaje de crecimiento de Clonostachys sp. frente a los hongos.

Página 11 de 16