
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
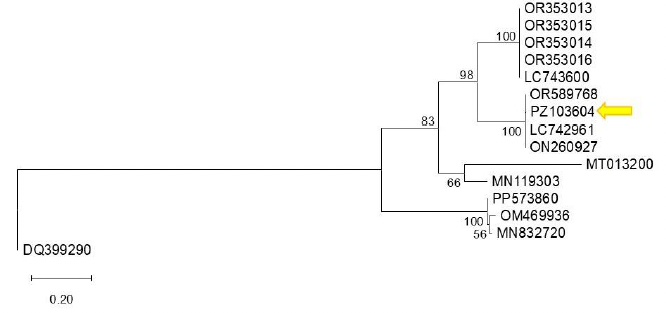
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Hongos asociados al tizón foliar del trigo y su control biológico

PorMariana Guadalupe Sánchez Alonso, Patricia Rivas Valencia*, Leticia Robles Yerena, Raúl Asael Rodríguez Villareal, María Florencia Rodríguez García, Raúl Rodríguez Guerra

Recibido: 18/noviembre/2024 – Publicado: 26/junio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-26

Resumen Antecedentes/Objetivo. El objetivo fue determinar el efecto de inhibición de morfotipos de actinobacterias en el crecimiento micelial de hongos asociados a manchas foliares en trigo.

Materiales y métodos. Se procesaron 136 muestras de hojas de trigo de regiones productoras de los Valles Altos de México. Fueron seccionadas, lavadas y colocadas en cámara húmeda; se aislaron hongos en papa dextrosa agar. Se realizó una identificación morfológica y se registró la incidencia de enfermedades por entidad federativa. Las actinobacterias fueron aisladas de muestras de suelo mediante la técnica de diluciones y se aislaron microcolonias en agar nutritivo. Se establecieron bioensayos preliminares in vitro a 27 °C con 144 actinobacterias y una confrotación dual con morfotipos de actinobacterias que presentaron un PICM mayor al 40 %; para determinar el porcentaje de inhibición del crecimiento micelial e identificar aquellos con potencial para el control de hongos asociados a manchas foliares. El diseño experimental fue completamente al azar y se realizó un análisis de varianza (p ≤ 0.05) y prueba de medias (Tukey p ≤ 0.05).

Resultados. Al menos tres actinobacterias inhibieron el crecimiento micelial de Fusarium spp. en un rango de 42.5 - 66.9 %. Se registró mayor efectividad de inhibición de la cepa M2B M60 con Fusarium aislado 1, M1B33 con Fusarium aislado 2 y M1B M4 tuvo mayor efectividad con Fusarium aislado 3.

Conclusión. El uso de actinobacterias representa una alternativa para el manejo integrado en el control de hongos asociados con el tizón foliar en trigo, al presentar un efecto inhibitorio de crecimiento micelial.

Mostrar Figuras y/o Cuadros
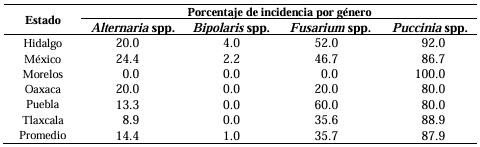
Cuadro 1. Porcentaje de incidencia de hongos asociados a enfermedades en cultivo de trigo muestreados en principales estados productores.
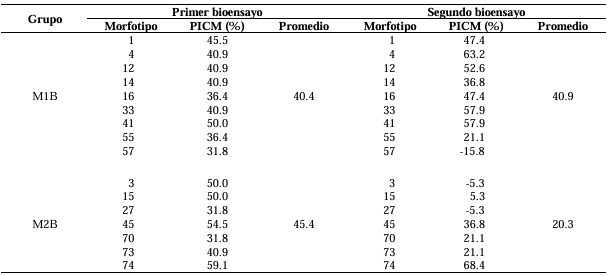
Cuadro 2. Porcentaje de inhibición de crecimiento micelial (PICM) de bioensayos preliminares de morfotipos de actinobacterias en contra de <em>Fusarium</em> aislamiento 1.
Cuadro 2. Porcentaje de inhibición de crecimiento micelial (PICM) de bioensayos preliminares de morfotipos de actinobacterias en contra de Fusarium aislamiento 1.
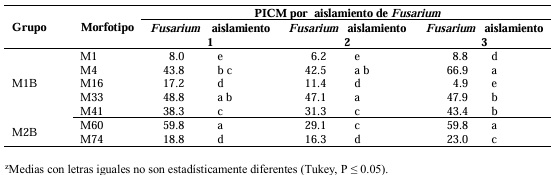
Cuadro 3. Porcentaje de inhibición del crecimiento micelial (PICM) de tres aislamientos del género <em>Fusarium</em> de trigo y confrontadas con siete morfotipos de actinobacterias.
Cuadro 3. Porcentaje de inhibición del crecimiento micelial (PICM) de tres aislamientos del género Fusarium de trigo y confrontadas con siete morfotipos de actinobacterias.
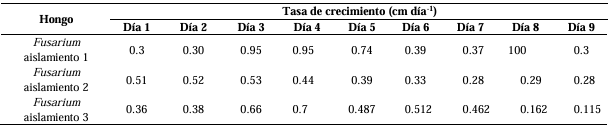
Cuadro 4. Tasa de crecimiento de <em>Fusarium</em> aislados de hojas de trigo.
Cuadro 4. Tasa de crecimiento de Fusarium aislados de hojas de trigo.
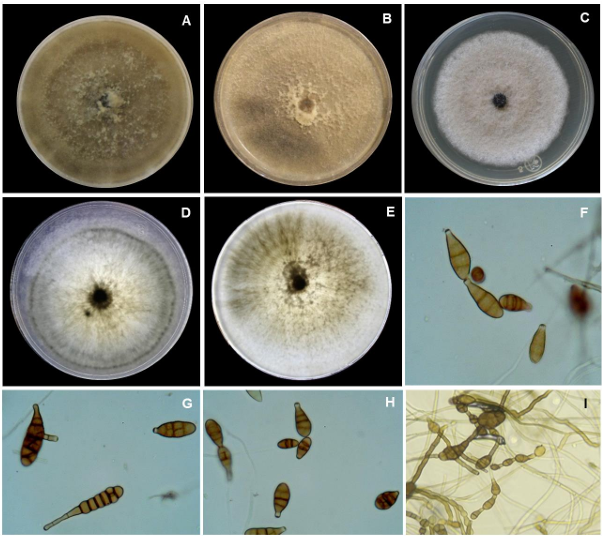
Figura 1. Colonias de <em>Alternaria</em> spp. A) Colonia en medio de cultivo PDA. B) Colonia en medio de cultivo APZ. C) Crecimiento micelial en etapa temprana en medio de cultivo PDA. D) Colonia en medio PDA con presencia de uno o dos anillos concéntricos observados a contra luz. E) Colonia en medio PZA con presencia de varios anillos concéntricos observados a contra luz. F-I) Conidios y cadena de conidios.
Figura 1. Colonias de Alternaria spp. A) Colonia en medio de cultivo PDA. B) Colonia en medio de cultivo APZ. C) Crecimiento micelial en etapa temprana en medio de cultivo PDA. D) Colonia en medio PDA con presencia de uno o dos anillos concéntricos observados a contra luz. E) Colonia en medio PZA con presencia de varios anillos concéntricos observados a contra luz. F-I) Conidios y cadena de conidios.
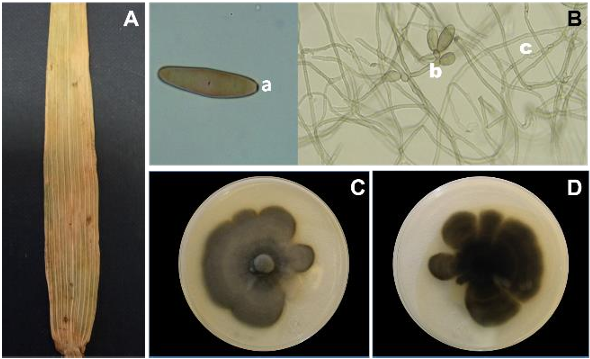
Figura 2. Síntomas y colonias de <em>Bipolaris</em> sp. A) Síntoma de <em>Bipolaris</em> sp., atizonamiento a lo largo de la hoja de trigo. B) Conidio con tres septos ligeramente marcados (a. cicatriz basal), conidióforos (b) y micelio (c). C) Colonia en medio de cultivo PDA. D) Reverso de la placa Petri en medio de cultivo PDA.
Figura 2. Síntomas y colonias de Bipolaris sp. A) Síntoma de Bipolaris sp., atizonamiento a lo largo de la hoja de trigo. B) Conidio con tres septos ligeramente marcados (a. cicatriz basal), conidióforos (b) y micelio (c). C) Colonia en medio de cultivo PDA. D) Reverso de la placa Petri en medio de cultivo PDA.
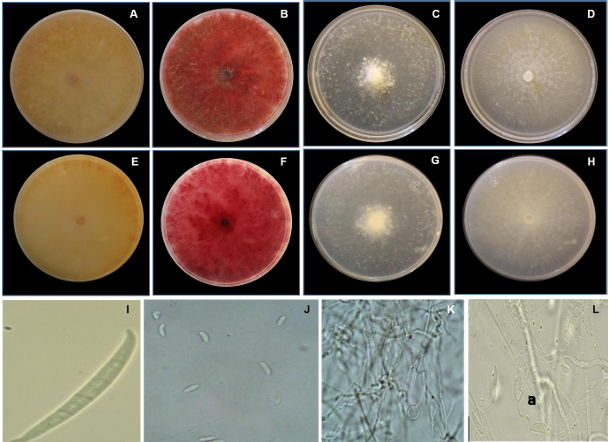
Figura 3. Características de <em>Fusarium</em> spp. A y E) Vista frontal y reverso de la colonia en medio de cultivo PDA de <em>Fusarium</em> aislamiento 1. B y F) Vista frontal y reverso de la colonia en medio de cultivo SNA de <em>Fusarium</em> aislamiento 1. C y G) Vista frontal y reverso de la colonia en medio de cultivo PDA de <em>Fusarium</em> aislamiento 2. D y H) Vista frontal y reverso de la colonia en medio de cultivo SNA de Fusarium aislamiento 2. I) Macroconidio de <em>Fusarium</em> aislamiento 1. J) Microconidios de <em>Fusarium</em> aislamiento 2. K) Clamidiosporas de <em>Fusarium</em> aislamiento 2. L) Microconidios y fiálides (a) aislamiento 2.
Figura 3. Características de Fusarium spp. A y E) Vista frontal y reverso de la colonia en medio de cultivo PDA de Fusarium aislamiento 1. B y F) Vista frontal y reverso de la colonia en medio de cultivo SNA de Fusarium aislamiento 1. C y G) Vista frontal y reverso de la colonia en medio de cultivo PDA de Fusarium aislamiento 2. D y H) Vista frontal y reverso de la colonia en medio de cultivo SNA de Fusarium aislamiento 2. I) Macroconidio de Fusarium aislamiento 1. J) Microconidios de Fusarium aislamiento 2. K) Clamidiosporas de Fusarium aislamiento 2. L) Microconidios y fiálides (a) aislamiento 2.
Figura 4. Pústulas de roya. A) Pústulas de roya en hoja de trigo. B) Urediospora de <em>Puccinia</em> 1. C) Urediospora de <em>Puccinia</em>. D) Teliospora de <em>Puccinia</em> 1. E) Teliospora de <em>Puccinia</em> 2.
Figura 4. Pústulas de roya. A) Pústulas de roya en hoja de trigo. B) Urediospora de Puccinia 1. C) Urediospora de Puccinia. D) Teliospora de Puccinia 1. E) Teliospora de Puccinia 2.
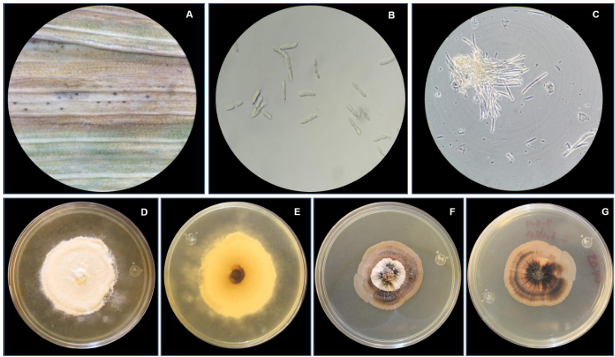
Figura 5. A) Halos cloróticos con picnidios. B) Conidios de <em>Septoria</em> sp. C) Conidios de <em>Zymoseptoria</em> sp. observado en fase de contraste. D) Vista frontal de la colonia <em>Septoria</em> sp. en PDA. E) Reverso de la colonia <em>Septoria</em> sp. en PDA. F) Vista frontal de la colonia de <em>Zymoseptoria</em> sp. en PDA. G) Reverso de la colonia <em>Zymoseptoria</em> sp.
Figura 5. A) Halos cloróticos con picnidios. B) Conidios de Septoria sp. C) Conidios de Zymoseptoria sp. observado en fase de contraste. D) Vista frontal de la colonia Septoria sp. en PDA. E) Reverso de la colonia Septoria sp. en PDA. F) Vista frontal de la colonia de Zymoseptoria sp. en PDA. G) Reverso de la colonia Zymoseptoria sp.
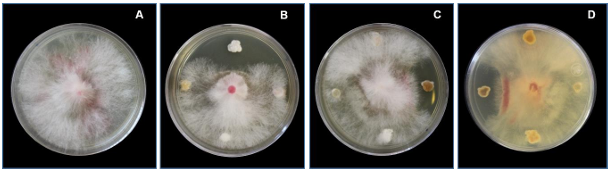
Figura 6. <em>Fusarium</em> aislamiento 1, con nueve días de edad. A) Testigo. B) y C) Interacción del hongo con cuatro actinobacterias, vista frontal. D) Interacción del hongo con cuatro actinobacterias, reverso de la caja.
Figura 6. Fusarium aislamiento 1, con nueve días de edad. A) Testigo. B) y C) Interacción del hongo con cuatro actinobacterias, vista frontal. D) Interacción del hongo con cuatro actinobacterias, reverso de la caja.
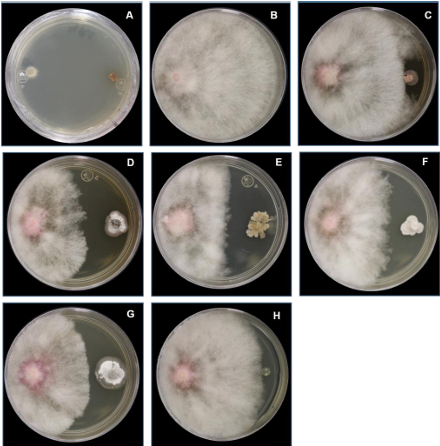
Figura 7. Confrontación dual con <em>Fusarium</em> aislamiento 1. A) Distribución de los discos de <em>Fusarium</em>. B) Crecimiento de la colonia testigo de <em>Fusarium</em> aislamiento 1. C) <em>Fusarium</em> aislamiento 1 y morfotipo M1BM1. D) <em>Fusarium</em> aislamiento 1 y morfotipo M1B4. G) <em>Fusarium</em> aislamiento 1 y morfotipo M2B60. H) <em>Fusarium</em> aislamiento 1 y morfotipo M2B74. I). Crecimiento micelial de testigo <em>Fusarium</em> aislamiento 1.
Figura 7. Confrontación dual con Fusarium aislamiento 1. A) Distribución de los discos de Fusarium. B) Crecimiento de la colonia testigo de Fusarium aislamiento 1. C) Fusarium aislamiento 1 y morfotipo M1BM1. D) Fusarium aislamiento 1 y morfotipo M1B4. G) Fusarium aislamiento 1 y morfotipo M2B60. H) Fusarium aislamiento 1 y morfotipo M2B74. I). Crecimiento micelial de testigo Fusarium aislamiento 1.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Extractos de actinomicetos contra Pseudomonas syringae pv. phaseolicola en Phaseolus vulgaris

PorEvangelina Esmeralda Quiñones Aguilar, Alfredo Reyes Tena, Gabriel Rincón Enriquéz, Juan Carlos Rico Aguilar, Luis López Pérez*

Recibido: 02/noviembre/2024 – Publicado: 25/junio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-02

Resumen Antecedentes/Objetivo. El frijol (Phaseolus vulgaris), es atacado principalmente por la bacteria Pseudomonas syringae pv. phaseolicola (PSPH), la cual puede ocasionar graves pérdidas económicas. Una alternativa sustentable para su control es mediante el uso de agentes antimicrobianos como los actinomicetos. En esta investigación se planteó, evaluar el efecto de los extractos de tres cepas de actinomicetos (ED65, ED66 y ED 67), en el control del Pseudomonas syringae pv. phaseolicola en Phaseolus vulgaris bajo condiciones controladas.

Materiales y Métodos. En plantas de frijol variedad azufrado inoculadas con PSPH, se asperjaron 2 mL de los extractos de actinomicetos. Después de 16 días, se evaluó la sintomatología mediante el número de hojas que presentaron manchas, la defoliación, cantidad de manchas por hoja y la severidad de la enfermedad mediante una escala de daño.

Resultados. Se encontró una reducción estadísticamente significativa (P<0.05), en la cantidad de manchas y lesiones de la enfermedad en las plantas asperjadas con los extractos. El nivel de daño disminuyó significativamente en aquellas plantas tratadas con los extractos ED65, ED67 y el tratamiento ED66 no presentó daño.

Conclusión. De acuerdo con los resultados de este estudio, la cepa AD66, demostró tener el mejor potencial para ser utilizada como fuente de sustancias antimicrobianas para el manejo del tizón del halo del frijol, seguido de la ED65 y ED67.

Mostrar Figuras y/o Cuadros
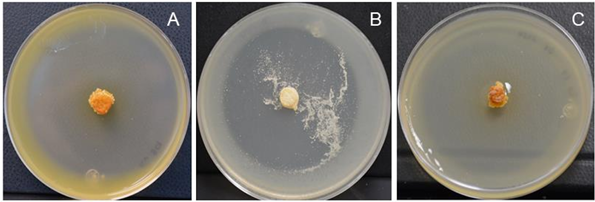
Figura 1. Cepas ED65 (A), ED66 (B) y ED 67 (C), mostrando características morfológicas típicas de actinobacterias.
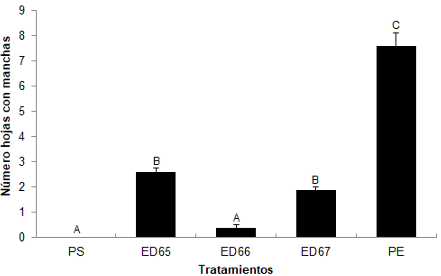
Figura 2. Número de hojas con necrosis a 16 días después de la inoculación con<em> Pseudomonas syringae</em> pv. <em>phaseolicola</em> en plantas de frijol. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencias estadísticas significativas (Tukey, P<0.05). La línea arriba de las barras (Ɪ) representa el error estándar.
Figura 2. Número de hojas con necrosis a 16 días después de la inoculación con Pseudomonas syringae pv. phaseolicola en plantas de frijol. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencias estadísticas significativas (Tukey, P<0.05). La línea arriba de las barras (Ɪ) representa el error estándar.
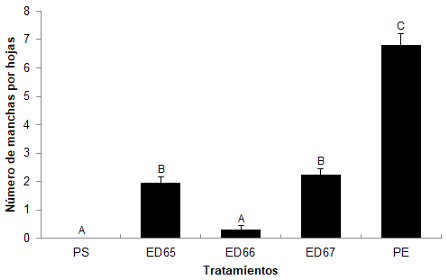
Figura 3. Número de manchas por hoja a 16 días después de la inoculación con <em>Pseudomonas syringae</em> pv. <em>phaseolicola</em> en plantas de frijol. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencia estadística significativa (Tukey, P<0.05). La línea arriba de las barras (Ɪ) representa el error estándar.
Figura 3. Número de manchas por hoja a 16 días después de la inoculación con Pseudomonas syringae pv. phaseolicola en plantas de frijol. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencia estadística significativa (Tukey, P<0.05). La línea arriba de las barras (Ɪ) representa el error estándar.
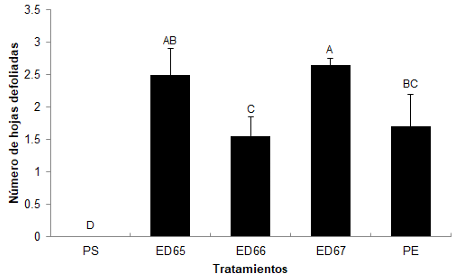
Figura 4. Número de hojas defoliadas en plantas de frijol a 16 días después de la inoculación con <em>Pseudomonas syringae</em> pv. <em>phaseolicola</em>. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencias estadísticas significativas (Tukey, P<0.05). La línea sobre las barras (Ɪ) representa el error estándar.
Figura 4. Número de hojas defoliadas en plantas de frijol a 16 días después de la inoculación con Pseudomonas syringae pv. phaseolicola. PE = planta enferma; PS = planta sana. Letras diferentes arriba de las barras indican diferencias estadísticas significativas (Tukey, P<0.05). La línea sobre las barras (Ɪ) representa el error estándar.
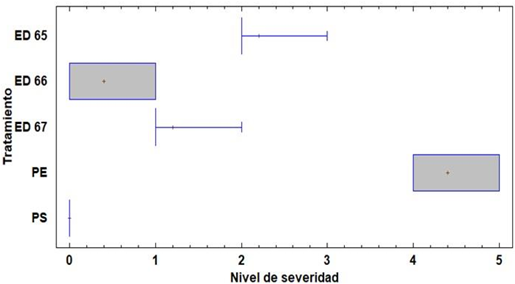
Figura 5. Nivel de severidad del tizón del halo en <em>Phaseolus vulgaris</em> a 16 días después de la inoculación de <em>Pseudomonas syringae</em> pv. <em>phaseolicola</em>. PE = Planta enferma; PS = Planta sana.
Figura 5. Nivel de severidad del tizón del halo en Phaseolus vulgaris a 16 días después de la inoculación de Pseudomonas syringae pv. phaseolicola. PE = Planta enferma; PS = Planta sana.
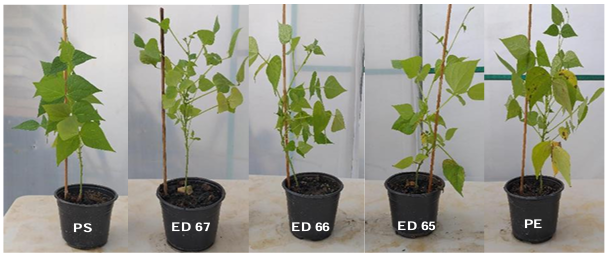
Figura 6. Daño causado por el tizón del halo del frijol a los 16 días después de la inoculación de <em>Pseudomonas syringae</em> pv. <em>phaseolicola</em> en plantas tratadas con los actinomicetos (ED67, ED66 y ED65). PS = planta sana (control negativo); PE = planta enferma (control positivo).
Figura 6. Daño causado por el tizón del halo del frijol a los 16 días después de la inoculación de Pseudomonas syringae pv. phaseolicola en plantas tratadas con los actinomicetos (ED67, ED66 y ED65). PS = planta sana (control negativo); PE = planta enferma (control positivo).
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Efecto de plantas ornamentales en el microbioma fúngico rizosférico y las propiedades del suelo

PorRamón Alejandro Murillo Chaidez, Mirella Romero Bastidas*, Alejandra Nieto Garibay, Alejandro Palacios Espinosa

Recibido: 12/noviembre/2024 – Publicado: 06/junio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-06

Resumen Antecedentes/Objetivo. Las plantas ornamentales poseen importancia en la estética de áreas verdes en Baja California Sur. Sin embargo, son escasos los estudios relacionados a su influencia sobre la diversidad fúngica del suelo y sus características edafológicas. Por lo anterior, el objetivo del presente estudio fue evaluar el efecto de seis especies ornamentales (Euphorbia mili, Ruellia simplex, Catharantus roseus, Centaurea cyanus, Tagetes erecta y Calendula officinalis) en la población, diversidad y riqueza de hongos y su relación con las características físico-químicas del suelo.

Materiales y Métodos. Muestras de suelo rizosférico obtenidas al azar fueron sometidas a diluciones seriadas para el aislamiento, conteo poblacional, identificación morfológica y diversidad y riqueza de hongos asociados a cada especie ornamental. Además, fueron determinadas las características físico-químicas del suelo al inicio y final del experimento. Asimismo, una correlación de Person entre las variables fue evaluada.

Resultados. La mayor población fúngica fue en C. cyanus con 8,096.66 UFC g-1 de suelo. Mientras que en E. mili y T. erecta se redujo a 3,333.33 UFC g-1 de suelo. Siete géneros fueron identificados, donde Aspergillus spp. fue el de mayor predominancia. Mientras que la especie E. mili y C. cyanus estimularon la mayor diversidad (12 y 13 aislados). El análisis de correlación fue negativo.

Conclusión. Esta información confirma que la especie ornamental C. cyanus posee una influencia significativa en la ecología del suelo al aumentar la población microbiana (de 2,833.33 a 8,096.66 UFC g-1 de suelo) y estimular mayormente su diversidad (con siete aislados al inicio y 13 al final).

Mostrar Figuras y/o Cuadros
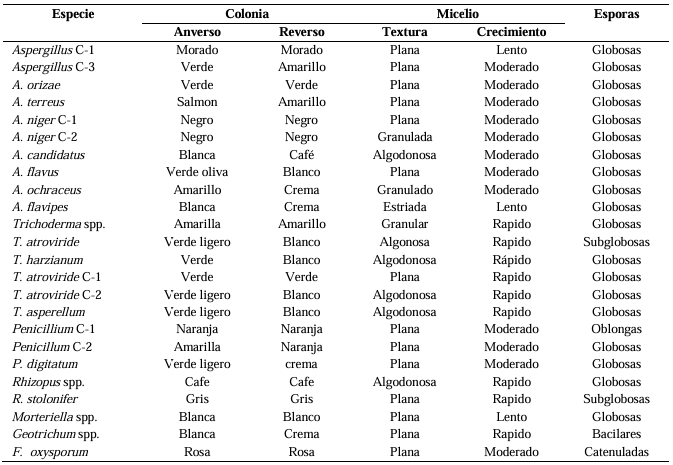
Cuadro 1. Morfología de hongos rizosféricos asociados a plantas ornamentales.
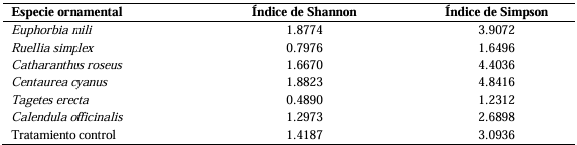
Cuadro 2. Diversidad y riqueza fúngica en la rizósfera de plantas ornamentales.
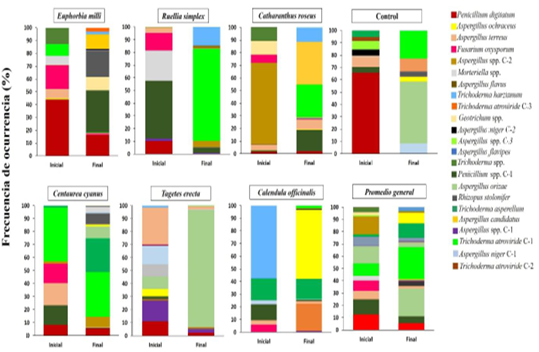
Figura 1. Población fúngica (Unidades Formadoras de Colonias) de la rizósfera de las plantas ornamentales.
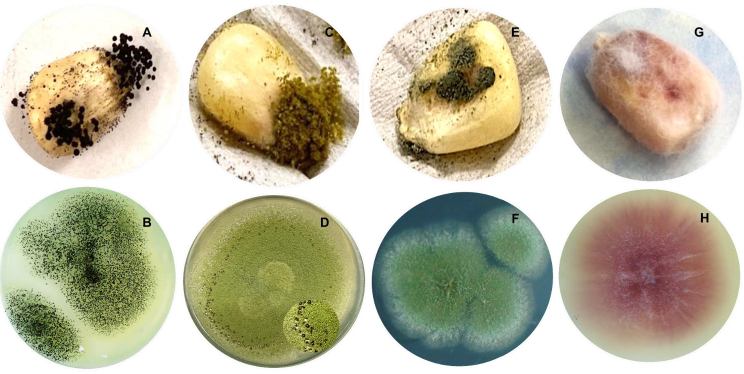
Figura 2. Microbiota correspondiente al género <em>Aspergillus</em> presente en la rizósfera de plantas ornamentales.
Figura 2. Microbiota correspondiente al género Aspergillus presente en la rizósfera de plantas ornamentales.
Figura 3. Microbiota correspondiente al género <em>Trichoderma</em> y <em>Penicillium</em> de la rizósfera en plantas ornamentales.
Figura 3. Microbiota correspondiente al género Trichoderma y Penicillium de la rizósfera en plantas ornamentales.
Figura 4. Microbiota correspondiente a los géneros de menor diversidad de la rizósfera en plantas ornamentales.
Figura 5. Diversidad y riqueza fúngica de la rizósfera en plantas ornamentales.
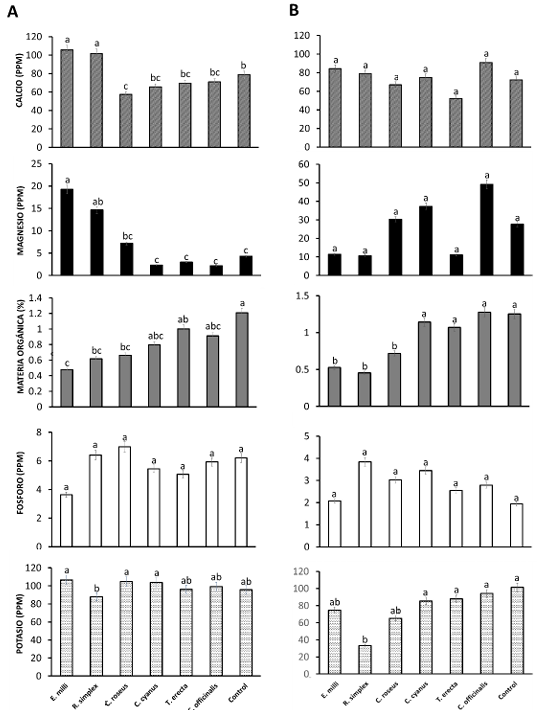
Figura 6. Efecto de plantas ornamentales en los nutrientes del suelo. A) Análisis inicial y B) final. Los valores son medias ± desviación estándar. a b c d; las medias seguidas por la misma letra para un factor dado no son significativamente diferentes (p < 0.05; prueba HSD de Tukey).
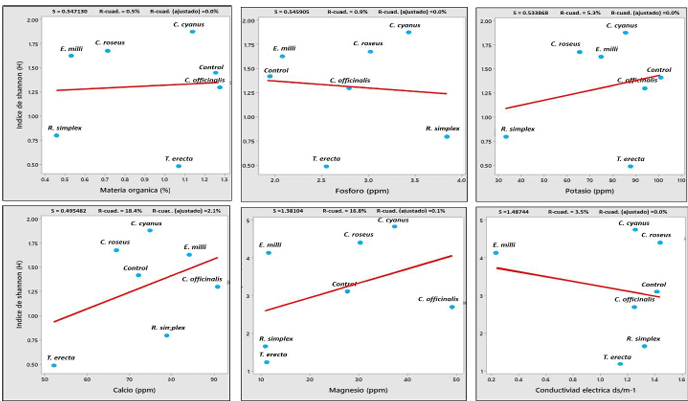
Figura 7. Correlación entre el índice de diversidad fúngica de Shannon y las características del suelo asociadas a plantas ornamentales.
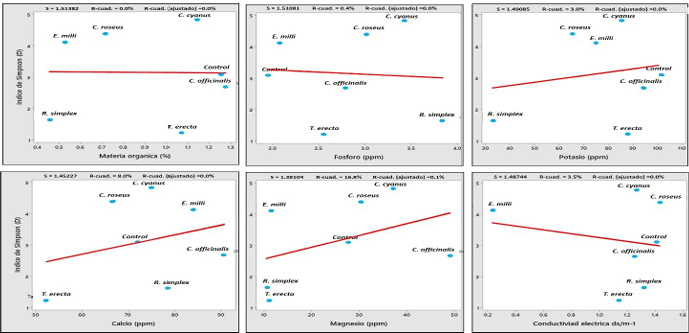
Figura 8. Correlación entre el índice de diversidad fúngica de Simpson y las características del suelo asociadas a plantas ornamentales.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Biocontrol de Fusarium oxysporum y promoción del
crecimiento en chile con Bacillus cereus y B. thuringiensis

PorMaribel Mendoza Alatorre, Aldo Gutiérrez Chávez, Angélica Anahí Acevedo Barrera, Loreto Robles Hernández, Jared Hernández Huerta*

Recibido: 20/noviembre/2024 – Publicado: 06/junio/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-15

Resumen Antecedentes/Objetivo. Fusarium oxysporum es causante de la marchitez del chile y una estrategia ecológica para su manejo puede ser el uso de Bacillus spp. ya que han demostrado ser biocontrol de hongos fitopatógenos y promotores de crecimiento vegetal (PCV). El objetivo fue evaluar la capacidad de biocontrol y PCV de B. cereus y B. thuringiensis, y su efecto sobre variables morfológicas del chile jalapeño y reducción de la severidad de la marchitez.

Materiales y Métodos. Se realizaron pruebas de patogenicidad y virulencia en plántulas de chile jalapeño con seis cepas de F. oxysporum aisladas de plantas de chile. Se realizaron pruebas de antagonismo in vitro entre las cepas nativas de B. cereus Bc28-2 (Bc28-2), B. cereus Bc28-5 (Bc28-5) y B. thuringiensis Bt24 (Bt24), empleando como control Bacillus subtilis QST713 (PC), contra las cepas de F. oxysporum. Se realizaron pruebas de PCV en plántulas de chile con las cepas de Bacillus. Asimismo, se realizaron pruebas de biocontrol de Bacillus contra F. oxysporum FL2, en condiciones de invernadero. Los datos se analizaron mediante ANOVAs y pruebas de separación de medias (p<0.05) y un análisis multivariado de componentes principales.

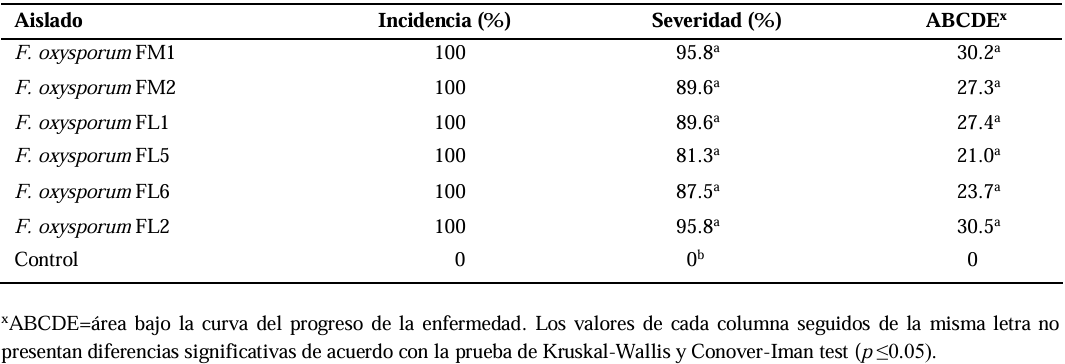
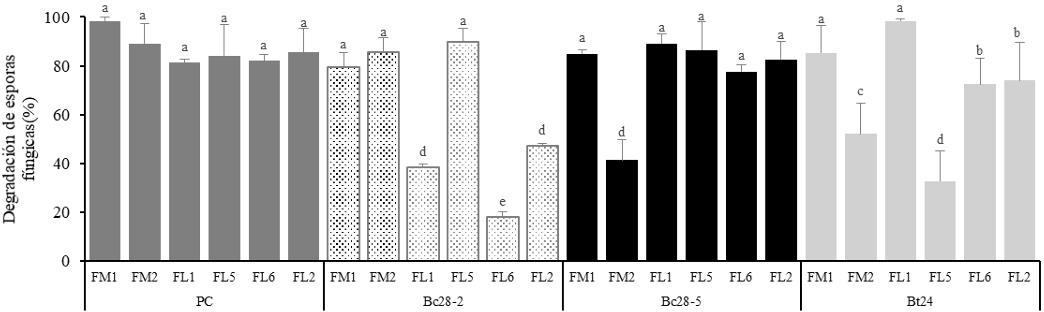
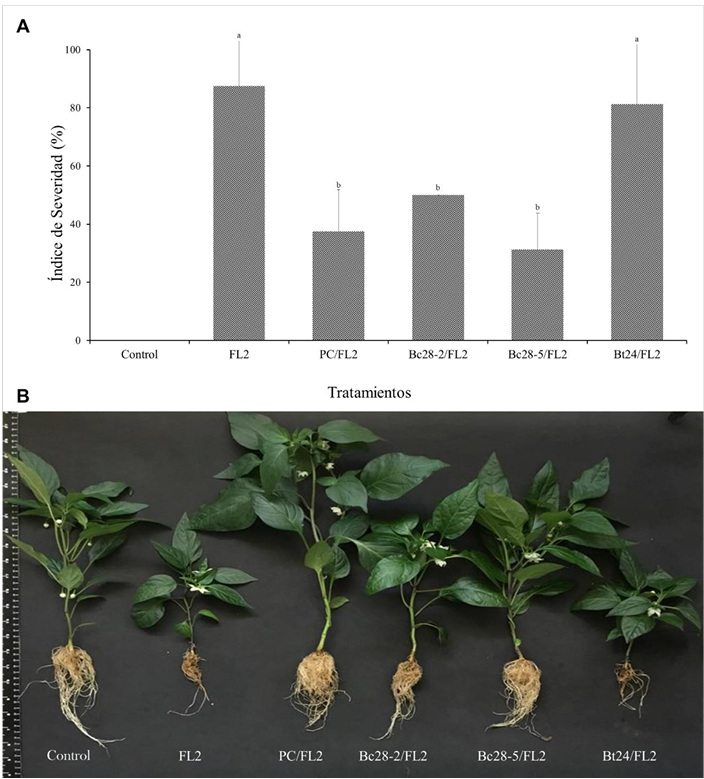
Resultados. Todas las cepas de F. oxysporum fueron patógenas con una incidencia del 100 % y una severidad del 89.9 %. PC logró la mayor degradación de esporas de Fusarium (86.7 %), seguido de Bc28-2 y Bc28-5 (84.2 %). Bt24 y Bc28-2 promovieron el mejor desarrollo de las plántulas de chile, con incrementos en parámetros vegetativos. En el biocontrol de F. oxysporum FL2, Bc28-2 y Bc28-5 redujeron la severidad de la enfermedad en un 60.4 % y promovieron el crecimiento similar al control, mientras que Bt24 no mostró eficacia en el biocontrol de la marchitez.

Conclusiones. Los resultados indican el potencial de Bacillus cereus Bc28-2 y Bc28-5 como biocontroles de F. oxysporum en chile jalapeño, aunque es necesario validar su efectividad en campo y explorar su integración en el manejo agrícola sostenible.

Mostrar Figuras y/o Cuadros
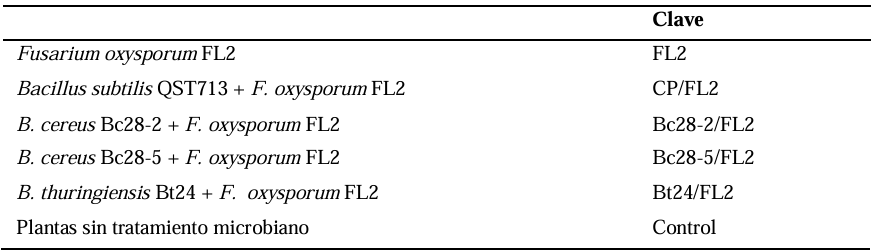
Cuadro 1. Tratamientos empleados en el biocontrol de <em>Fusarium oxysporum</em> FL2 aplicados en plantas de chile jalapeño crecidas bajo condiciones de invernadero.
Cuadro 1. Tratamientos empleados en el biocontrol de Fusarium oxysporum FL2 aplicados en plantas de chile jalapeño crecidas bajo condiciones de invernadero.
Cuadro 2. Incidencia, severidad y progresión de la marchitez en semillas de chile 10 días después de su inoculación con <em>Fusarium oxysporum</em>.
Cuadro 2. Incidencia, severidad y progresión de la marchitez en semillas de chile 10 días después de su inoculación con Fusarium oxysporum.
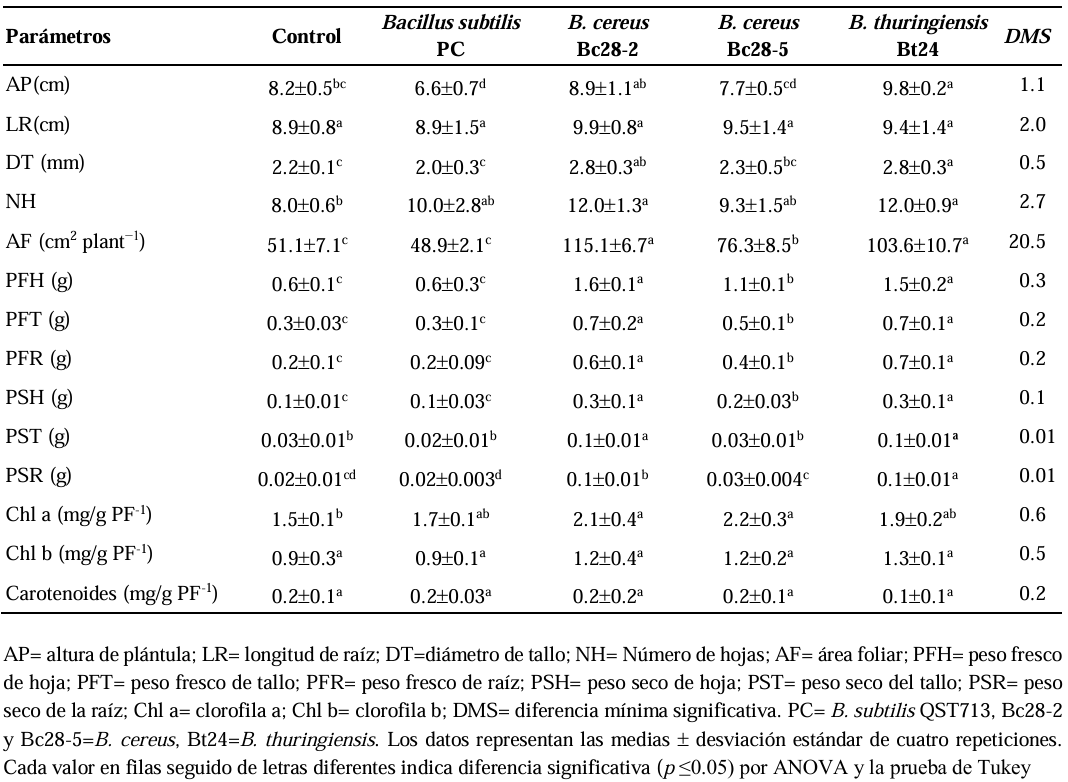
Cuadro 3. Efecto de <em>Bacillus</em> spp. sobre el crecimiento de plántulas de chile jalapeño en condiciones controladas después de 30 días de inoculación.
Cuadro 3. Efecto de Bacillus spp. sobre el crecimiento de plántulas de chile jalapeño en condiciones controladas después de 30 días de inoculación.
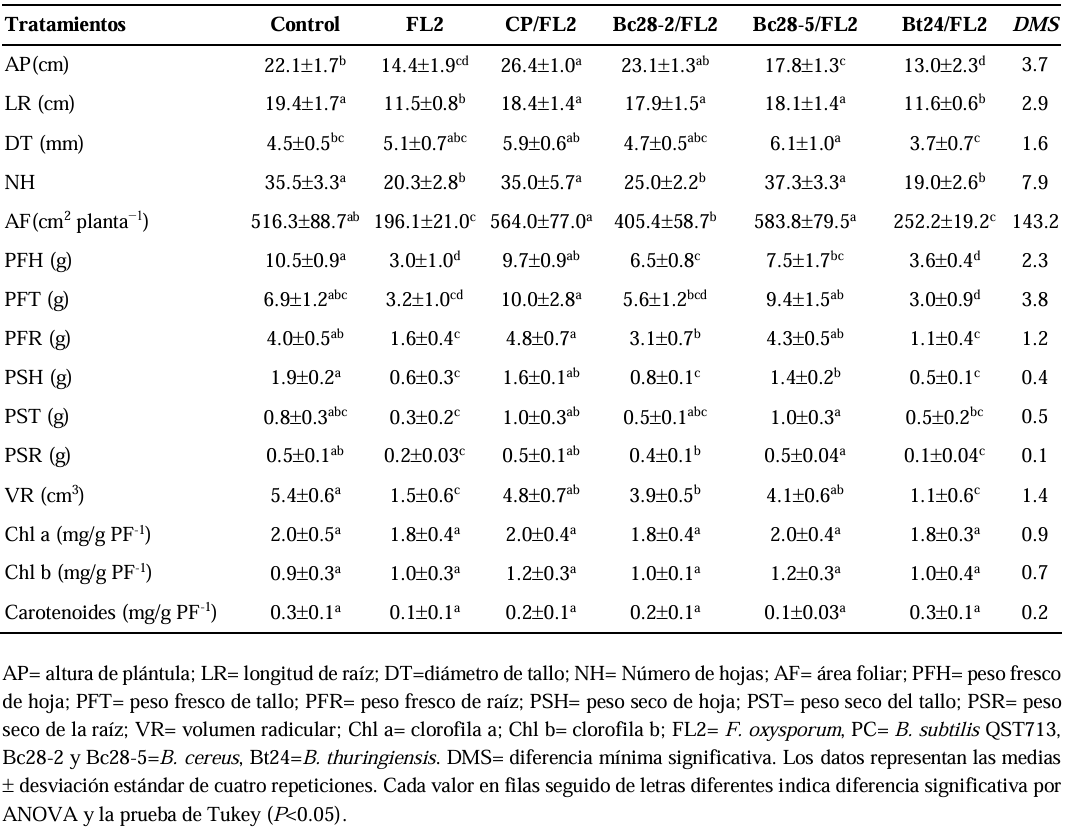
Cuadro 4. Efecto de <em>Bacillus</em> spp. sobre el crecimiento de plantas de chile en condiciones de invernadero después de 30 días de inoculación de Fusarium oxysporum FL2 agente causal de la marchitez del chile.
Cuadro 4. Efecto de Bacillus spp. sobre el crecimiento de plantas de chile en condiciones de invernadero después de 30 días de inoculación de Fusarium oxysporum FL2 agente causal de la marchitez del chile.
Figura 1. Degradación de esporas de <em>Fusarium oxysporum</em> por <em>Bacillus</em> spp. en caldo nutritivo después de 48 horas de interacción <em>in vitro</em>. PC= B. subtilis QST713, Bc28-2 y Bc28-5 = <em>B. cereus</em>, Bt24=<em>B. thuringiensis</em>. <em>F. oxysporum</em>=FM1, FM2, FL1, FL5, FL6, FL2. Las columnas con letras diferentes indican diferencias significativas de acuerdo a la prueba de Scott-Knott (p<0.05).
Figura 1. Degradación de esporas de Fusarium oxysporum por Bacillus spp. en caldo nutritivo después de 48 horas de interacción in vitro. PC= B. subtilis QST713, Bc28-2 y Bc28-5 = B. cereus, Bt24=B. thuringiensis. F. oxysporum=FM1, FM2, FL1, FL5, FL6, FL2. Las columnas con letras diferentes indican diferencias significativas de acuerdo a la prueba de Scott-Knott (p<0.05).
Figura 2. Efecto de <em>Bacillus</em> spp. sobre el control de la marchitez del chile causado por <em>Fusarium oxysporum</em> FL2 bajo condiciones de invernadero, después de 30 días de inoculación. A) Índice de severidad de la marchitez del chile en interacción con <em>Bacillus</em> sp. F= <em>Fusarium</em> sp. FL2, PC= producto comercial (<em>B. subtilis</em> QST713®), Bc28-2 y Bc28-5=B. cereus, Bt24=B. thuringiensis. Las barras sobre las columnas indican la desviación estándar. Las columnas con letras diferentes indican diferencias significativas según las pruebas de Kruskal-Walli y Conover-Iman (p<0.05). B) Sintomatología de la marchitez del chile causado por <em>F. oxysporum</em> FL2 y su interacción con Bacillus spp. bajo condiciones de invernadero.
Figura 2. Efecto de Bacillus spp. sobre el control de la marchitez del chile causado por Fusarium oxysporum FL2 bajo condiciones de invernadero, después de 30 días de inoculación. A) Índice de severidad de la marchitez del chile en interacción con Bacillus sp. F= Fusarium sp. FL2, PC= producto comercial (B. subtilis QST713®), Bc28-2 y Bc28-5=B. cereus, Bt24=B. thuringiensis. Las barras sobre las columnas indican la desviación estándar. Las columnas con letras diferentes indican diferencias significativas según las pruebas de Kruskal-Walli y Conover-Iman (p<0.05). B) Sintomatología de la marchitez del chile causado por F. oxysporum FL2 y su interacción con Bacillus spp. bajo condiciones de invernadero.
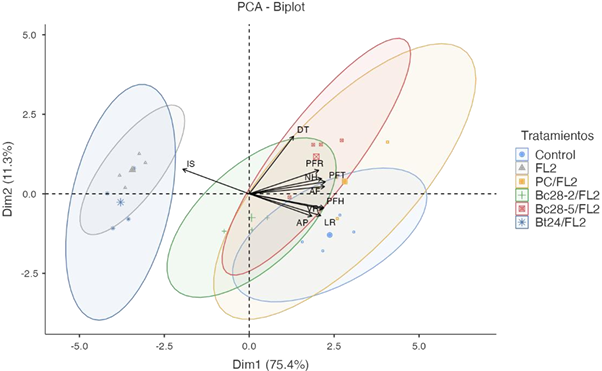
Figura 3. Análisis de Componentes Principales (ACP) del crecimiento de plantas de chile inoculadas con <em>Fusarium</em> sp. FL2 (F), producto comercial (PC; <em>B. subtilis</em> QST713), B. cereus (Bc28-2, Bc28-5), ó <em>B. thuringiensis</em> (Bt24) (χ² = 291, df = 45, p < .001). IS=índice de severidad de la enfermedad, AP= altura de plántula, LR= longitud de raíz, DT=diámetro de tallo, NH= Número de hojas, AF= área foliar, PFH= peso fresco de hoja, PFT= peso fresco de tallo, PFR= peso fresco de raíz, VR=volumen radicular.
Figura 3. Análisis de Componentes Principales (ACP) del crecimiento de plantas de chile inoculadas con Fusarium sp. FL2 (F), producto comercial (PC; B. subtilis QST713), B. cereus (Bc28-2, Bc28-5), ó B. thuringiensis (Bt24) (χ² = 291, df = 45, p < .001). IS=índice de severidad de la enfermedad, AP= altura de plántula, LR= longitud de raíz, DT=diámetro de tallo, NH= Número de hojas, AF= área foliar, PFH= peso fresco de hoja, PFT= peso fresco de tallo, PFR= peso fresco de raíz, VR=volumen radicular.
  • Vol. 2025, 43(2)
  • Artículo Científico

Clonación, expresión y detección serológica de la putativa ARN polimerasa del Virus de la meleira de la papaya variante mexicana en Escherichia coli

PorWendy Serra, Jeanin A Arguelles Quintal, Mildred Carrillo Pech, Alethia F Toriz, Enrique Castaño, Ignacio Islas Flores, Luisa A Lopez Ochoa*

Recibido: 01/mayo/2024 – Publicado: 30/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-00

Resumen Antecedentes/Objetivo. La enfermedad de la meleira en papaya en México está asociada al Virus de la meleira de la papaya variante mexicana (PMeV-Mx) y se caracteriza por la exudación espontánea de látex en los frutos. El ORF2 de PMeV-Mx codifica una proteína que tiene motivos de ARN polimerasa dependiente de ARN (RdRp) la cual es esencial para la replicación viral. El objetivo de este estudio fue desarrollar un método para la producción y purificación de la proteína recombinante codificada por el ORF2 de PMeV-Mx (pORF2) en Escherichia coli y generar anticuerpos específicos para su detección.

Materiales y Métodos. El genoma de PMeV-Mx se analizó utilizando UGENE para predecir los ORFs e identificar el posible sitio deslizante. Se utilizaron plantas de papaya inoculadas con látex de frutos de plantas sintomáticas como reservorio del virus, la infección por PMeV-Mx se confirmó mediante RT-PCR. El ORF1 y ORF2 se amplificaron por PCR a partir de ADNc de papayas infectadas. Ambos se clonaron en el vector pGEM-T Easy y se transfirieron a pDONR221 y pDEST17 para su expresión en E. coli. La proteína recombinante 6xHis-pORF2 se expresó en la cepa BL21 de E. coli y se purificó bajo condiciones desnaturalizantes. La proteína purificada se utilizó para generar anticuerpos policlonales. La especificidad del antisuero y sus diluciones óptimas de trabajo se evaluaron mediante ensayos de inmunodetección, utilizando la proteína recombinante como diana y proteínas etiquetadas con His como controles negativos.

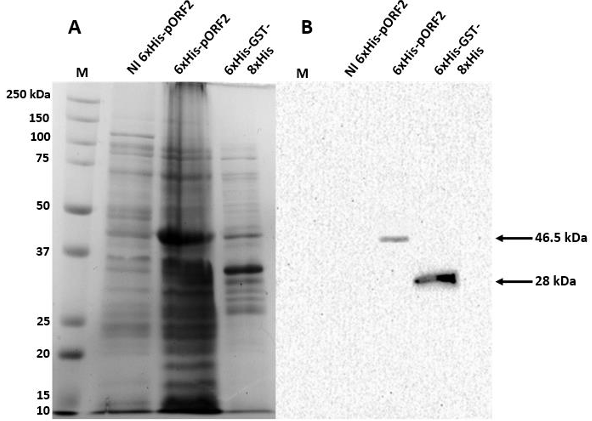
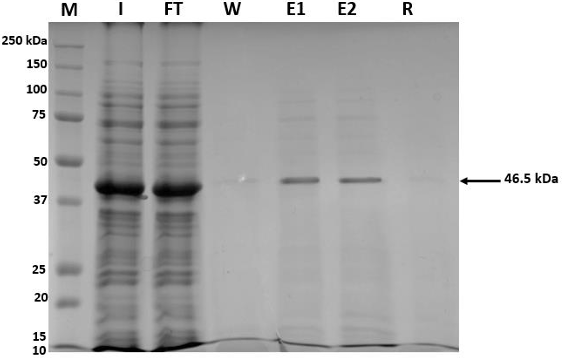
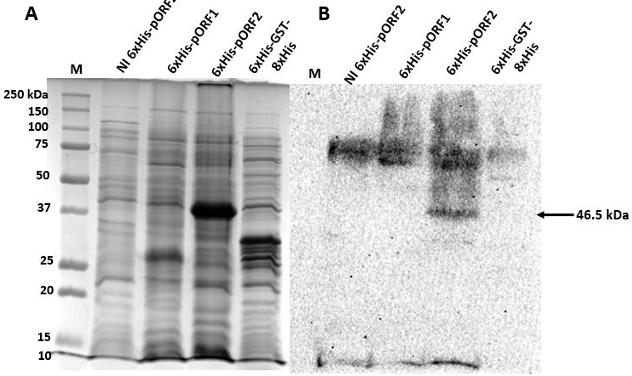
Resultados. Se logró la expresión y purificación de la proteína recombinante 6xHis-pORF2 de PMeV-Mx. Se detectó una banda de aproximadamente ~46,5 kDa, consistente con su peso molecular estimado. La expresión de la proteína se observó entre 2 y 6 horas después de la inducción. El análisis por western blot confirmó la presencia de la etiqueta de Histidinas y la integridad de la proteína recombinante. La purificación con resina Ni-NTA resultó en una banda intensa de ~46,5 kDa, junto con bandas menores de 15 a 150 kDa. Se generaron anticuerpos policlonales contra pORF2, los cuales reconocieron específicamente la proteína purificada en los ensayos de inmunodetección, con detección en diluciones de 1:500 a 1:3000. No se observó reactividad cruzada con los controles negativos, aunque se detectó una banda inespecífica de ~75 kDa en extractos de E. coli.

Conclusión. Se estableció un protocolo para la expresión, detección y purificación de la proteína recombinante 6xHis-pORF2 de PMeV-Mx en E. coli. Los anticuerpos policlonales generados en conejo reconocieron la proteína de interés en extractos proteicos de células bacterianas, aunque se requiere una mayor optimización para mejorar la especificidad. Estos anticuerpos contribuirán al desarrollo futuro de herramientas de diagnóstico y a la caracterización de la proteína en plantas.

Mostrar Figuras y/o Cuadros
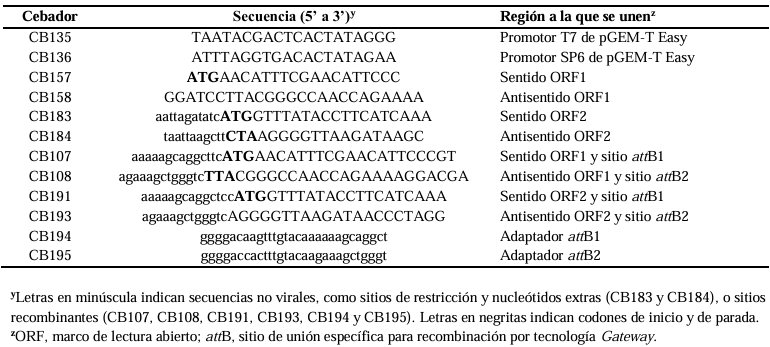
Cuadro 1. Cebadores utilizados para la obtención de los plásmidos pCB252 Y pCB253, mediante la clonación del ORF1 Y ORF2 de PMeV-Mx en el vector pDEST17.
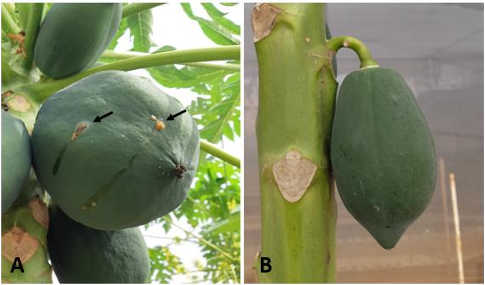
Figura 1. Frutos en plantas de papaya (<em>Carica papaya</em>) variedad Maradol cultivadas en casa sombra. A) Frutos de papayas que fueron inoculadas con látex de PMeV-Mx, mostrando los síntomas característicos de la enfermedad de la meleira, con exudación espontánea de látex. B) Frutos de plantas sanas de papaya, inoculadas solo con el amortiguador.
Figura 1. Frutos en plantas de papaya (Carica papaya) variedad Maradol cultivadas en casa sombra. A) Frutos de papayas que fueron inoculadas con látex de PMeV-Mx, mostrando los síntomas característicos de la enfermedad de la meleira, con exudación espontánea de látex. B) Frutos de plantas sanas de papaya, inoculadas solo con el amortiguador.
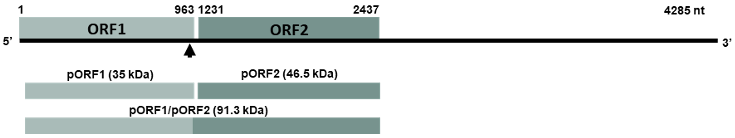
Figura 2. Organización genómica de PMeV-Mx. Los números indican la posición en nucleótidos (nt) y la cantidad total de nt en el genoma parcial. Los cuadros en el genoma representan el ORF1 y el ORF2, respectivamente. Los cuadros debajo representan los productos putativos del ORF1 y ORF2 (pORF1 y pORF2, respectivamente), así como el producto de fusión putativo que se podría obtener a partir de desplazamiento ribosomal en -1 nt (pORF1/pORF2). La flecha indica la posición de la secuencia deslizante.
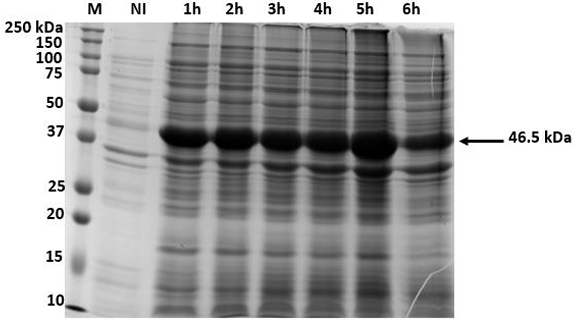
Figura 3. Ensayo de expresión temporal de la proteína recombinante 6xHis-pORF2 de PMeV-Mx empleando la fracción proteica correspondiente a los cuerpos de inclusión de <em>E. coli</em>. La expresión de 6xHis-pORF2 se indujo con 1 mM IPTG a 37 °C. Se retiraron alícuotas en los tiempos indicados (1 a 6 h después de la inducción con IPTG) y las proteínas se visualizaron mediante gel SDS teñido con Coomassie. M, marcador Bio-Rad 10-250 kDa; NI, control no inducido. La flecha indica la proteína 6xHis-pORF2 de 46,5 kDa.
Figura 3. Ensayo de expresión temporal de la proteína recombinante 6xHis-pORF2 de PMeV-Mx empleando la fracción proteica correspondiente a los cuerpos de inclusión de E. coli. La expresión de 6xHis-pORF2 se indujo con 1 mM IPTG a 37 °C. Se retiraron alícuotas en los tiempos indicados (1 a 6 h después de la inducción con IPTG) y las proteínas se visualizaron mediante gel SDS teñido con Coomassie. M, marcador Bio-Rad 10-250 kDa; NI, control no inducido. La flecha indica la proteína 6xHis-pORF2 de 46,5 kDa.
Figura 4. Detección de la proteína recombinante 6xHis-pORF2 de PMeV-Mx en extractos proteicos de <em>E. coli</em> empleando el anticuerpo monoclonal anti-His. A) Gel de SDS teñido con Coomassie. B) Western blot en membranas de PVDF incubadas con una dilución 1:1000 del anticuerpo monoclonal anti-His acoplado a peroxidasa de rábano (HRP). M, marcador Bio-Rad 10-250 kDa; NI y 6xHis-GST-8xHis, control no inducido y positivo, respectivamente; 6xHis-pORF2, fracción celular con la proteína recombinante pORF2 de PMeV-Mx expresada en células BL21. Las flechas indican las proteínas 6xHis-pORF2 (~46,5 kDa) y 6xHis-GST-8xHis (~28 kDa), respectivamente.
Figura 4. Detección de la proteína recombinante 6xHis-pORF2 de PMeV-Mx en extractos proteicos de E. coli empleando el anticuerpo monoclonal anti-His. A) Gel de SDS teñido con Coomassie. B) Western blot en membranas de PVDF incubadas con una dilución 1:1000 del anticuerpo monoclonal anti-His acoplado a peroxidasa de rábano (HRP). M, marcador Bio-Rad 10-250 kDa; NI y 6xHis-GST-8xHis, control no inducido y positivo, respectivamente; 6xHis-pORF2, fracción celular con la proteína recombinante pORF2 de PMeV-Mx expresada en células BL21. Las flechas indican las proteínas 6xHis-pORF2 (~46,5 kDa) y 6xHis-GST-8xHis (~28 kDa), respectivamente.
Figura 5. Purificación de la proteína recombinante 6xHis-pORF2 de PMeV-Mx con resina de Ni-NTA en condiciones desnaturalizantes. M, marcador Bio-Rad 10-250 kDa; I, <em>input</em>; Ft, <em>flow-through</em>; E1 y E2: primera y segunda elución, respectivamente; R, resina. La flecha indica la proteína 6xHis pORF2 (~46,5 kDa).
Figura 5. Purificación de la proteína recombinante 6xHis-pORF2 de PMeV-Mx con resina de Ni-NTA en condiciones desnaturalizantes. M, marcador Bio-Rad 10-250 kDa; I, input; Ft, flow-through; E1 y E2: primera y segunda elución, respectivamente; R, resina. La flecha indica la proteína 6xHis pORF2 (~46,5 kDa).
Figura 6. Detección de la proteína recombinante 6xHis-pORF2 de PMeV-Mx en extractos proteicos de <em>E. coli</em> empleando el anticuerpo policlonal anti-RdRp. A) Gel de SDS teñido con Coomassie. B) Western blot en membrana de Nitrocelulosa, incubada con el anticuerpo policlonal anti-RdRp de PMeV-Mx (dilución 1:1000) y el anticuerpo secundario anti-conejo acoplado a peroxidasa de rábano (HRP) (dilución 1:3000). M, marcador Bio-Rad 10-250 kDa; NI, fracción celular no inducida. 6xHis-pORF1 y 6xHis-GST-8xHis controles negativos. La flecha indica la proteína 6xHis-pORF2 (~46,5 kDa).
Figura 6. Detección de la proteína recombinante 6xHis-pORF2 de PMeV-Mx en extractos proteicos de E. coli empleando el anticuerpo policlonal anti-RdRp. A) Gel de SDS teñido con Coomassie. B) Western blot en membrana de Nitrocelulosa, incubada con el anticuerpo policlonal anti-RdRp de PMeV-Mx (dilución 1:1000) y el anticuerpo secundario anti-conejo acoplado a peroxidasa de rábano (HRP) (dilución 1:3000). M, marcador Bio-Rad 10-250 kDa; NI, fracción celular no inducida. 6xHis-pORF1 y 6xHis-GST-8xHis controles negativos. La flecha indica la proteína 6xHis-pORF2 (~46,5 kDa).
  • Vol. 2025, 43(2)
  • Nota Fitopatológica

Primer reporte de Fusarium sulawesiensis (FIESC 16) y Fusarium pernambucanum (FIESC 17) como causantes del tizón en cálices de jamaica (Hibiscus sabdariffa) en México

PorCandelario Ortega Acosta, Daniel Leobardo Ochoa Martínez*, Santo Ángel Ortega Acosta, Javier Hernández Morales, Francisco Palemón Alberto

Recibido: 28/febrero/2025 – Publicado: 30/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2502-1

Resumen Antecedentes/Objetivo. En la zona productora de jamaica (Hibiscus sabdariffa) del estado de Guerrero, México, se detectaron plantaciones con alta incidencia de tizón del cáliz. El objetivo de este estudio fue conocer al agente causal de esta enfermedad.

Materiales y Métodos. Se recolectaron cálices con síntomas y asintomáticos de las variedades “Criolla de Guerrero”, “Sudán” y “China Negra” en los municipios de Ayutla y Tecoanapa, Guerrero. De los cálices con síntomas, se aislaron diferentes cepas de hongos, de las cuales se seleccionaron dos para realizar pruebas de patogenicidad en condiciones de invernadero y se identificaron mediante la amplificación y secuenciación del gen factor de elongación -1α (EF-1α) con los iniciadores EF1-728F/EF1-986R.

Resultados y Discusión. Las secuencias obtenidas se compararon con las existentes en las bases de datos del NCBI y Fusarium MLST y correspondieron con el complejo de especies Fusarium incarnatum-equiseti (FIESC) 16 y 17, llamadas actualmente Fusarium sulawesiensis y Fusarium pernambucanum, respectivamente. En las pruebas de patogenicidad, las cepas inoculadas indujeron síntomas similares a los observados en campo. Se ha comprobado que el complejo FIESC produce la micotoxina tricoteceno. Por lo tanto, es necesario realizar estudios para determinar la presencia de esta toxina en la jamaica, considerando que su principal uso es la preparación de bebidas refrescantes, lo cual podría representar un riesgo para la salud.

Conclusión. Este es el primer reporte de Fusarium sulawesiensis y Fusarium pernambucanum como causantes del tizón del cáliz de la jamaica en México y el mundo.

Mostrar Figuras y/o Cuadros
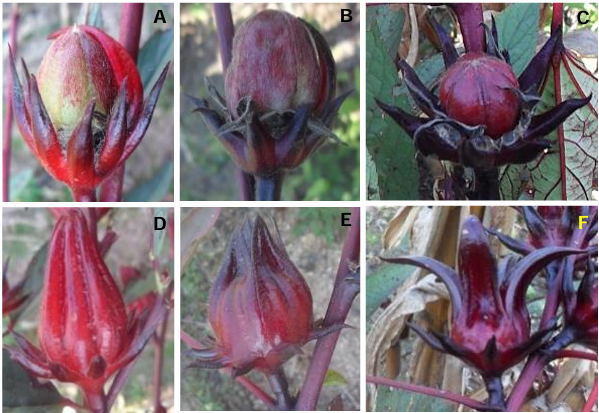
Figura 1. Síntomas del tizón de los cálices en tres variedades de jamaica; se observa que la cápsula queda expuesta debido al atizonamiento de los cálices; A. “Criolla de Guerrero”. B. “China Negra”. C. “Sudán”. Cálices asintomáticos de las diferentes variedades; D. “Criolla de Guerrero”, E= “China Negra” y F= “Sudán”.
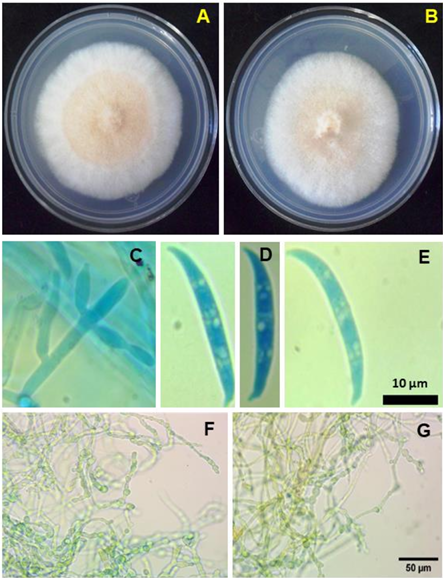
Figura 2. Características morfológicas del complejo de especies <em>Fusarium incarnatum-equiseti</em>. A-B = Colonias desarrolladas en PDA durante una semana a 28 °C. A = F. sulawesiensis aislamiento BOLCHIN. B = <em>F. pernambucanum</em> aislamiento BOLCRIO. C = Monofiálides del aislamiento BOLCHIN. D y E = Macroconidios con célula basal en forma de pie de <em>F. sulawesiensis</em> y <em>F. pernambucanum</em>, respectivamente. F y G = Clamidosporas en cadena de <em>F. sulawesiensis</em> y <em>F. pernambucanum</em>, respectivamente.
Figura 2. Características morfológicas del complejo de especies Fusarium incarnatum-equiseti. A-B = Colonias desarrolladas en PDA durante una semana a 28 °C. A = F. sulawesiensis aislamiento BOLCHIN. B = F. pernambucanum aislamiento BOLCRIO. C = Monofiálides del aislamiento BOLCHIN. D y E = Macroconidios con célula basal en forma de pie de F. sulawesiensis y F. pernambucanum, respectivamente. F y G = Clamidosporas en cadena de F. sulawesiensis y F. pernambucanum, respectivamente.
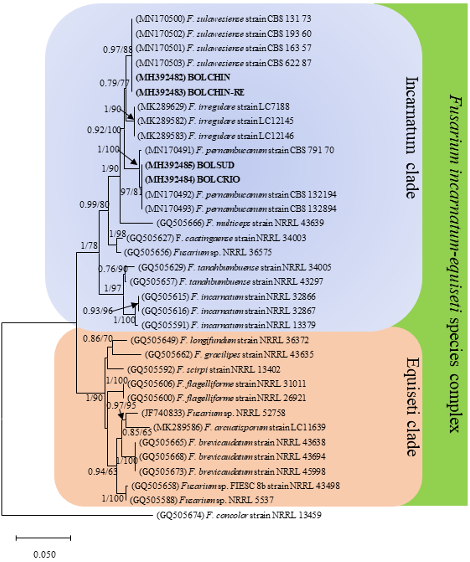
Figura 3. Árbol de máxima verosimilitud (ML), del complejo de especies <em>Fusarium incarnatum-equiseti</em> del gen parcial EF-1α. Topología similar se generó usando inferencia bayesiana (BI). Las probabilidades posteriores bayesianas (PP> 0.5) y los valores de soporte Bootstrap (BS> 50) se muestran en los nodos (PP/BS). Las secuencias de este estudio se encuentran en negrita. La barra de escala indica el número de cambios esperados por sitio. *<em>F. sulawesiense</em> actualmente reconocida como <em>F. sulawesiensis</em> (Xia <em>et al</em>., 2019).
Figura 3. Árbol de máxima verosimilitud (ML), del complejo de especies Fusarium incarnatum-equiseti del gen parcial EF-1α. Topología similar se generó usando inferencia bayesiana (BI). Las probabilidades posteriores bayesianas (PP> 0.5) y los valores de soporte Bootstrap (BS> 50) se muestran en los nodos (PP/BS). Las secuencias de este estudio se encuentran en negrita. La barra de escala indica el número de cambios esperados por sitio. *F. sulawesiense actualmente reconocida como F. sulawesiensis (Xia et al., 2019).
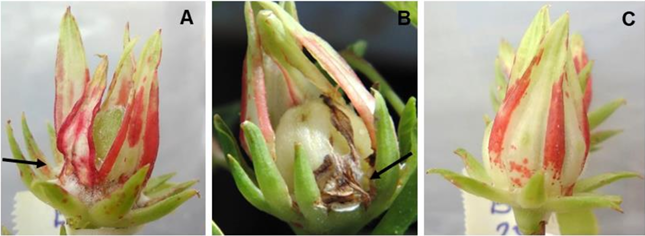
Figura 4. Pruebas de patogenicidad en cálices de jamaica después de 12 días de la inoculación artificial en condiciones de invernadero. A= <em>F. sulawesiensis</em> aislamiento BOLCHIN. B= <em>F.</em> <em>pernambucanum</em> aislamiento BOLCRIO. C=Cáliz en el que únicamente se lesionó la parte basal con un palillo de diente estéril.
Figura 4. Pruebas de patogenicidad en cálices de jamaica después de 12 días de la inoculación artificial en condiciones de invernadero. A= F. sulawesiensis aislamiento BOLCHIN. B= F. pernambucanum aislamiento BOLCRIO. C=Cáliz en el que únicamente se lesionó la parte basal con un palillo de diente estéril.
  • Vol. 2025, 43(2)
  • Nota Fitopatológica

Caracterización morfológica y molecular de Fusarium incarnatum asociado a la Malformación del Mango (Mangifera indica) en Sinaloa, México

PorLeonardo Román Román, Tomás Aarón Vega Gutiérrez, Martín Abraham Tirado Ramírez, Luz Llarely Cázarez Flores, Lorena Molina Cárdenas*, Indira Rojo Báez

Recibido: 01/julio/2024 – Publicado: 29/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2407-1

Resumen Antecedentes/Objetivo. La malformación del mango es una de las principales enfermedades que ataca a dicho cultivo y por ende limita su producción a nivel mundial. El objetivo del presente estudio fue identificar a nivel morfológico y molecular al agente fitopatógeno asociado a la malformación del mango en Sinaloa, México.

Materiales y Métodos. En el año 2018, se colectaron muestras con síntomas de malformación, como panículas compactadas y erupción de múltiples brotes vegetativos, en huertas de mango en Sinaloa. Con base en las características morfológicas los aislados se identificaron como Fusarium incarnatum. La identificación molecular se realizó mediante la amplificación del gen parcial del factor de elongación (TEF-1α) y análisis filogenético. Se realizaron pruebas de patogenicidad en plantas de mango, mediante inoculación artificial.

Resultados. Los síntomas en las plantas inoculadas se observaron a las siete semanas después de la inoculación, con un rango de 2 a 4 en la escala de severidad de la enfermedad, en las plantas testigo no se observaron síntomas. Del tejido sintomático se aisló de nuevo el patógeno e identificó por medio de morfología, con ello cumpliendo con los postulados de Koch.

Conclusión. Fusarium incarnatum se asocia por primera vez causando la malformación en mango, en Sinaloa, México.

Mostrar Figuras y/o Cuadros
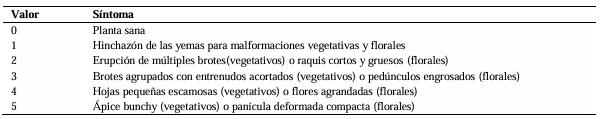
Cuadro 1. Escala de severidad de la enfermedad de malformación propuesta por Iqbal <em>et al</em>. (2006).
Cuadro 1. Escala de severidad de la enfermedad de malformación propuesta por Iqbal et al. (2006).
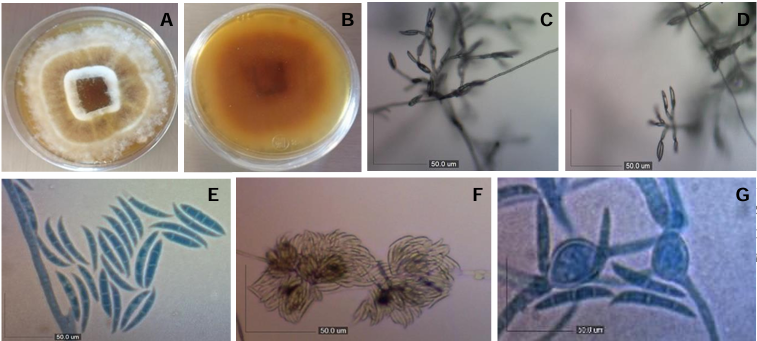
Figura 1. A-G. Características morfológicas de <em>Fusarium incarnatum</em>. A y B) Cultivo en PDA; C y D) Microconidias <em>in situ</em>; E) Microconidias y macroconidias; F) Esporodoquios color café; G) Clamidosporas intercaladas y solitarias en medio de cultivo CLA. Barras= 50 μm.
Figura 1. A-G. Características morfológicas de Fusarium incarnatum. A y B) Cultivo en PDA; C y D) Microconidias in situ; E) Microconidias y macroconidias; F) Esporodoquios color café; G) Clamidosporas intercaladas y solitarias en medio de cultivo CLA. Barras= 50 μm.
Figura 2. A–D) Síntomas de malformación en plantas de mango corriente inoculadas con <em>Fusarium incarnatum</em> (95VESIN y 121FRSIN); E) Planta de mango testigo.
Figura 2. A–D) Síntomas de malformación en plantas de mango corriente inoculadas con Fusarium incarnatum (95VESIN y 121FRSIN); E) Planta de mango testigo.
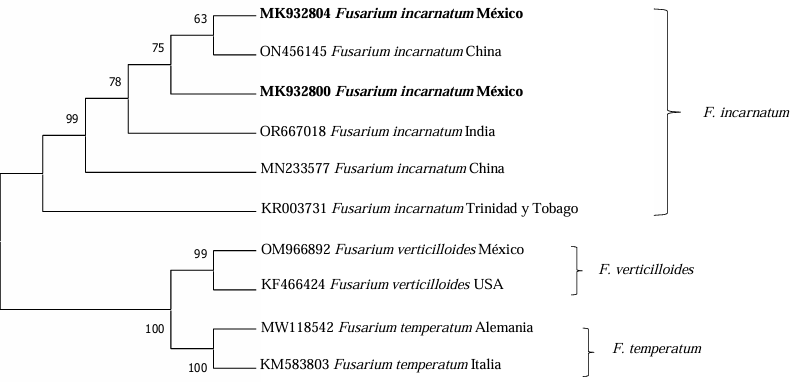
Figura 3. Filograma inferido por Neighbor Joining para secuencias parciales del gen TEF-1α de especies de <em>Fusarium</em>. Los valores en los nodos representan las puntuaciones de arranque basadas en 1000 réplicas. Las secuencias MK932800 y MK932804 provienen del presente estudio.
Figura 3. Filograma inferido por Neighbor Joining para secuencias parciales del gen TEF-1α de especies de Fusarium. Los valores en los nodos representan las puntuaciones de arranque basadas en 1000 réplicas. Las secuencias MK932800 y MK932804 provienen del presente estudio.
  • Vol. 2025, 43(2)
  • Artículo Científico

Interacción competitiva entre Rotylenchulus reniformis y Meloidogyne enterolobii en plantas de tomate y pepino

PorMaría Trinidad Valdez Morales, José Armando Carrillo Fasio, Raymundo Saúl García Estrada, Josefina León Félix, José Ángel Martínez Gallardo, Juan Manuel Tovar Pedraza*

Recibido: 22/septiembre/2024 – Publicado: 29/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2409-2

Resumen Antecedentes/Objetivo. La producción de tomate (Solanum lycopersicum) y pepino (Cucumis sativus) se ve afectada por los nematodos Rotylenchulus reniformis y Meloidogyne enterolobii; sin embargo, se desconoce la interacción entre estos dos nematodos en dichas especies vegetales. El objetivo de este estudio fue determinar la interacción de R. reniformis y M. enterolobii en plantas de tomate y pepino mediante inoculaciones artificiales bajo condiciones de invernadero.

Materiales y Métodos. Plántulas de 21 días de edad se inocularon con 2000 juveniles (J2) de cada nematodo por planta. El experimento se realizó bajo un diseño completamente al azar con tres factores y seis tratamientos: T1= R. reniformis; T2= M. enterolobii; T3= se inoculó R. reniformis y 15 días después se inoculó M. enterolobii; T4= se inoculó M. enterolobii y 15 días después se inoculó R. reniformis; T5= ambas especies se inocularon el mismo día; T6= testigo sin inocular. Se registró el factor de reproducción (FR) de ambos nematodos, así como el índice de agallamiento para M. enterolobii y el porcentaje de necrosis de raíz para R. reniformis a los 30 y 50 días después de la inoculación.

Resultados. En plantas de pepino, M. enterolobii redujo su reproducción hasta en un 73 % en presencia de R. reniformis, mientras que en plantas de tomate su reproducción disminuyó en un 52 %, con una reducción en el índice de agallamiento de 72 y 60 % en plantas de pepino y tomate, respectivamente. Por otro lado, R. reniformis redujo su reproducción en un 72 % en plantas de pepino y en un 67 % en plantas de tomate en presencia de M. enterolobii, observándose una disminución en la severidad de síntomas de 78 y 77 % en raíces de pepino y tomate, respectivamente.

Conclusión. En los tratamientos donde una especie se inoculó antes que la otra, la especie inoculada primero presentó un mayor FR y causó una mayor severidad de la enfermedad. En las co-inoculaciones simultáneas, ambos nematodos redujeron su FR y causaron una menor severidad de síntomas en plantas de tomate y pepino.

Mostrar Figuras y/o Cuadros
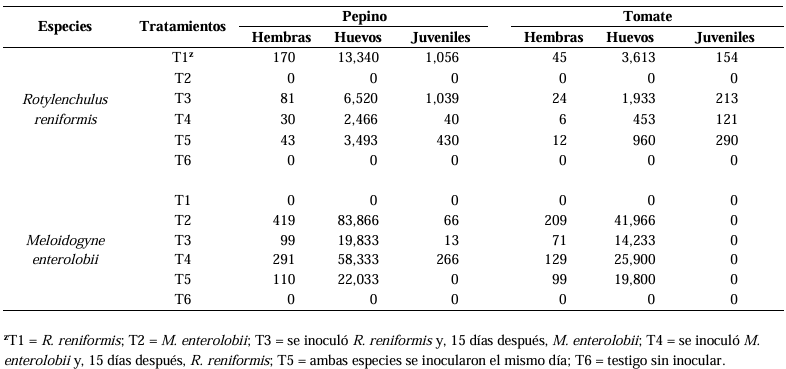
Cuadro 1. Número de hembras, huevos y juveniles de <em>R. reniformis</em> y <em>M. enterolobii</em> por tratamiento en plantas de pepino y tomate a los 50 días después de la inoculación.
Cuadro 1. Número de hembras, huevos y juveniles de R. reniformis y M. enterolobii por tratamiento en plantas de pepino y tomate a los 50 días después de la inoculación.
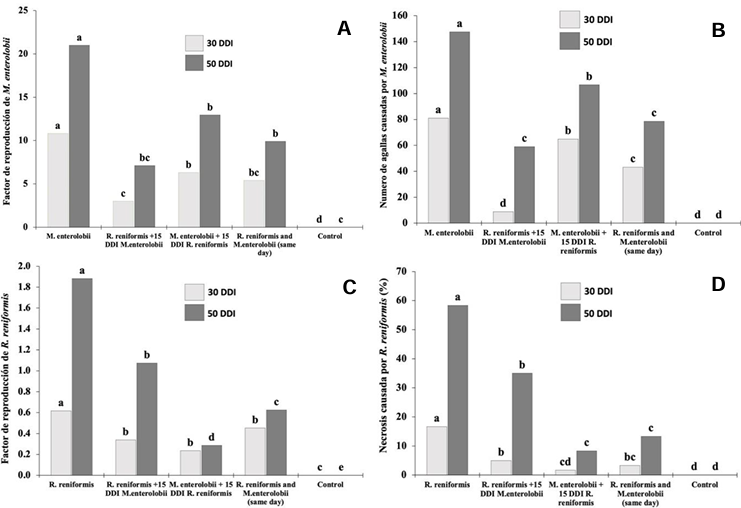
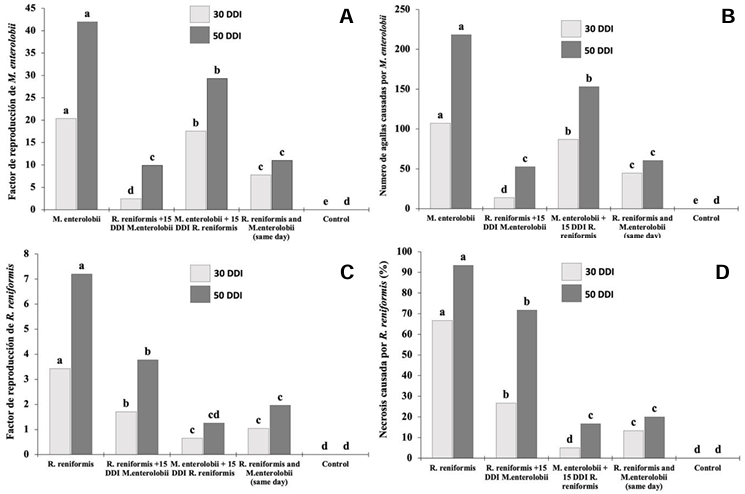
Figura 1. Reproducción y severidad de <em>R. reniformis</em> y <em>M. enterolobii</em> en plantas de pepino a los 30 y 50 días después de la inoculación (ddi). A) Factor de reproducción de <em>M. enterolobii</em>. B) Número de agallas causadas por <em>M. enterolobii</em>. C) Factor de reproducción de <em>R. reniformis</em>. D) Porcentaje de necrosis radical causada por <em>R. reniformis</em>. La comparación de medias se realizó entre barras del mismo color; medias que no comparten letra son significativamente diferentes.
Figura 1. Reproducción y severidad de R. reniformis y M. enterolobii en plantas de pepino a los 30 y 50 días después de la inoculación (ddi). A) Factor de reproducción de M. enterolobii. B) Número de agallas causadas por M. enterolobii. C) Factor de reproducción de R. reniformis. D) Porcentaje de necrosis radical causada por R. reniformis. La comparación de medias se realizó entre barras del mismo color; medias que no comparten letra son significativamente diferentes.
Figura 2. Reproducción y severidad de <em>R. reniformis</em> y <em>M. enterolobii</em> en plantas de tomate a los 30 y 50 días después de la inoculación (ddi). A) Factor de reproducción de M. enterolobii. B) Número de agallas causadas por <em>M. enterolobii</em>. C) Factor de reproducción de <em>R. reniformis</em>. D) Porcentaje de necrosis radicular causada por <em>R. reniformis</em>. La comparación de medias se realizó entre barras del mismo color; medias que no comparten letra son significativamente diferentes.
Figura 2. Reproducción y severidad de R. reniformis y M. enterolobii en plantas de tomate a los 30 y 50 días después de la inoculación (ddi). A) Factor de reproducción de M. enterolobii. B) Número de agallas causadas por M. enterolobii. C) Factor de reproducción de R. reniformis. D) Porcentaje de necrosis radicular causada por R. reniformis. La comparación de medias se realizó entre barras del mismo color; medias que no comparten letra son significativamente diferentes.
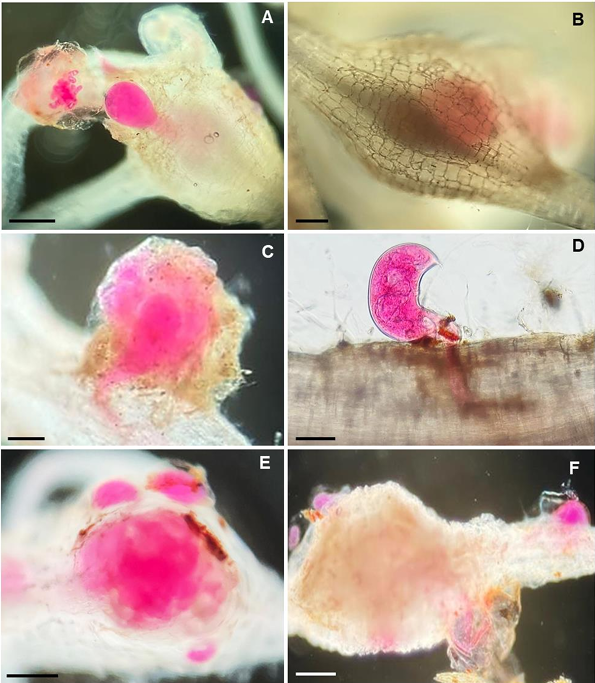
Figura 3. Micrografías de <em>Rotylenchulus reniformis</em> y <em>Meloidogyne enterolobii</em> parasitando raíces de pepino y tomate a los 50 días después de la inoculación (ddi). A) Hembra de <em>M. enterolobii</em> en raíz de pepino. B) Hembra de <em>M. enterolobii</em> formando agallas en raíz de tomate. C) Hembra de <em>R. reniformis</em> en raíz de pepino. D) Hembra de <em>R. reniformis</em> en raíz de tomate. E) Raíz de pepino con una agalla causada por M. enterolobii y tres hembras maduras de <em>R. reniformis</em> alrededor. F) Raíz de tomate con una agalla inducida por <em>M. enterolobii</em> y necrosis causada por <em>R. reniformis</em>. Barras de escala: A = 300 μm; B, E, F = 500 μm; C, D = 100 μm.
Figura 3. Micrografías de Rotylenchulus reniformis y Meloidogyne enterolobii parasitando raíces de pepino y tomate a los 50 días después de la inoculación (ddi). A) Hembra de M. enterolobii en raíz de pepino. B) Hembra de M. enterolobii formando agallas en raíz de tomate. C) Hembra de R. reniformis en raíz de pepino. D) Hembra de R. reniformis en raíz de tomate. E) Raíz de pepino con una agalla causada por M. enterolobii y tres hembras maduras de R. reniformis alrededor. F) Raíz de tomate con una agalla inducida por M. enterolobii y necrosis causada por R. reniformis. Barras de escala: A = 300 μm; B, E, F = 500 μm; C, D = 100 μm.
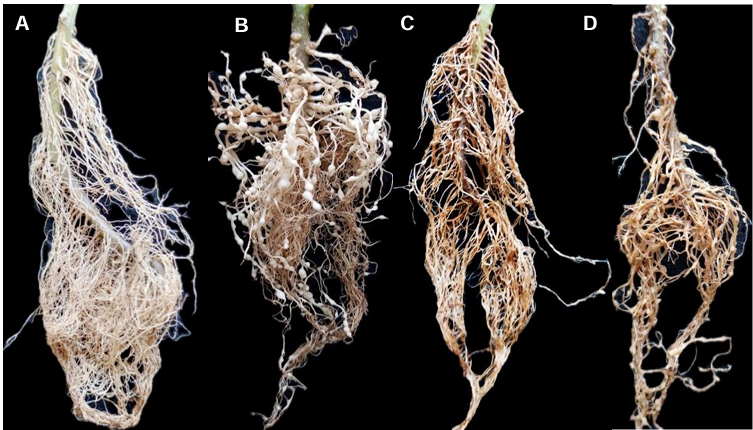
Figura 4. Raíces de tomate a los 50 días después de la inoculación (ddi). A) Testigo sin inoculación. B) Raíz con agallas causadas por <em>M. enterolobii</em>. C) Raíz con raquitismo y necrosis causados por <em>R. reniformis</em>. D) Raíz con agallas, necrosis y síntomas de raquitismo, inoculada simultáneamente con <em>R. reniformis</em> y <em>M. enterolobii</em>.
Figura 4. Raíces de tomate a los 50 días después de la inoculación (ddi). A) Testigo sin inoculación. B) Raíz con agallas causadas por M. enterolobii. C) Raíz con raquitismo y necrosis causados por R. reniformis. D) Raíz con agallas, necrosis y síntomas de raquitismo, inoculada simultáneamente con R. reniformis y M. enterolobii.
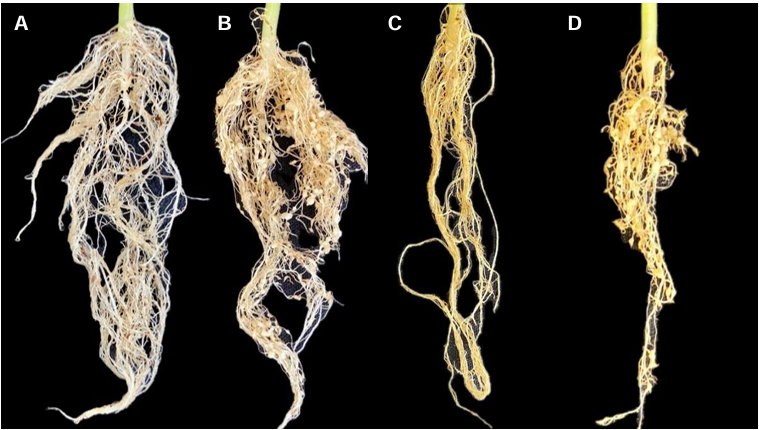
Figura 5. Raíces de pepino a los 50 días después de la inoculación (ddi). A) Testigo sin inoculación. B) Raíz con agallas causadas por <em>M. enterolobii</em>. C) Raíz con síntomas de raquitismo y necrosis causados por <em>R. reniformis</em>. D) Raíz con agallas, necrosis y síntomas de raquitismo, inoculada simultáneamente con <em>R. reniformis</em> y <em>M. enterolobii</em>.
Figura 5. Raíces de pepino a los 50 días después de la inoculación (ddi). A) Testigo sin inoculación. B) Raíz con agallas causadas por M. enterolobii. C) Raíz con síntomas de raquitismo y necrosis causados por R. reniformis. D) Raíz con agallas, necrosis y síntomas de raquitismo, inoculada simultáneamente con R. reniformis y M. enterolobii.
  • Vol. 2025, 43(2)
  • Artículo Científico

Etiología del anillamiento del pedúnculo de frutos de aguacate (Persea americana) var. Hass

PorMaría del Carmen Ramírez Mendoza, Rómulo García Velasco*, Juan Carlos Reyes Alemán, Gerardo Justino González Díaz

Recibido: 02/octubre/2024 – Publicado: 24/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2310-3

Resumen Antecedentes/Objetivo. En los últimos años se ha manifestado un problema fitopatológico en el cultivo de aguacate cuya etiología es desconocida, dicha enfermedad se conoce como anillamiento de pedúnculo, afecta principalmente a frutos de la variedad “Hass”. El objetivo de la presente investigación fue determinar el agente etiológico involucrado en el desarrollo de la enfermedad.

Materiales y Métodos. Se realizó una colecta de frutos de aguacate con síntomas característicos del anillamiento: pedúnculo de color café y coloración rojiza a purpura en el pericarpio, las colectas se realizaron en los municipios de Coatepec de Harinas, Donato Guerra y Malinalco Estado de México. En laboratorio se realizó el aislamiento de hongos en medio PDA. Se identificaron tres especies de hongos mediante análisis morfológico, y se confirmó a nivel de ADN por PCR. Se realizaron pruebas de patogenicidad de las tres especies identificadas individuales y en combinaciones. Las variables evaluadas fueron incidencia, severidad, días a manifestación de síntomas y porcentaje de frutos con mesocarpio dañado.

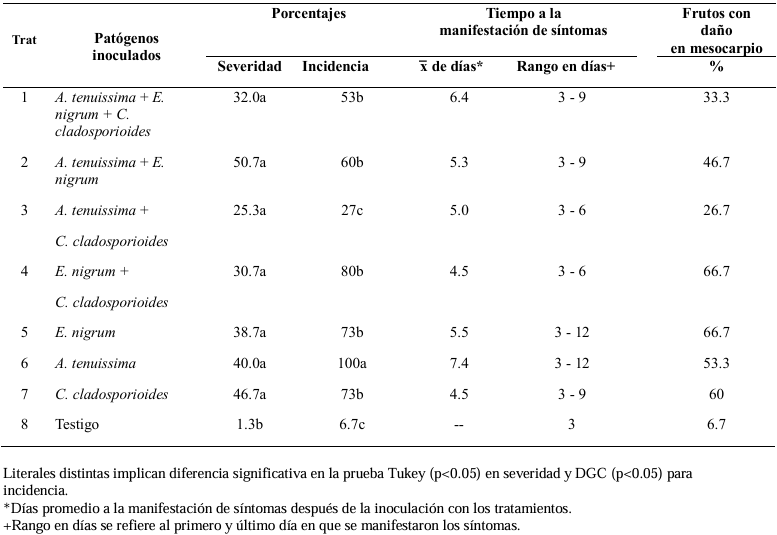
Resultados. Los hongos asociados al daño por anillamiento de pedúnculo en frutos de aguacate var. “Hass” se identificaron como Alternaria tenuissima, Cladosporium cladosporioides y Epicoccum nigrum. A. tenuissima mostró su alta capacidad patogénica para inducir el anillamiento de pedúnculo en frutos de aguacate con 100 % de incidencia y 40% de severidad. Es preciso señalar, que los datos de incidencia, severidad y daño en mesocarpio son mayores en los tratamientos cuando actúan de manera independiente A. tenuissima, C. cladosporioides y E. nigrum que en consorcios.

Conclusión. Se demostró que A. tenuissima, C. cladosporioides y E. nigrum inoculados independientemente y en consorcios replicaron los síntomas del anillamiento: pedúnculo en frutos de color café y coloración rojiza a purpura en el pericarpio y la momificación de frutos.

Mostrar Figuras y/o Cuadros
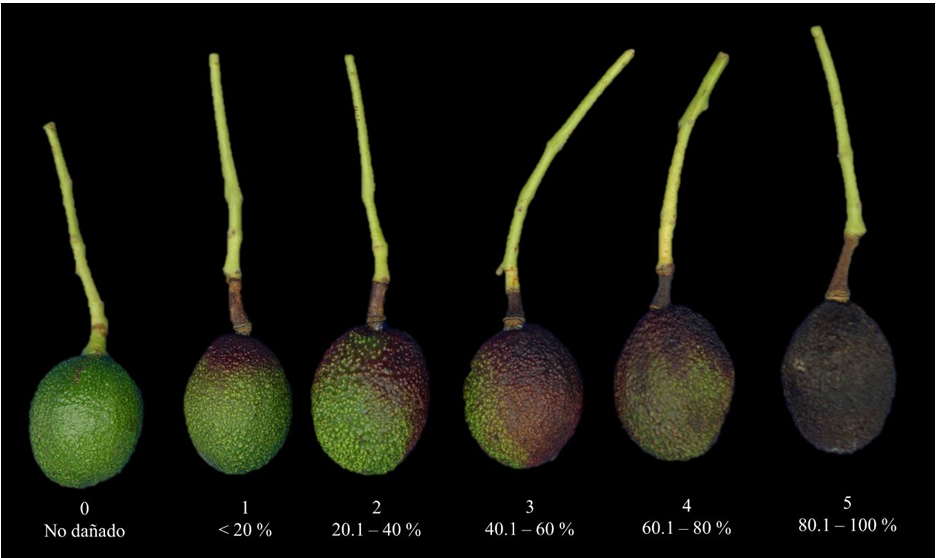
Figura 1.  Escala de severidad del anillamiento de pedúnculo en frutos de aguacate var “Hass”, propuesta para medir lesiones en frutos inoculados.
Figura 1. Escala de severidad del anillamiento de pedúnculo en frutos de aguacate var “Hass”, propuesta para medir lesiones en frutos inoculados.
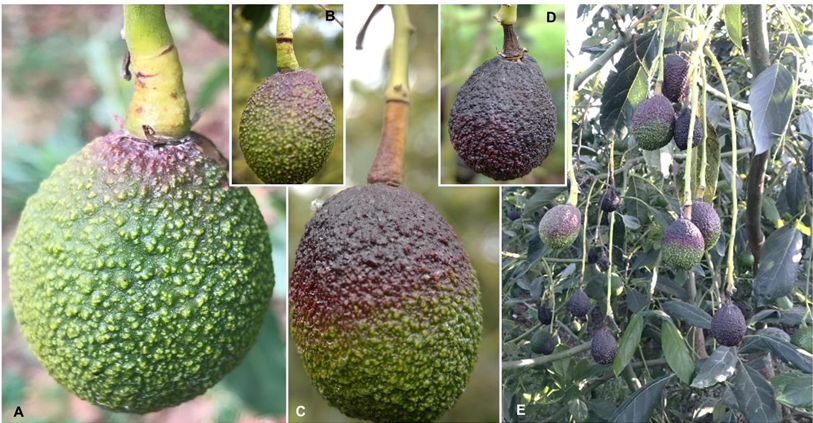
Figura 2. Síntomas típicos del anillamiento de pedúnculo en frutos de aguacate var. “Hass”. A y B) Frutos con anillamiento en el pedúnculo de color café obscuro; C) Pedúnculo corchoso y fruto de color púrpura en el exocarpio; D) Fase final del anillamiento, fruto de aguacate momificado y pedúnculo necrosado; E) Rama con frutos en las diferentes fases del anillamiento.
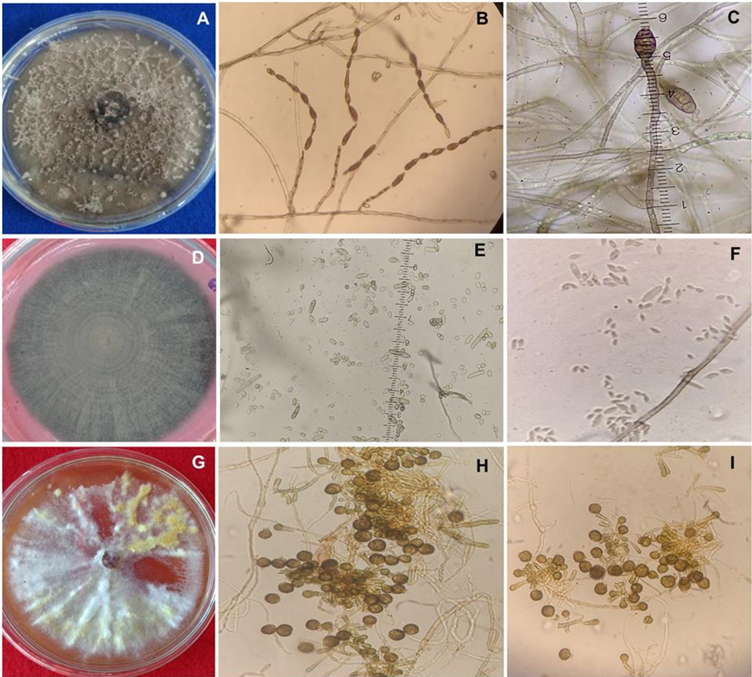
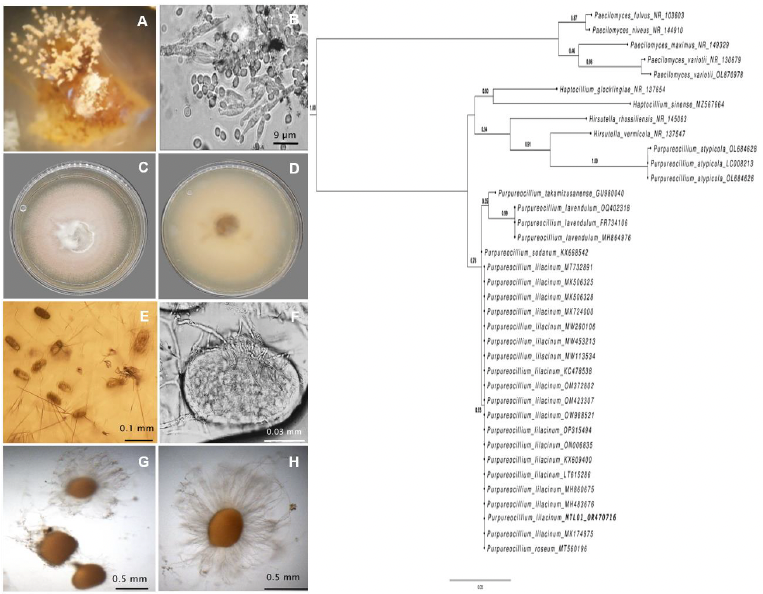
Figura 3. Características culturales y morfométricas de <em>Alternaria tenuissima</em>, <em>C. cladosporioides</em> y <em>E. nigrum</em>. A) Colonia de <em>A. tenuissima</em> de crecimiento plano cultivada en medio PCA. B) Conidios en cadena de 4-13 originados de conidióforos primarios de crecimiento erecto. C) Medición de conidios muriformes con reglilla micrométrica. D) Colonia de <em>C. cladosporioides</em> con micelio flocoso cultivada en medio PDA, parte frontal. E) Medición de conidios unicelulares. F) Conidios solitarios desprendidos del conidióforo. G) Colonia de <em>Epicoccum nigrum</em> de crecimiento plano y desarrollo de micelio algodonoso en medio PDA. H) Formación de clamidosporas multicelulares. I) Micelio septado y clamidosporas globosas de <em>E. nigrum</em>.
Figura 3. Características culturales y morfométricas de Alternaria tenuissima, C. cladosporioides y E. nigrum. A) Colonia de A. tenuissima de crecimiento plano cultivada en medio PCA. B) Conidios en cadena de 4-13 originados de conidióforos primarios de crecimiento erecto. C) Medición de conidios muriformes con reglilla micrométrica. D) Colonia de C. cladosporioides con micelio flocoso cultivada en medio PDA, parte frontal. E) Medición de conidios unicelulares. F) Conidios solitarios desprendidos del conidióforo. G) Colonia de Epicoccum nigrum de crecimiento plano y desarrollo de micelio algodonoso en medio PDA. H) Formación de clamidosporas multicelulares. I) Micelio septado y clamidosporas globosas de E. nigrum.
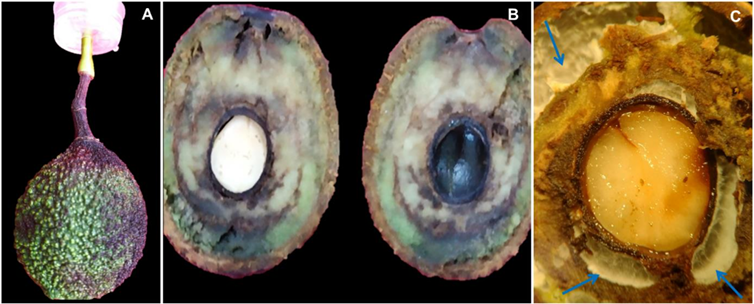
Figura 4. Sintomatología desarrollada en frutos inoculados con <em>Epicoccum nigrum</em>. A) Fruto con daño en pedúnculo y coloración púrpura en exocarpio. B) Corte longitudinal en fruto que muestra lesiones de color café a oscuro en el mesocarpio. C) Crecimiento de micelio en las cavidades del mesocarpio del fruto, observado bajo microscopio estereoscópico.
Figura 4. Sintomatología desarrollada en frutos inoculados con Epicoccum nigrum. A) Fruto con daño en pedúnculo y coloración púrpura en exocarpio. B) Corte longitudinal en fruto que muestra lesiones de color café a oscuro en el mesocarpio. C) Crecimiento de micelio en las cavidades del mesocarpio del fruto, observado bajo microscopio estereoscópico.
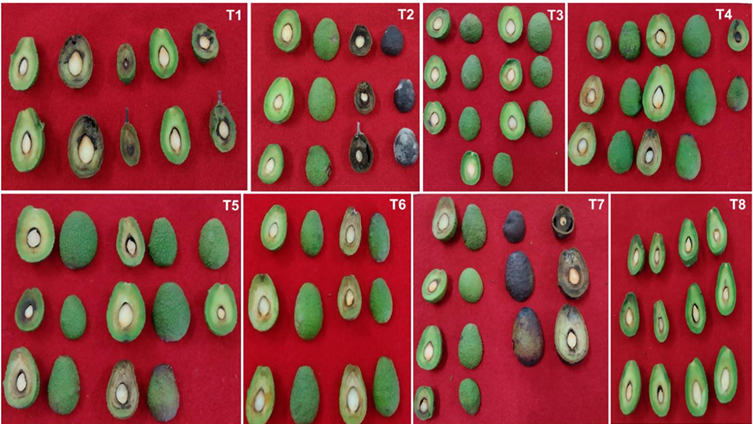
Figura 5. Síntomas observados en frutos inoculados con los diferentes hongos, en conjunto y de manera independiente: T1) A. tenuissima + <em>E. nigrum</em> + <em>C. cladosporioides</em>. T2) <em>A. tenuissima</em> + <em>E. nigrum</em>. T3) <em>A. tenuissima</em> + <em>C. cladosporioides</em>. T4) <em>E. nigrum</em> + <em>C. cladosporioides</em>. T5) <em>E. nigrum</em>. T6) <em>A. tenuissima</em>. T7) <em>C. cladosporioides</em>. T8) Testigo.
Figura 5. Síntomas observados en frutos inoculados con los diferentes hongos, en conjunto y de manera independiente: T1) A. tenuissima + E. nigrum + C. cladosporioides. T2) A. tenuissima + E. nigrum. T3) A. tenuissima + C. cladosporioides. T4) E. nigrum + C. cladosporioides. T5) E. nigrum. T6) A. tenuissima. T7) C. cladosporioides. T8) Testigo.
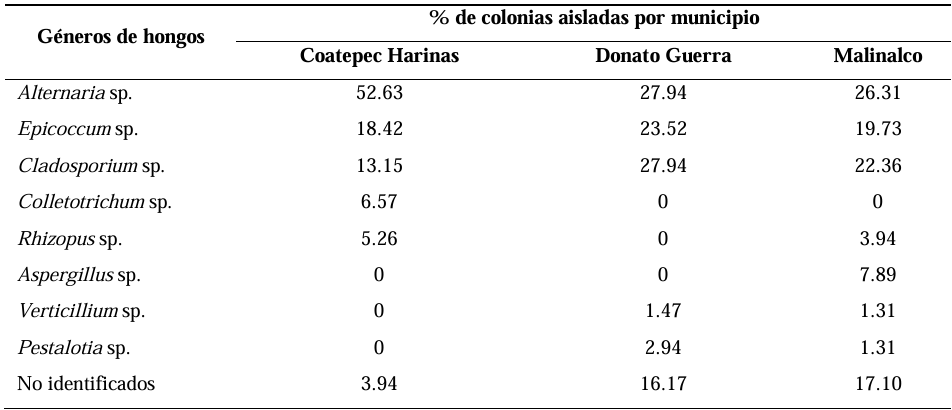
Cuadro 1. Frecuencia de hongos aislados a partir de pedúnculos de frutos de aguacate var. “Hass” colectados en huertas comerciales de los municipios de Coatepec Harinas, Donato Guerra y Malinalco, Estado de México, México.
Cuadro 2. Incidencia, severidad y tiempo a la aparición de síntomas en frutos de aguacate var. “Hass” inoculados con A. tenuissima, <em>C. cladosporioides</em>, <em>E. nigrum</em> y sus combinaciones.
Cuadro 2. Incidencia, severidad y tiempo a la aparición de síntomas en frutos de aguacate var. “Hass” inoculados con A. tenuissima, C. cladosporioides, E. nigrum y sus combinaciones.
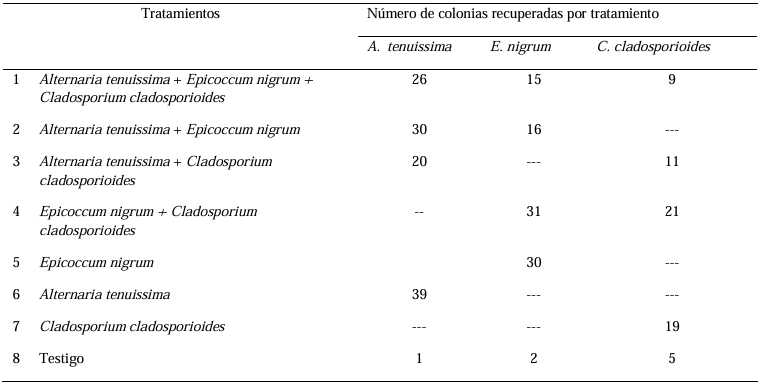
Cuadro 3. Número de colonias y especies de hongos recuperados de las pruebas de patogenicidad <em>in vitro</em> sobre frutos de aguacate var. “Hass”.
Cuadro 3. Número de colonias y especies de hongos recuperados de las pruebas de patogenicidad in vitro sobre frutos de aguacate var. “Hass”.
  • Vol. 2025, 43(2)
  • Artículo Científico

Caracterización e identificación de Burkholderia glumae en semillas de variedades de arroz (Oryza sativa) cultivadas en México

PorGabriel Alejandro Hernández Nava, Sergio Aranda Ocampo*, Guadalupe Valdovinos Ponce, Obdulia Segura León, Mónica Osnaya González, Eridani García Vázquez, Sergio Ramírez Rojas, Leonardo Hernández Aragón

Recibido: 19/agosto/2024 – Publicado: 21/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2408-3

Resumen Antecedentes/Objetivo. Burkholderia glumae es el patógeno transmitido por semilla más importante que disminuye el rendimiento de arroz (Oryza sativa). En 2022, se observaron semillas con síntomas de manchado de glumas en México. El objetivo de esta investigación fue caracterizar e identificar el agente causal de los síntomas de manchado de glumas de 11 variedades de arroz cultivadas en México.

Materiales y Métodos. Se analizaron 37 muestras de semillas. De cada muestra se desinfestó 1 g de semilla con hipoclorito de sodio y se maceraron en amortiguador PBS; de aquí, se sembraron en los medios de cultivo SPG, B de King y Wilbrinks. Las cepas bacterianas aisladas se caracterizaron mediante API20 y se identificaron por amplificación y secuenciación parcial de genes universales y específicos. La patogenicidad se evaluó por inoculación de una suspensión de 3.5 x 10⁸ UFC mL-1 en semillas y plántulas de arroz de las variedades Milagro Filipino e INIFLAR-R.

Resultados. De 37 muestras, en nueve (24.3 %) se obtuvieron 11 aislados con la morfología descrita para B. glumae. La caracterización mediante API20 identificó dos grupos con perfil metabólico diferente entre las 11 cepas. Por PCR, las 11 cepas se identificaron con 100% de cobertura como B. glumae con los iniciadores universales 8F 1492R, y específicos a B. glumae Bglu3F-Bglu3R y OgF-OgR. La patogenicidad de B. glumae se confirmó en semillas y plántulas de arroz de las variedades Milagro Filipino e INIFLAR-R.

Conclusión. B. glumae es el agente causal de los síntomas de manchado de glumas de semillas de arroz y se detectó en semillas de siete variedades (63.6 %): GOLFO FL-16, INIFLAR-R, INIFLAR-RT, IRGA, Milagro Filipino, Morelos A-98 y PACÍFICO FL-15 de 11 variedades de arroz cultivadas en México.

Mostrar Figuras y/o Cuadros
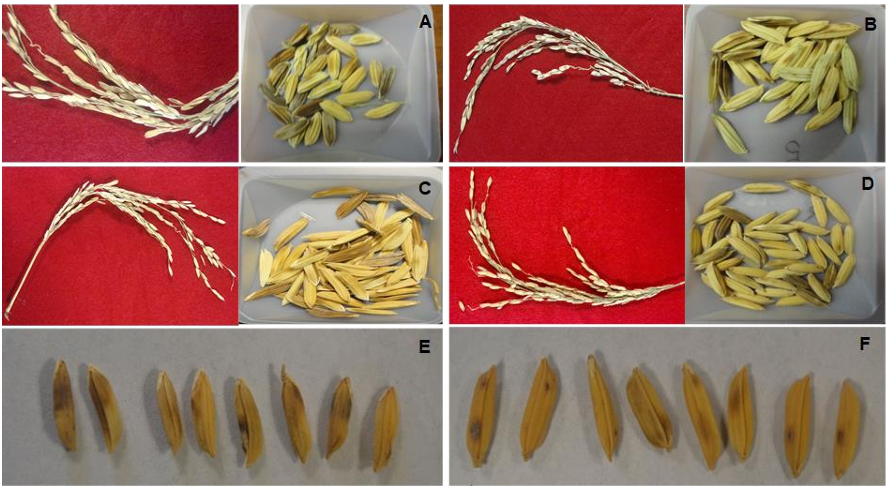
Figura 1. Síntomas de manchado de glumas en panículas y semillas en las variedades de arroz, <strong>A</strong>. MILAGRO FILIPINO,<strong> B</strong>. MORELOS A-98, <strong>C</strong>. PACÍFICO FL-15, <strong>D</strong>. IRGA. Síntomas de manchado de semillas en las variedades de arroz, <strong>E</strong>. MILAGRO FILIPINO, <strong>F</strong>. MORELOS A-98.
Figura 1. Síntomas de manchado de glumas en panículas y semillas en las variedades de arroz, A. MILAGRO FILIPINO, B. MORELOS A-98, C. PACÍFICO FL-15, D. IRGA. Síntomas de manchado de semillas en las variedades de arroz, E. MILAGRO FILIPINO, F. MORELOS A-98.
Figura 2. Características morfológicas de las colonias bacterianas aisladas de semillas de arroz con síntomas de manchado de glumas. Cultivo de las colonias a 28 °C por 72 h en medio de cultivo. <strong>A</strong>. Sacarosa fosfato-glutamato (S-PG), <strong>B</strong>. B de King, <strong>C</strong>. Wilbrinks.
Figura 2. Características morfológicas de las colonias bacterianas aisladas de semillas de arroz con síntomas de manchado de glumas. Cultivo de las colonias a 28 °C por 72 h en medio de cultivo. A. Sacarosa fosfato-glutamato (S-PG), B. B de King, C. Wilbrinks.
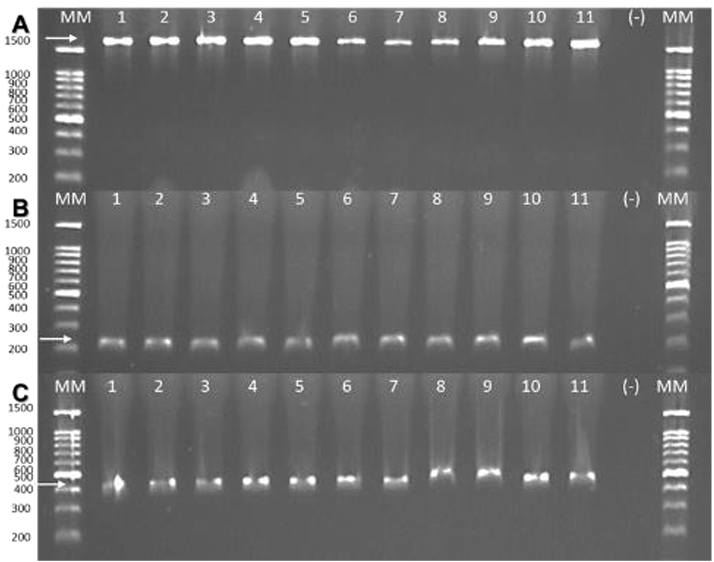
Figura 3. Detección de <em>B. glumae</em> mediante PCR punto final. Amplificación parcial de los genes: <strong>A</strong>. 16S rRNA con los iniciadores 8F-1492R (1500 pb). <strong>B</strong>. Proteína putativa con los iniciadores Bglu3 (174 pb). <strong>C</strong>. Espacio intergénico 16S-23S rRNA con los iniciadores Og (402 pb). Carril 1: INIFLAR-R (CPM01); carriles 2-3: INIFLAR-RT (CPM02 y CPM03, respectivamente); Carril 4: GOLFO FL-16 (CPM04); carriles 5-6: PACÍFICO FL-15 (CPM05 y CPM06, respectivamente); carriles 7-9: Milagro Filipino (CPN01, CPN03 y CPJ02, respectivamente); carril 10: IRGA (CPJ01) y carril 11: Morelos A-98 (CPN02). MM: Marcador molecular 100 pb (GOLDBIO); (-): Control negativo (agua destilada estéril).
Figura 3. Detección de B. glumae mediante PCR punto final. Amplificación parcial de los genes: A. 16S rRNA con los iniciadores 8F-1492R (1500 pb). B. Proteína putativa con los iniciadores Bglu3 (174 pb). C. Espacio intergénico 16S-23S rRNA con los iniciadores Og (402 pb). Carril 1: INIFLAR-R (CPM01); carriles 2-3: INIFLAR-RT (CPM02 y CPM03, respectivamente); Carril 4: GOLFO FL-16 (CPM04); carriles 5-6: PACÍFICO FL-15 (CPM05 y CPM06, respectivamente); carriles 7-9: Milagro Filipino (CPN01, CPN03 y CPJ02, respectivamente); carril 10: IRGA (CPJ01) y carril 11: Morelos A-98 (CPN02). MM: Marcador molecular 100 pb (GOLDBIO); (-): Control negativo (agua destilada estéril).
Figura 4. Análisis filogenético del fragmento de la región 16S rRNA de 11 cepas de <em>B. glumae</em> aisladas en México. Árbol filogenético consenso inferido por el método Máxima verosimilitud. Modelo GTR+G+I y 500 repeticiones de Bootstrap. La secuencia CP098321.1 de <em>Burkholderia gladioli</em> se incluyó como grupo externo. = Cepas de <em>B. glumae</em> aisladas de semillas con síntomas de necrosis en glumas de variedades de arroz cultivadas en México.
Figura 4. Análisis filogenético del fragmento de la región 16S rRNA de 11 cepas de B. glumae aisladas en México. Árbol filogenético consenso inferido por el método Máxima verosimilitud. Modelo GTR+G+I y 500 repeticiones de Bootstrap. La secuencia CP098321.1 de Burkholderia gladioli se incluyó como grupo externo. = Cepas de B. glumae aisladas de semillas con síntomas de necrosis en glumas de variedades de arroz cultivadas en México.
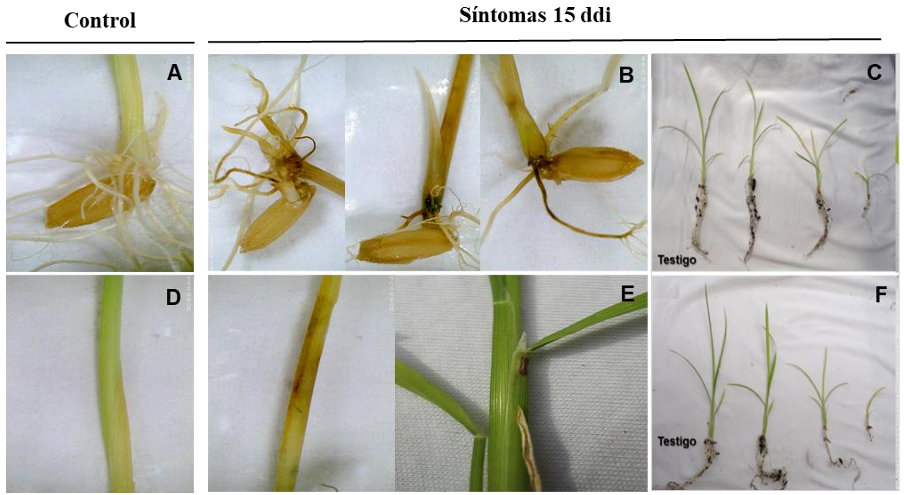
Figura 5. Síntomas inducidos por <em>B. glumae</em> CPM01 a los 15 ddi en semillas y plántulas de arroz. Variedad MILAGRO FILIPINO: <strong>A</strong>. Testigo, inmersión de semilla en agua destilada estéril. <strong>B</strong>. Necrosis y pudrición de semillas, raíces y tallo. <strong>C</strong>. Reducción del crecimiento y desarrollo anormal de raíces. Variedad INIFLAR-R: <strong>D</strong>. Testigo, aspersión de agua destilada estéril en tallo. <strong>E</strong>. Necrosis y pudrición de tallo de plántulas. <strong>F</strong>. Reducción del crecimiento y desarrollo anormal de raíces.
Figura 5. Síntomas inducidos por B. glumae CPM01 a los 15 ddi en semillas y plántulas de arroz. Variedad MILAGRO FILIPINO: A. Testigo, inmersión de semilla en agua destilada estéril. B. Necrosis y pudrición de semillas, raíces y tallo. C. Reducción del crecimiento y desarrollo anormal de raíces. Variedad INIFLAR-R: D. Testigo, aspersión de agua destilada estéril en tallo. E. Necrosis y pudrición de tallo de plántulas. F. Reducción del crecimiento y desarrollo anormal de raíces.
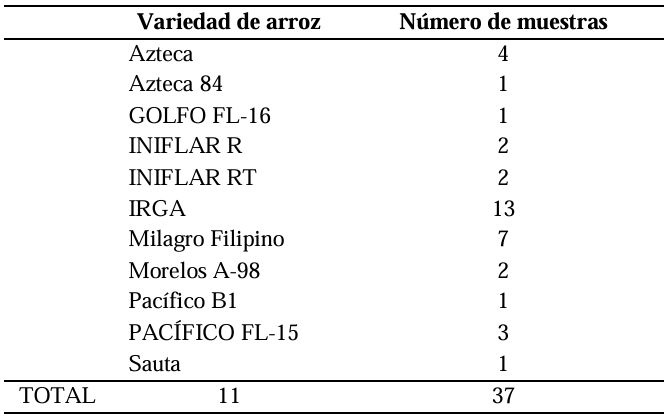
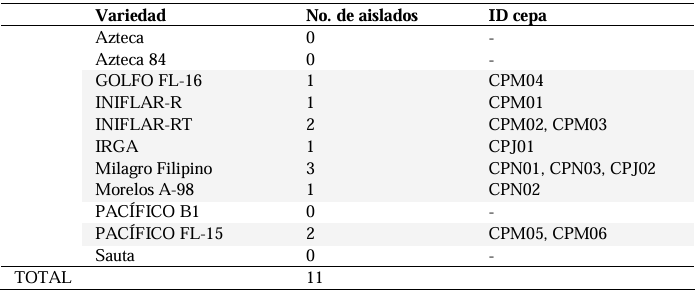
Cuadro 1. Variedades de arroz analizadas para la identificación del agente causal del manchado de glumas en semillas.
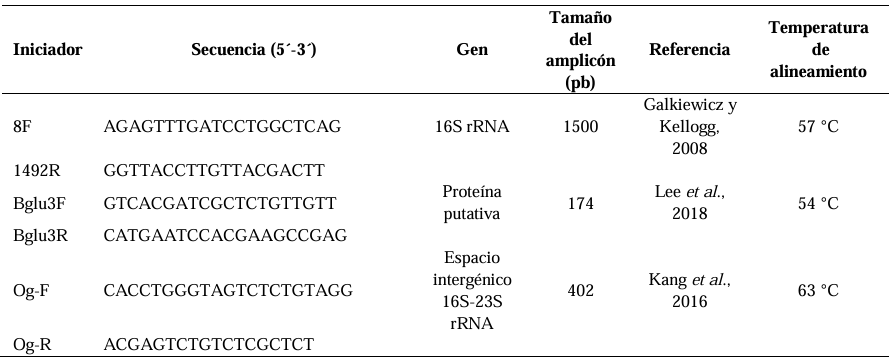
Cuadro 2. Iniciadores utilizados para la identificación de bacterias aisladas de semillas con síntomas de manchado en glumas de variedades de arroz cultivadas en México.
Cuadro 3. Cepas bacterianas con fenotipo de <em>B. glumae</em> aisladas de semillas con síntomas de manchado de glumas en variedades de arroz cultivadas en México.
Cuadro 3. Cepas bacterianas con fenotipo de B. glumae aisladas de semillas con síntomas de manchado de glumas en variedades de arroz cultivadas en México.
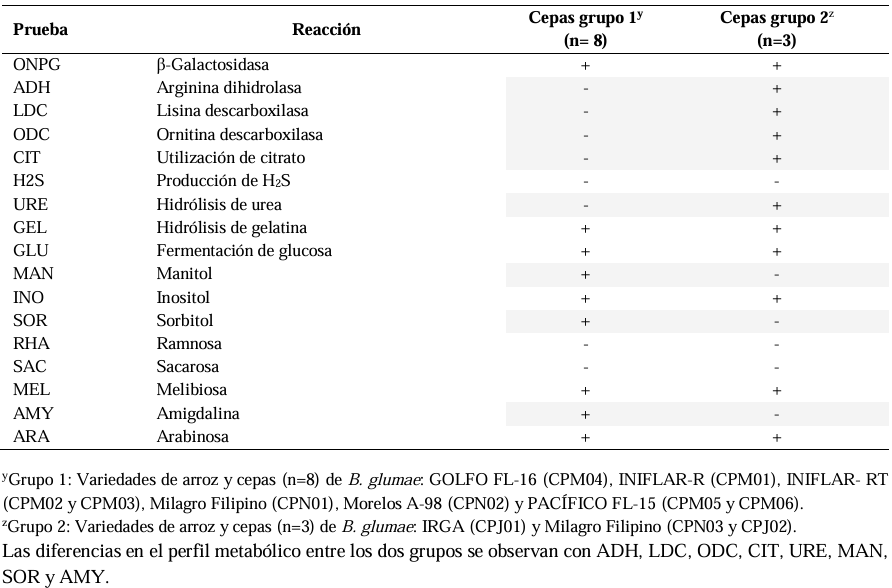
Cuadro 4. Caracterización fisiológica y bioquímica mediante API 20E de 11 cepas con fenotipo de <em>B. glumae</em> aisladas de semilla de arroz con síntomas de necrosis en glumas.
Cuadro 4. Caracterización fisiológica y bioquímica mediante API 20E de 11 cepas con fenotipo de B. glumae aisladas de semilla de arroz con síntomas de necrosis en glumas.
Cuadro 5. Identificación molecular de 11 cepas aisladas de semillas de variedades de arroz cultivadas en México con síntomas de manchado de glumas.

Página 7 de 16