
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
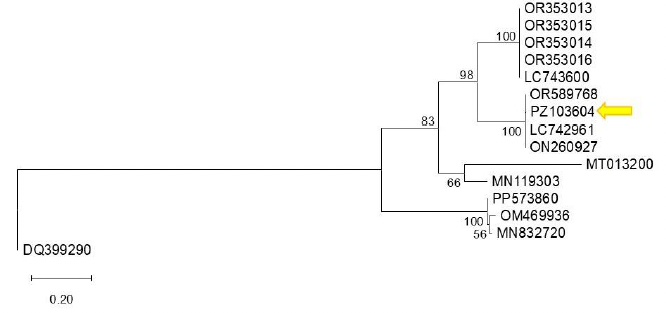
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Estudio comparativo in vitro e in vivo de la antracnosis en papaya (Carica papaya) causada por Colletotrichum gloeosporioides y Colletotrichum truncatum

PorYuridia Rodríguez González, Ernesto Castañeda Hidalgo*, Celerino Robles, Gisela Margarita Santiago Martínez, Verónica Martínez Gallegos, Salvador Lozano Trejo

Recibido: 23/septiembre/2025 – Publicado: 16/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2509-3

Resumen Antecedentes/Objetivo. Mundialmente, México es el principal exportador de papaya fresca, donde Oaxaca es el mayor productor nacional. Sin embargo, la antracnosis, enfermedad causada por especies del complejo Colletotrichum spp., puede llegar a afectar hasta el 40 % de la producción. El objetivo de la investigación fue identificar al agente causal de la antracnosis en localidades productoras de Oaxaca y evaluar la eficacia de diferentes productos (químicos y biológicos) en la reducción de la severidad de esta enfermedad bajo condiciones in vitro e in vivo.

Desarrollo experimental. Se realizó un muestreo de frutos con lesiones de antracnosis en 12 sitios de los municipios de Villa de Tututepec de Melchor Ocampo y Santa María Huazolotitlán, costa de Oaxaca. Los aislamientos se identificaron mediante análisis morfológicos y microcultivos. Tres fungicidas químicos (procloraz, benomilo y azoxystrobin) y tres biológicos (Bacillus subtilis, Trichoderma sp. y Bacillus cereus) fueron evaluados in vitro e in vivo, con un diseño completamente al azar, con comparación de medias Duncan (p ≤ 0.005).

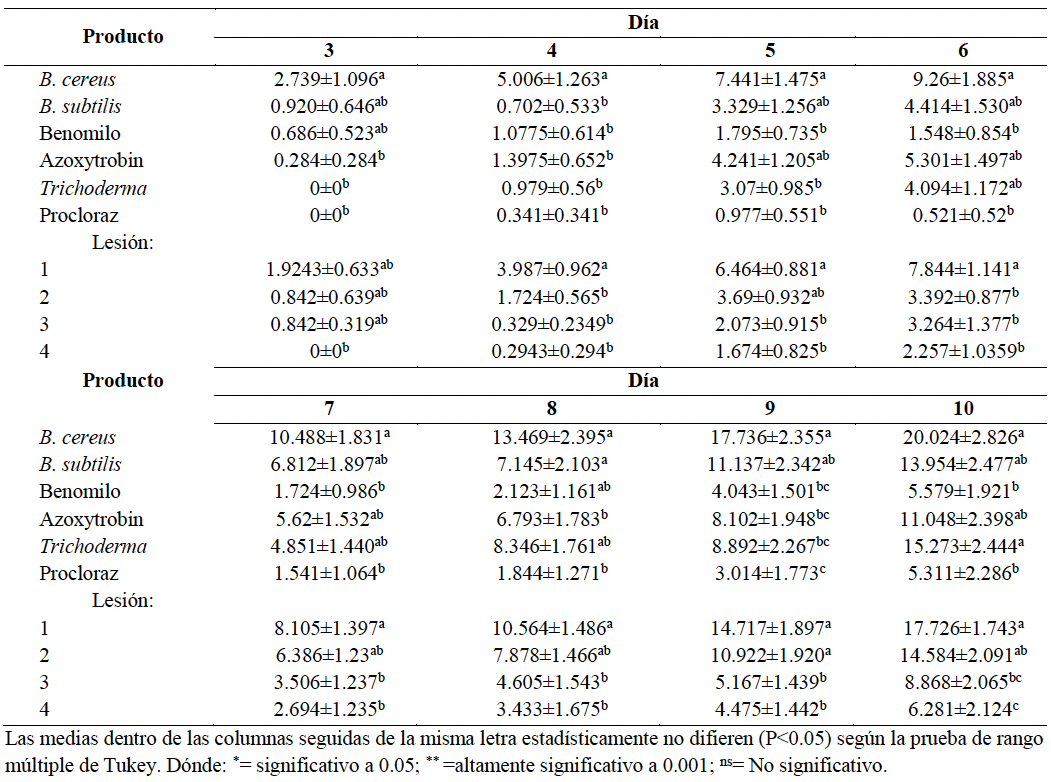
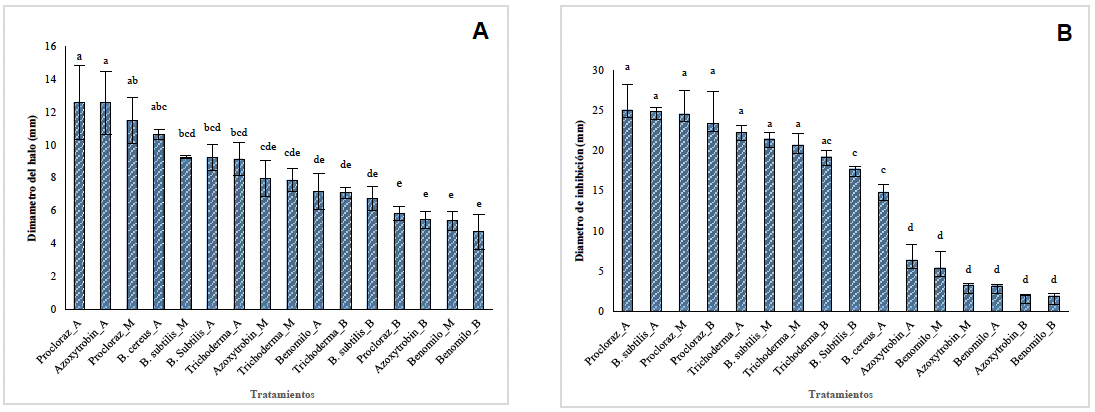
Resultados. Se identificaron Colletotrichum gloeosporioides y C. truncatum asociados a la antracnosis. En las pruebas in vitro, procloraz fue el tratamiento más eficaz, con valores de inhibición de 86.42 % frente a C. truncatum y 48.66 % frente a C. gloeosporioides, alcanzando una efectividad general del 75 %. Asimismo, B. subtilis y Trichoderma sp. mostraron una alta eficacia in vitro (≥ 70 %), evidenciando un potencial de control biológico en condiciones de laboratorio.

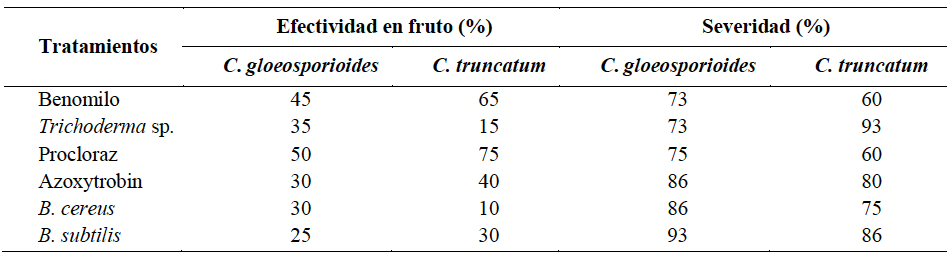
Conclusiones. Se confirmaron a C. gloeosporioides (en el 66.7 % de los sitios muestreados) y a C. truncatum (en el 33.3 % de los sitios muestreadas) como causantes de la antracnosis en papaya en la región Costa de Oaxaca. En las pruebas in vivo, procloraz fue el tratamiento más efectivo con 75% de efectividad contra C. truncatum y 50 % contra C. gloeosporioides, Benomilo mostró una efectividad intermedia, con 65 % en C. truncatum y 45 % en C. gloeosporioides, con severidades de 60-73 %. Los tratamientos biológicos mostraron baja efectividad: Trichoderma sp. (35 % y 15 %) y B. subtilis (25 % y 30 %) para C. gloeosporioides y C. truncatum, respectivamente, con severidades elevadas entre 73 y 93 %. B. cereus y azoxystrobin presentaron un comportamiento intermedio, con 30-40 % de efectividad y severidades de 75-86 %. En conjunto, los resultados indican que los fungicidas sistémicos superaron en más del 30-40 % de efectividad a los agentes biológicos, los cuales mostraron controles inferiores al 35 % y severidades mayores al 80 %, confirmando su limitado desempeño en poscosecha.

Mostrar Figuras y/o Cuadros
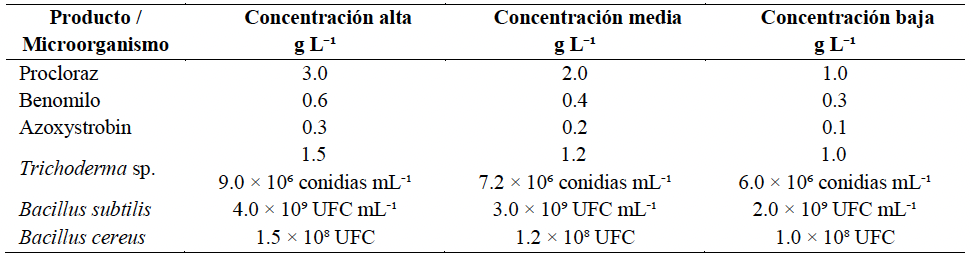
Cuadro 1. Concentraciones evaluadas de fungicidas químicos y agentes biológicos utilizados contra <em>Colletotrichum gloeosporioides</em> y <em>C. truncatum</em> en frutos de papaya.
Cuadro 1. Concentraciones evaluadas de fungicidas químicos y agentes biológicos utilizados contra Colletotrichum gloeosporioides y C. truncatum en frutos de papaya.
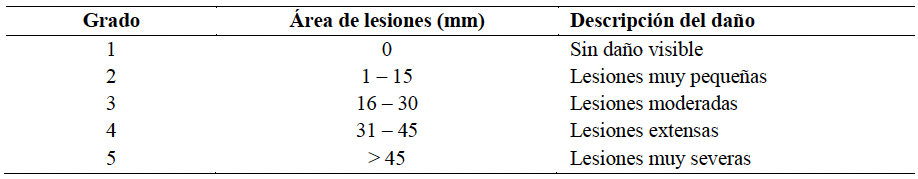
Cuadro 2. Escala visual y cuantitativa para la clasificación del daño por antracnosis en frutos de papaya según área de lesión.
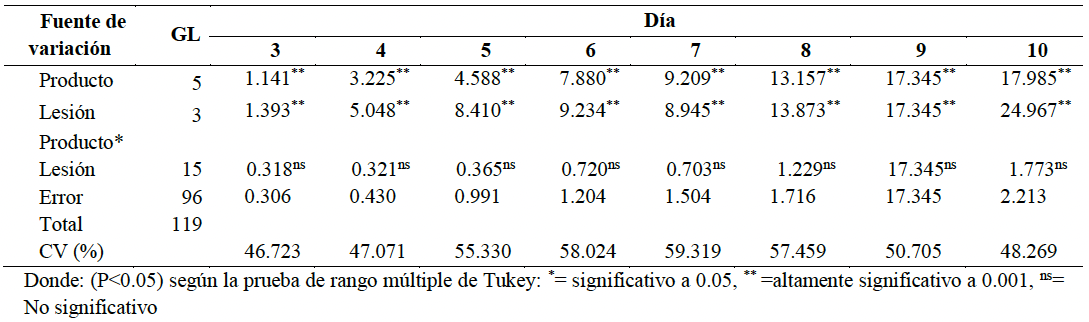
Cuadro 3. Análisis de varianza del efecto de diferentes productos sobre las lesiones en frutos de papaya var. Maradol causada por <em>C. truncatum</em> 10 días después de la inoculación.
Cuadro 3. Análisis de varianza del efecto de diferentes productos sobre las lesiones en frutos de papaya var. Maradol causada por C. truncatum 10 días después de la inoculación.
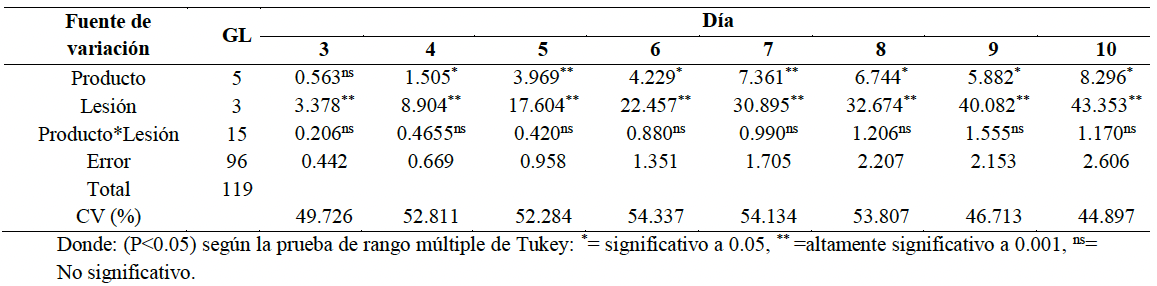
Cuadro 4. Análisis de varianza del efecto de diferentes productos químicos y biológicos sobre las lesiones en frutos de papaya var. Maradol causada por <em>C. gloeosporioides</em>, a 10 días después de la inoculación.
Cuadro 4. Análisis de varianza del efecto de diferentes productos químicos y biológicos sobre las lesiones en frutos de papaya var. Maradol causada por C. gloeosporioides, a 10 días después de la inoculación.
Cuadro 5. Efecto de diferentes productos químicos y biológicos sobre las lesiones en frutos de papaya var. Maradol causada por <em>C. truncatum</em> a 10 días después de la inoculación.
Cuadro 5. Efecto de diferentes productos químicos y biológicos sobre las lesiones en frutos de papaya var. Maradol causada por C. truncatum a 10 días después de la inoculación.
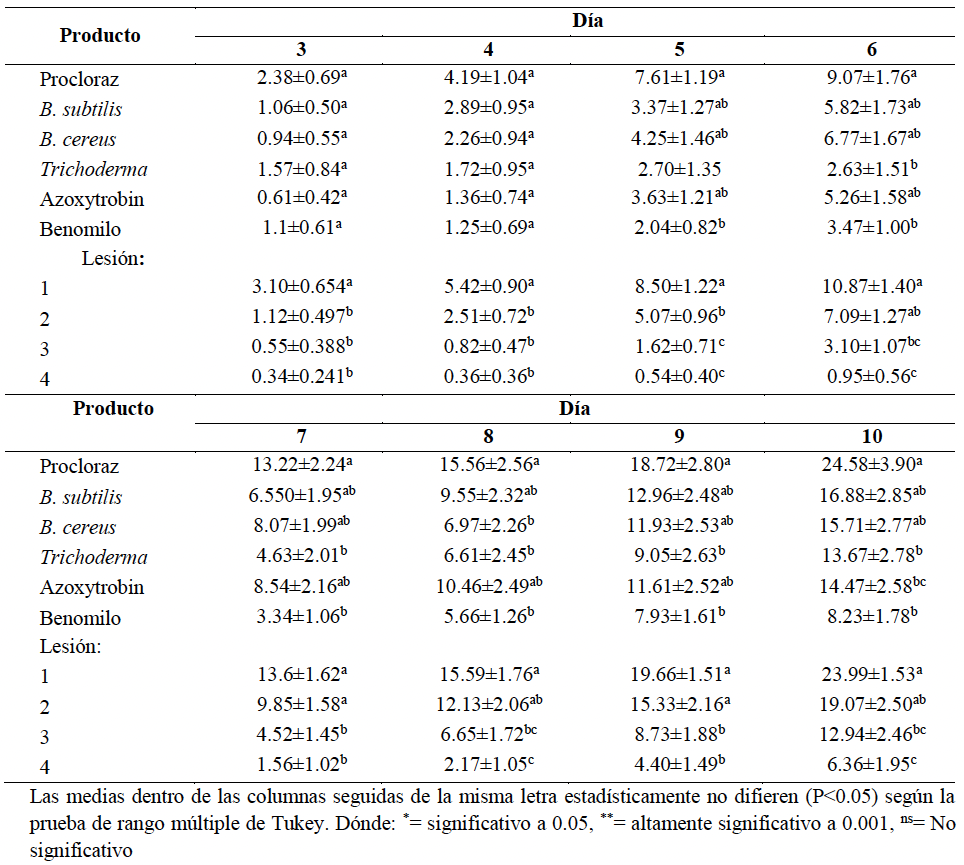
Cuadro 6. Efecto de diferentes productos sobre las lesiones en frutos de papaya var. Maradol causada por <em>C. gloeosporioides</em> a 10 días después de la inoculación.
Cuadro 6. Efecto de diferentes productos sobre las lesiones en frutos de papaya var. Maradol causada por C. gloeosporioides a 10 días después de la inoculación.
Cuadro 7. Efectividad y severidad en frutos de papaya var. Maradol de seis fungicidas después de siete días de inoculación con las especies de <em>C. truncatum</em> y <em>C. gloeosporioides</em>.
Cuadro 7. Efectividad y severidad en frutos de papaya var. Maradol de seis fungicidas después de siete días de inoculación con las especies de C. truncatum y C. gloeosporioides.
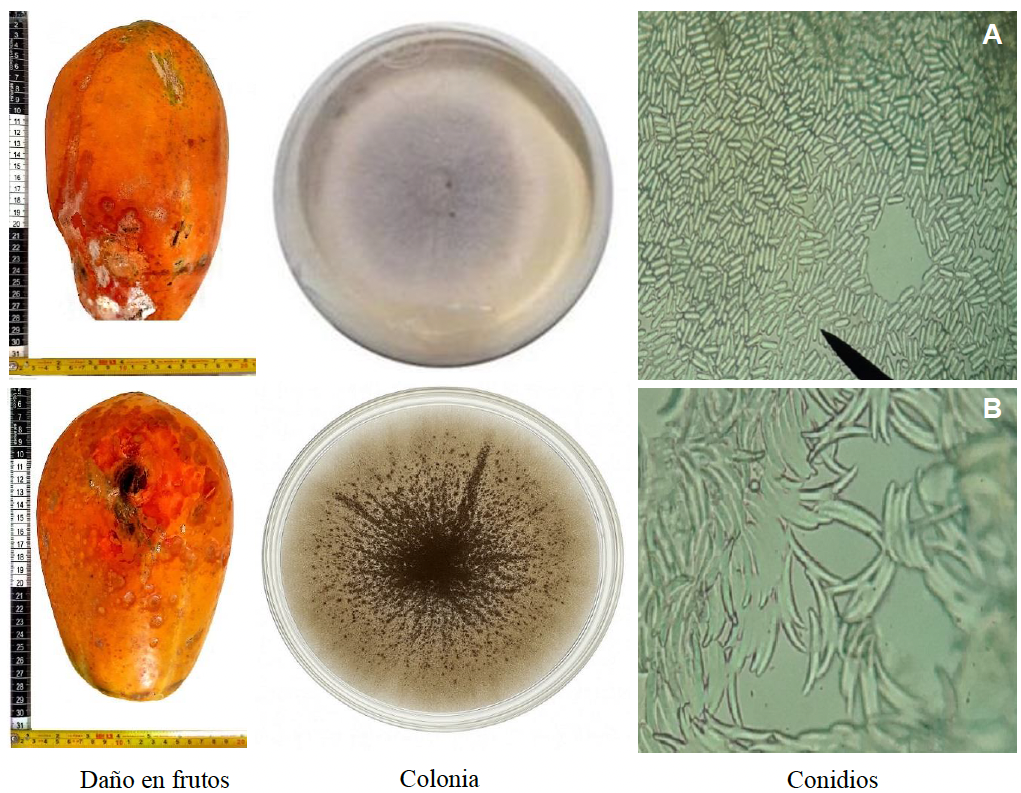
Figura 1. Características morfológicas de <em>Colletetrichum gloeosporioides</em> (1A) y <em>C. truncatum</em> (1B) aisladas de frutos de papaya.
Figura 1. Características morfológicas de Colletetrichum gloeosporioides (1A) y C. truncatum (1B) aisladas de frutos de papaya.
Figura 2. Diámetro de inhibición del crecimiento de siete días de <em>C. gloeosporioides</em> (A) y <em>C. truncatum</em> (B) con tres dosis y seis fungicidas por la técnica de difusión en disco. Dosis evaluadas: procloraz, A= Alta 3 g L<sup>-1</sup>; M= Media 2 g L<sup>-1</sup>; B= Baja 1 g L<sup>-1</sup>; benomilo, A= Alta 0.6 g L<sup>-1</sup>; M= Media 0.4 g L<sup>-1</sup>; B= Baja 0.3 g L<sup>-1</sup>; azoxytrobin, A= Alta 0.3 g L<sup>-1</sup>; M= Media 0.2 g L<sup>-1</sup>; B= Baja 0.1 g L<sup>-1</sup>; B. subtilis, A= Alta 4 g L<sup>-1</sup>; M= Media 3 g L<sup>-1</sup>; B= Baja 2 g L<sup>-1</sup>; <em>Trichoderma</em> spp., A= Alta 1.5 g L<sup>-1</sup>; M= Media 1.2 g L<sup>-1</sup>; B= Baja 1 g L<sup>-1</sup>; <em>B. cereus</em> 1.5 x 10⁸ UFC mL<sup>-1</sup>. Las medias con letras iguales en la especie son estadísticamente iguales (Duncan, 0.05).
Figura 2. Diámetro de inhibición del crecimiento de siete días de C. gloeosporioides (A) y C. truncatum (B) con tres dosis y seis fungicidas por la técnica de difusión en disco. Dosis evaluadas: procloraz, A= Alta 3 g L-1; M= Media 2 g L-1; B= Baja 1 g L-1; benomilo, A= Alta 0.6 g L-1; M= Media 0.4 g L-1; B= Baja 0.3 g L-1; azoxytrobin, A= Alta 0.3 g L-1; M= Media 0.2 g L-1; B= Baja 0.1 g L-1; B. subtilis, A= Alta 4 g L-1; M= Media 3 g L-1; B= Baja 2 g L-1; Trichoderma spp., A= Alta 1.5 g L-1; M= Media 1.2 g L-1; B= Baja 1 g L-1; B. cereus 1.5 x 10⁸ UFC mL-1. Las medias con letras iguales en la especie son estadísticamente iguales (Duncan, 0.05).
  • Vol. 2026, 44(1)
  • Artículo Científico

Etiología de la pudrición del tronco del coco Enano Verde del Brasil y eficacia in vitro de fungicidas en Tabasco, México

PorNitzarindany Acencio Castillo, Magdiel Torres-de la Cruz*, Carlos F Ortiz García, Cristian Nava Díaz, Ángel F Huamán Pilco, Manuel Pérez-de la Cruz, Lenin Arias Rodríguez, Ramón A Castillo González

Recibido: 16/diciembre/2024 – Publicado: 11/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2412-1

Resumen Antecedentes/Objetivo. El cocotero (Cocos nucifera) es un cultivo importante en México. En Tabasco, la variedad “Enano Verde del Brasil” (CEVB) se ha introducido para la producción de fruto verde para agua; sin embargo, han presentado patologías de etiologías desconocidas. El objetivo fue identificar los hongos asociados a la pudrición del tronco del coco CEVB, en Tabasco, México, y realizar una evaluación comparativa in vitro de la eficacia de fungicidas sistémicos y de contacto.

Materiales y Métodos. A partir de muestras de tronco, cogollo e inflorescencia con necrosis, se realizó el aislamiento de hongos en medio PDA. Los aislamientos fueron caracterizados inicialmente mediante análisis morfológico. Dos de ellos fueron seleccionados para pruebas de patogenicidad sobre plántulas de CEVB e identificados molecularmente mediante el análisis de secuencias parciales del gen ITS (ITS1-5.8S-ITS2 del DNAr nuclear). Además, se realizaron bioensayos in vitro para comparar la eficacia de 10 fungicidas sistémicos y de contacto. Cada fungicida se evaluó a tres concentraciones (alta, recomendada y baja), estimándose su efecto sobre la germinación de esporas (GE) y del crecimiento micelial (CM).

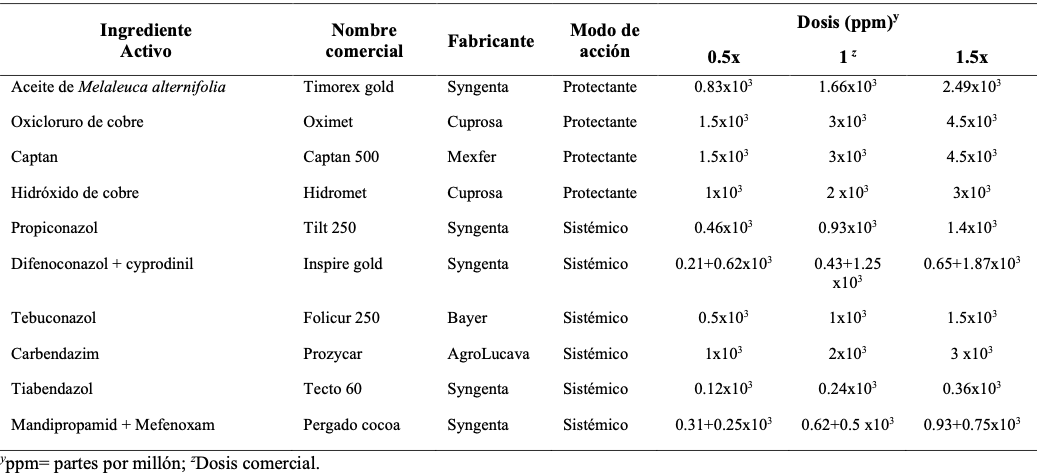
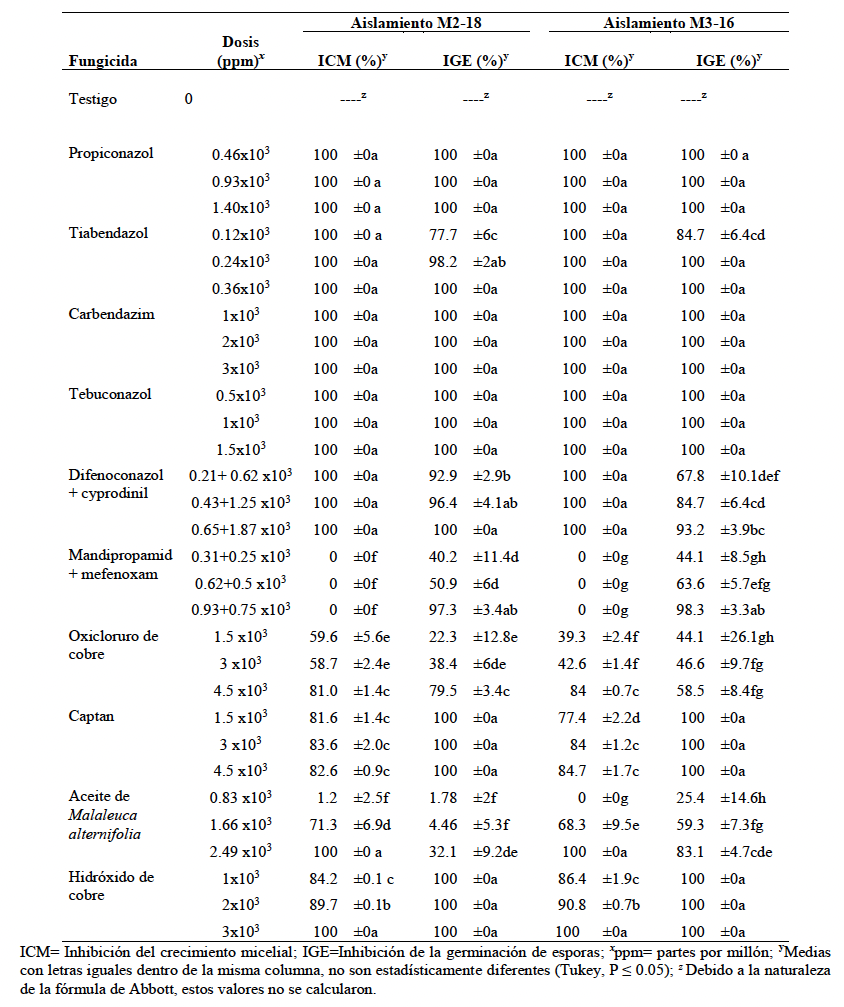
Resultados. Los aislamientos fueron identificados como Thielaviopsis paradoxa. Los ensayos de patogenicidad confirmaron a T. paradoxa como agente causal de necrosis en plántulas. Los fungicidas sistémicos propiconazol, carbendazim y tebuconazol, mostraron inhibición completa del CM y de la GE a partir de la dosis más baja evaluada (0.45x10³ 1x10³ y 0.5x10³ ppm, respectivamente). Los fungicidas protectantes hidróxido de cobre y captan inhibieron completamente la GE a la dosis más baja (1x10³ y 1.5x10³ ppm, respectivamente), aunque sólo alcanzaron un 80 % de inhibición del CM.

Conclusión. Se reporta por primera vez a T. paradoxa sobre el CEVB en México. Este estudio amplía el conocimiento sobre los hongos que afectan al CEVB en Tabasco y proporciona una base para la selección de fungicidas promisorios, cuya eficacia deberá validarse en estudios posteriores bajo condiciones de campo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Fungicidas y dosis evaluadas <em>in vitro</em> sobre <em>Thielaviopsis paradoxa</em>.
Cuadro 1. Fungicidas y dosis evaluadas in vitro sobre Thielaviopsis paradoxa.
Cuadro 2. Efectividad de fungicidas sistémicos y de contacto sobre el crecimiento micelial y germinación de conidios de dos cepas (M2-18 y M3-16) de <em>Thielaviopsis paradoxa</em> aislados de <em>Cocos nucifera</em>, “Enano Verde del Brasil”, en la costa de Tabasco, México.
Cuadro 2. Efectividad de fungicidas sistémicos y de contacto sobre el crecimiento micelial y germinación de conidios de dos cepas (M2-18 y M3-16) de Thielaviopsis paradoxa aislados de Cocos nucifera, “Enano Verde del Brasil”, en la costa de Tabasco, México.
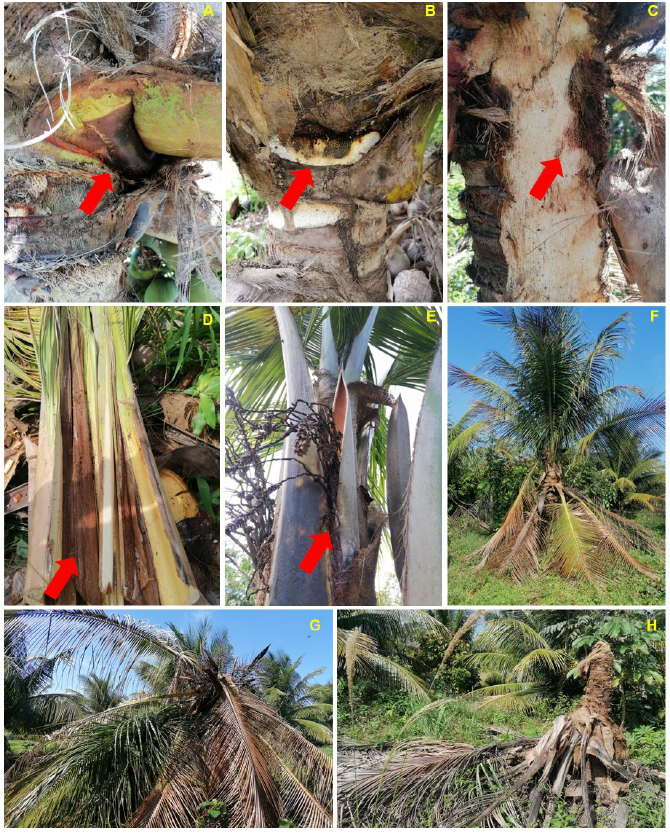
Figura 1. Síntomas asociados a la pudrición del tronco de <em>Cocos nucifera</em> “Enano Verde del Brasil”, en la costa de Tabasco, México. <strong>A</strong>) Necrosis en la vaina de las hojas basales, en la zona de inserción al tronco; <strong>B</strong>) Necrosis en el punto de inserción foliar en el estípite; <strong>C</strong>) Progresión de la necrosis hacia el interior del tronco; <strong>D</strong>) Necrosis de la hoja flecha; <strong>E</strong>) Necrosis en espatas e inflorescencias; <strong>F</strong>) Hojas marchitas y “falda de hojas” adheridas al tronco; <strong>G</strong>) Colapso de la corona, con hojas terminales aún verdes; <strong>H</strong>) Pudrición descendente del tronco.
Figura 1. Síntomas asociados a la pudrición del tronco de Cocos nucifera “Enano Verde del Brasil”, en la costa de Tabasco, México. A) Necrosis en la vaina de las hojas basales, en la zona de inserción al tronco; B) Necrosis en el punto de inserción foliar en el estípite; C) Progresión de la necrosis hacia el interior del tronco; D) Necrosis de la hoja flecha; E) Necrosis en espatas e inflorescencias; F) Hojas marchitas y “falda de hojas” adheridas al tronco; G) Colapso de la corona, con hojas terminales aún verdes; H) Pudrición descendente del tronco.
Figura 2. Características morfológicas de <em>Thielaviopsis paradoxa</em>. <strong>A</strong>) Colonia de 15 días de crecimiento en medio PDA; <strong>B</strong>) Conidióforos; <strong>C</strong>) Fialoconidios primarios en cadena; <strong>D</strong>, <strong>E</strong>) Fialoconidios primarios y secundarios en cadena; <strong>F</strong>, <strong>G</strong>) Aleuroconidios. Barras de escala: <strong>B</strong>= 20 μm, <strong>C,</strong> <strong>D</strong>, <strong>E</strong>, <strong>F</strong>, <strong>G</strong> = 10 μm.
Figura 2. Características morfológicas de Thielaviopsis paradoxa. A) Colonia de 15 días de crecimiento en medio PDA; B) Conidióforos; C) Fialoconidios primarios en cadena; D, E) Fialoconidios primarios y secundarios en cadena; F, G) Aleuroconidios. Barras de escala: B= 20 μm, C, D, E, F, G = 10 μm.
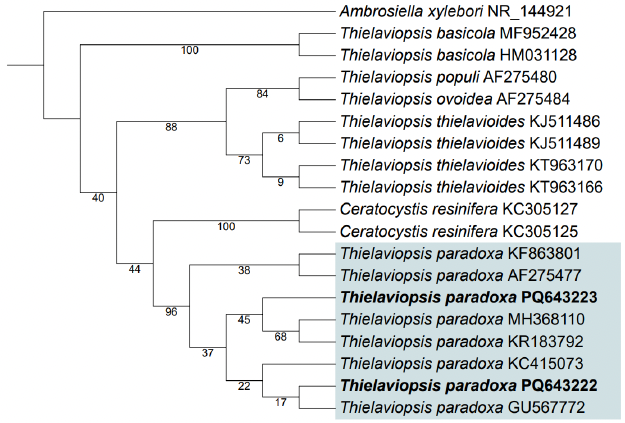
Figura 3. Árbol filogenético de máxima verosimilitud construido con un conjunto de datos de secuencias parciales del espaciador interno transcrito 1 y 2 que intervienen en la subunidad 5.8S rDNA para los aislamientos M2-18 (número de acceso Genbank: PQ643222) y M3-16 (número de acceso Genbank: PQ643223) de T<em>hielaviopsis paradoxa</em>, obtenidos de muestras de tronco y cogollo de <em>Cocos nucifera</em> “Enano Verde del Brasil”, con pudrición de tronco, en la costa de Tabasco, México. Los datos de otras cepas y especies de <em>Thielaviopsis</em> (<em>Ceratocystis</em>) se obtuvieron del GenBank.
Figura 3. Árbol filogenético de máxima verosimilitud construido con un conjunto de datos de secuencias parciales del espaciador interno transcrito 1 y 2 que intervienen en la subunidad 5.8S rDNA para los aislamientos M2-18 (número de acceso Genbank: PQ643222) y M3-16 (número de acceso Genbank: PQ643223) de Thielaviopsis paradoxa, obtenidos de muestras de tronco y cogollo de Cocos nucifera “Enano Verde del Brasil”, con pudrición de tronco, en la costa de Tabasco, México. Los datos de otras cepas y especies de Thielaviopsis (Ceratocystis) se obtuvieron del GenBank.
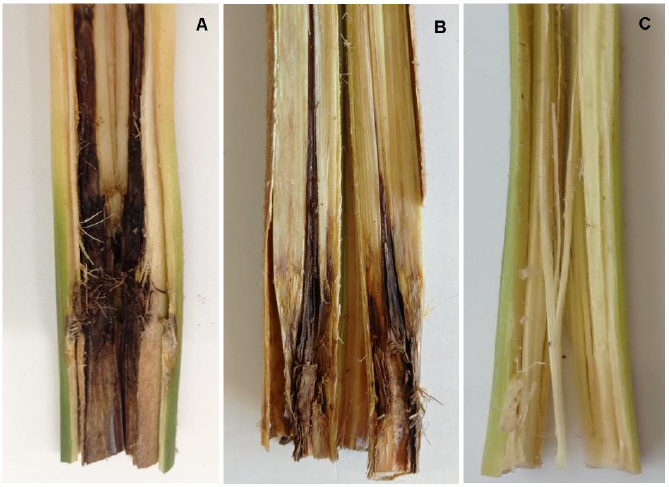
Figura 4. Pruebas de patogenicidad en plántulas de coco “Enano Verde del Brasil”. <strong>A</strong>, <strong>B</strong>. Necrosis causada por <em>Thielaviopsis paradoxa</em>, cepas M2-18 y M3-16 respectivamente. <strong>C</strong>. Testigo.
Figura 4. Pruebas de patogenicidad en plántulas de coco “Enano Verde del Brasil”. A, B. Necrosis causada por Thielaviopsis paradoxa, cepas M2-18 y M3-16 respectivamente. C. Testigo.
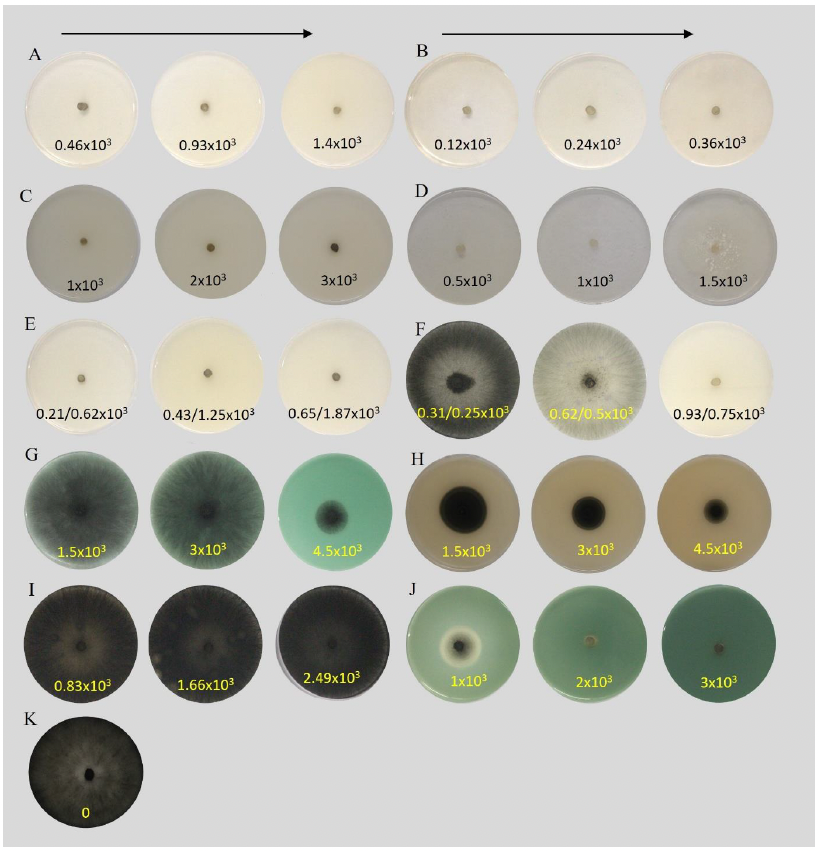
Figura 5. Efecto <em>in vitro</em> de fungicidas sistémicos y de contacto sobre <em>Thielaviopsis paradoxa</em>. <strong>A</strong>) Medio con propiconazol; <strong>B</strong>) Medio con tiabendazol; <strong>C</strong>) Medio con carbendazim; D) Medio con tebuconazol; <strong>E</strong>) Medio con difenoconazol + cyprodinil; <strong>F</strong>) Medio con mandipropamid + mefenoxam; <strong>G</strong>) Medio con oxicloruro de cobre; <strong>H</strong>) Medio con captan; <strong>I</strong>) Medio con aceite de <em>Melaleuca alternifolia</em>; <strong>J</strong>) Hidróxido de cobre; <strong>K</strong>) Testigo. Números dentro de cada imagen indican la dosis en partes por millón (ppm). Todas las dosis se expresan en unidades de ×10<sup>3</sup>.
Figura 5. Efecto in vitro de fungicidas sistémicos y de contacto sobre Thielaviopsis paradoxa. A) Medio con propiconazol; B) Medio con tiabendazol; C) Medio con carbendazim; D) Medio con tebuconazol; E) Medio con difenoconazol + cyprodinil; F) Medio con mandipropamid + mefenoxam; G) Medio con oxicloruro de cobre; H) Medio con captan; I) Medio con aceite de Melaleuca alternifolia; J) Hidróxido de cobre; K) Testigo. Números dentro de cada imagen indican la dosis en partes por millón (ppm). Todas las dosis se expresan en unidades de ×103.
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Detección de Begomovirus capsicummusive (PepGMV) y daños en chile habanero (Capsicum chinense) en Tabasco

PorMiguel Arturo Buitron Broca, Carlos Fredy Ortíz García*, Pedro Antonio Moscoso Ramírez, Eder Ramos Hernández, José Hipólito Rodolfo Mendoza Hernández

Recibido: 18/junio/2025 – Publicado: 01/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2506-1

Resumen Antecedentes/Objetivo. El estudio tuvo como objetivo detectar agentes virales en cuatro cultivares de Capsicum chinense en Tabasco, México; describir la incidencia en cinco etapas de desarrollo, y cuantificar el rendimiento de chile habanero.

Desarrollo experimental. Se estableció un bioensayo en campo con los cultivares de chile habanero: Palenque F1, Jaguar, Orange y PX-11459057, bajo un diseño completamente al azar. Se realizaron pruebas con ImmunoStrips® (Agdia Inc.) para detectar los virus Orthotospovirus tomatomaculae (virus de la marchitez manchada del tomate -TSWV), Cucumber mosaic virus (virus del mosaico del pepino-CMV), Alfalfa mosaic virus (virus del mosaico de la alfalfa-AMV) y Orthotospovirus iridimaculaflavi (virus de la mancha del iris-IYSV). También se realizó PCR para detectar Begomovirus. Se determinó la incidencia viral en cinco fechas durante el ciclo fenológico del cultivo, se evaluaron la producción de frutos (kg planta-1 y t ha-1), y su calidad. Se aplicó ANOVA con prueba de Tukey (p ≤ 0.05).

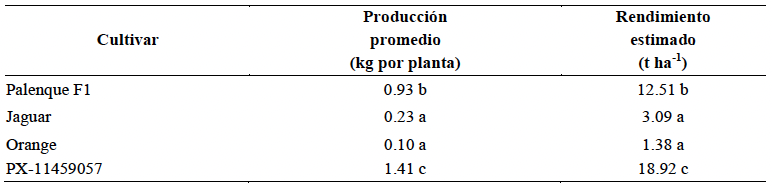
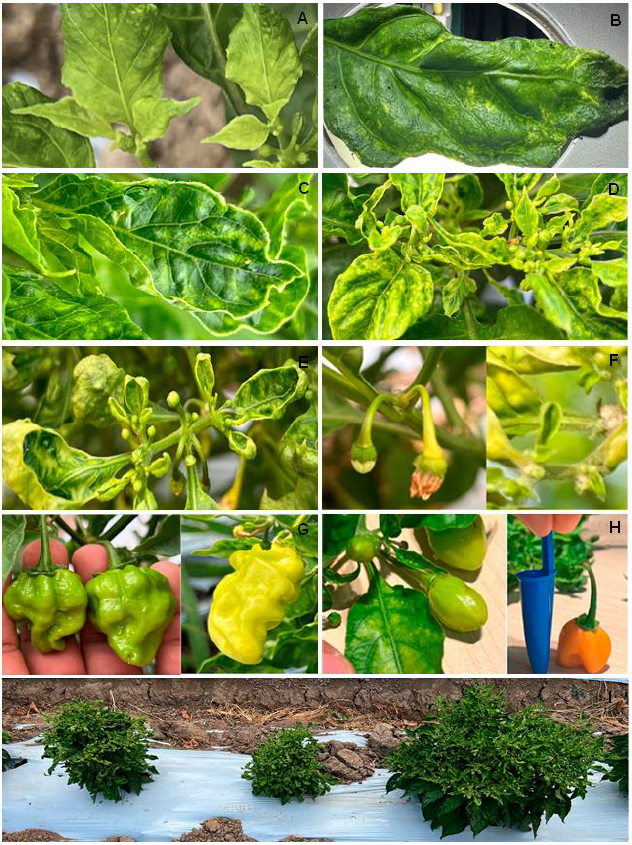
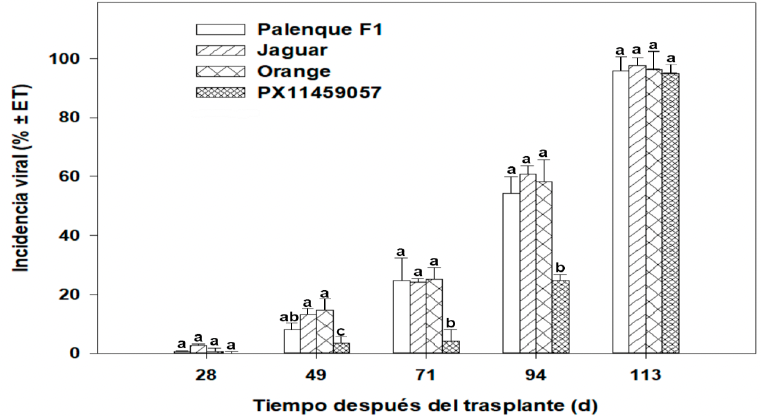
Resultados. Las pruebas ImmunoStrips® fueron negativas para los cuatro virus analizados. Begomovirus capsicummusive (virus del Mosaico dorado del Chile-PepGMV) fue positivo por PCR en los cultivares Palenque F1, Jaguar y PX-11459057, con similitud genética superior al 98 %. Los síntomas virales incluyeron clorosis intervenal, mosaico, deformaciones foliares y enanismo. La incidencia superó el 95 % de plantas enfermas a los 113 ddt. La producción de frutos fue directamente afectada en cantidad y calidad.

Conclusión. Se confirmó la presencia de Begomovirus capsicummusive (PepGMV) en chile habanero en Tabasco, asociado a clorosis intervenal, deformaciones foliares y enanismo, con una incidencia mayor a 95 % a los 113 ddt. Se tuvo una producción entre 0.1 hasta 1.41kg ha-1.

Mostrar Figuras y/o Cuadros
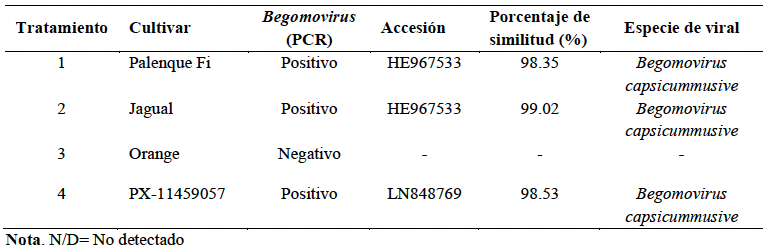
Cuadro 1. Porcentaje de similitud de secuencias obtenidas por PCR de virus asociados a plantas de chile habanero.
Cuadro 2. Producción promedio de frutos de chile habanero por planta y rendimiento potencial por hectárea.
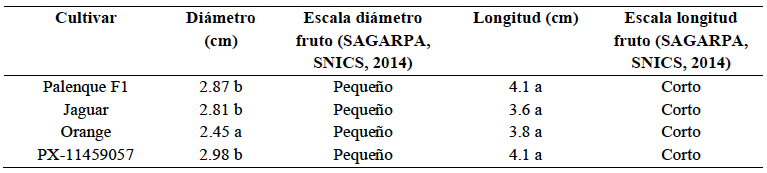
Cuadro 3. Diámetro y longitud promedio de frutos de chile habanero cosechados en plantas asociadas con <em>Begomovirus capsicummusive</em>.
Cuadro 3. Diámetro y longitud promedio de frutos de chile habanero cosechados en plantas asociadas con Begomovirus capsicummusive.
Figura 1. Plantas de chile habanero con diferentes síntomas de virosis. A ) Clorosis intervenal; B) mosaicos; C ) enrollamiento de hojas; D) enchinamiento de hojas apicales; E) disminución tamaño hojas nuevas; F) aborto de flores; G) deformación y decoloración de frutos; H) reducción de tamaño de frutos; I) Síntomas de virosis desarrollados a diferentes edades de plantas.
Figura 2. Incidencia de síntomas virales en plantas de chile habanero en diferentes fechas del desarrollo del cultivo. Nota. ET=Error típico, d= días.
  • Vol. 2026, 44(1)
  • Artículo de Revisión

Manejo postcosecha de fitopatógenos micotoxigénicos en maíz: Métodos convencionales y alternativas naturales

PorEstefanía Martínez Batista, Surelys Ramos Bell, Edson Rayón Díaz, Gerónimo Díaz Cayetano, Cyndia González Arias, Juan Antonio Herrera González, Javier Ireta Moreno, Porfirio Gutiérrez Martínez*

Recibido: 17/marzo/2025 – Publicado: 27/noviembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2503-2

Resumen Justificación. Las semillas son el insumo básico para la agricultura y elaboración de alimentos. Recientemente se ha observado un incremento en la demanda de producción en grano de maíz; sin embargo, las cifras de pérdidas anuales en la etapa postcosecha rondan entre el 10 al 40 %. El objetivo de esta revisión es dar a conocer los principales (géneros/especies) hongos productores de micotoxinas asociados al grano de maíz durante el almacenamiento, así como analizar los métodos de control convencionales y las alternativas naturales que han sido aplicadas hasta la actualidad.

Marco teórico y experimental. Se recopiló información bibliográfica sobre los principales patógenos fúngicos que se desarrollan en el grano de maíz y los métodos de control más empleados. Los principales géneros de hongos que se detectan en grano de maíz son Aspergillus, Penicillium y Fusarium, importantes hongos micotoxigénicos. Se han utilizado métodos de control tradicionales, físicos y químicos; no obstante, su aplicación suele no garantizar su efectividad y bioseguridad. El uso de alternativas naturales, así como su combinación, han demostrado tener efectos positivos en el control de estos fitopatógenos, además de inhibir la producción de micotoxinas.

Conclusiones y Perspectivas. Una de las principales causas en pérdidas y daño a la calidad del grano de maíz es el desarrollo de hongos productores de micotoxinas y con ello, la generación de metabolitos secundarios altamente tóxicos. Para prevenir el deterioro del grano almacenado, se han empleado prácticas tradicionales como limpieza del grano, aireación con temperaturas bajas, así como el uso de tratamientos físicos y químicos (fungicidas de síntesis). Actualmente, el desarrollo de alternativas eco amigables es uno de los principales objetivos para reducir el uso de agroquímicos en las semillas y granos, con el fin de promover sistemas agrícolas más sostenibles.

Mostrar Figuras y/o Cuadros
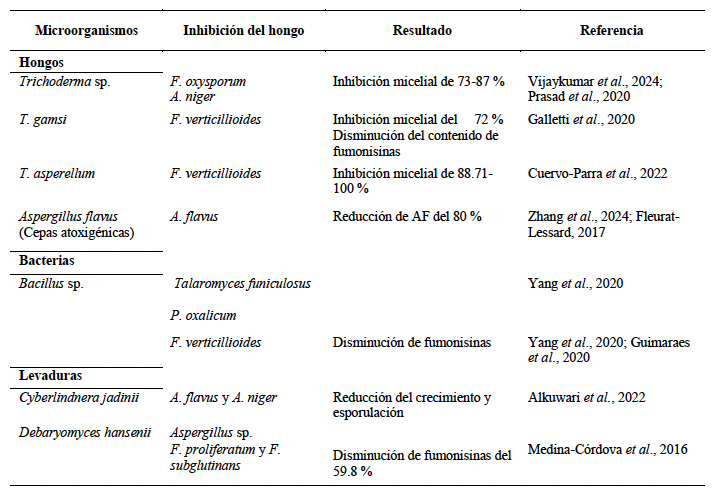
Cuadro 1. Microorganismos utilizados para inhibir el crecimiento de fitopatógenos transmitidos en grano de maíz.
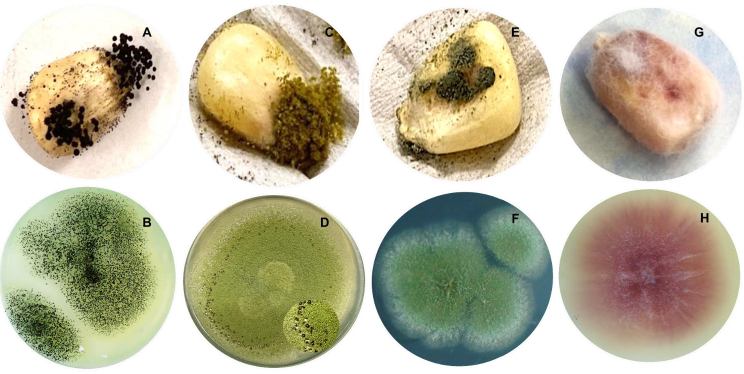
Figura 1. Características miceliales en medio PDA y en grano de maíz de hongos postcosecha; <strong>A-D</strong>) Género <em>Aspergillus</em>; <strong>E-F</strong>) Género <em>Penicillium</em>; <strong>G-H</strong>) Género <em>Fusarium</em>.
Figura 1. Características miceliales en medio PDA y en grano de maíz de hongos postcosecha; A-D) Género Aspergillus; E-F) Género Penicillium; G-H) Género Fusarium.
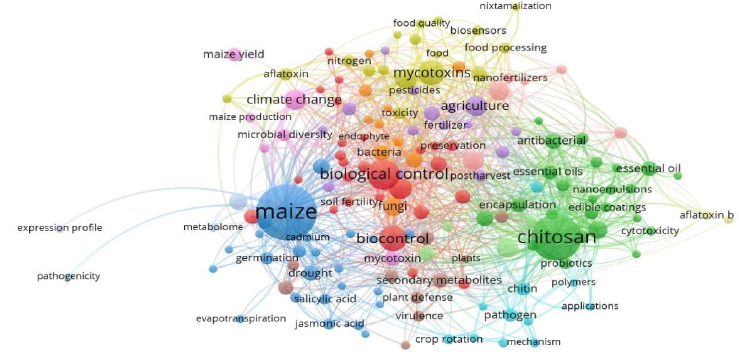
Figura 2. Visualización de red del análisis bibliométrico (VOSviewer ® versión 1.6.19) utilizando palabras claves “maize”, AND, “biological control”, OR, “chitosan”, OR, “essential oil”.
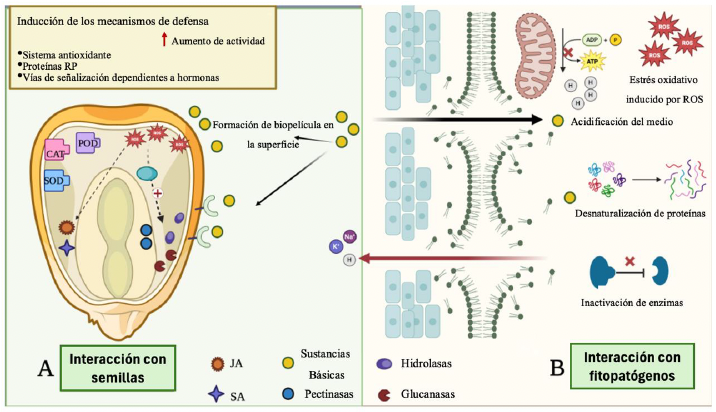
Figura 3. Mecanismos de acción de sustancias básicas. A) Interacción con semillas: Activación de los mecanismos de defensa y formación de biopelícula. B) Interacción con fitopatógenos: efectos antifúngicos ocasionados principalmente por la interacción de las sustancias básicas con la pared y membrana celular del patógeno. RP (Relacionadas con Patógenos), JA (ácido jasmónico), SA (ácido salicílico), ROS (especies reactivas de oxígeno, por sus siglas en inglés «Reactive Oxygen Species»), POD (Peroxidasa), CAT (Catalasa), SOD (Superóxido dismutasa). Imagen propia creada con el programa BioRender.
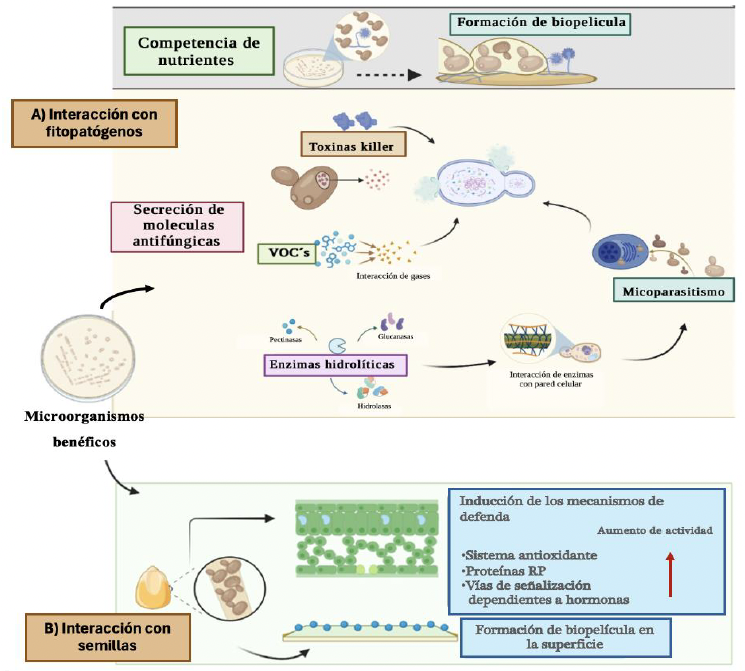
Figura 4. Mecanismos de acción Microorganismos benéficos. A) Interacción con fitopatógenos. B) Interacción con semillas. Imagen creada con el programa BioRender.
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Primer reporte de Fomitopsis meliae causando Damping off en semilleros de Coffea arabica en México

PorVidal Hernández García, Orlando Cruz Sarmiento, Miguel Ángel Salas Marina*, Luis Alfredo Rodríguez Larramendi, Claudio Ríos Velasco

Recibido: 23/septiembre/2025 – Publicado: 18/noviembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2509-4

Resumen Antecedentes/Objetivo. En la región Frailesca, Chiapas, México, los semilleros de café (Coffea arabica) frecuentemente presentan alta mortalidad de plántulas con síntomas atribuido al complejo fitopatológico Damping-off. El objetivo de este estudio fue diagnosticar morfológica y molecularmente nuevos agentes causales del Damping off en plántulas de café.

Desarrollo experimental. Semillas y plántulas de café con sintomatología de Damping-off de las variedades Typica, Marago, Bourbon, Marsellesa, Costa Rica, Sarchimor, Cerezo amarillo y Pacamara fueron colectadas de semilleros de productores de la región Frailesca, Chiapas. A partir de estas, se aislaron hongos asociados y se identificaron morfológicamente mediante claves dicotómicas y molecularmente utilizando los marcadores ITS1 y ITS4. Para confirmar su etiología, se realizaron los postulados de Koch bajo condiciones de campo utilizando 20 semillas de cada variedad.

Resultados. Se identificaron cuatro aislados fúngicos asociados a síntomas de Damping-off en plántulas de café: Dos especies de Fusarium (Fusarium oxysporum y Fusarium solani), Phoma costarricensis y Fomitopsis meliae, este último presentó estructuras como cistidiolos hialinos y coincidió molecularmente en un 97.23 % de similitud con Fomitopsis meliae. Las pruebas de patogenicidad confirmaron que Fomitopsis meliae es un nuevo agente causal de Damping-off, al provocar síntomas de; pudrición raíces, pudrición basal del tallo y muerte de las plántulas.

Conclusión. Este es el primer reporte de Fomitopsis meliae como nuevo agente causal del Damping-off en semilleros de café de las variedades Typica, Marago, Bourbon, Marsellesa, Costa Rica, Sarchimor, Cerezo amarillo y Pacamara en México.

Mostrar Figuras y/o Cuadros
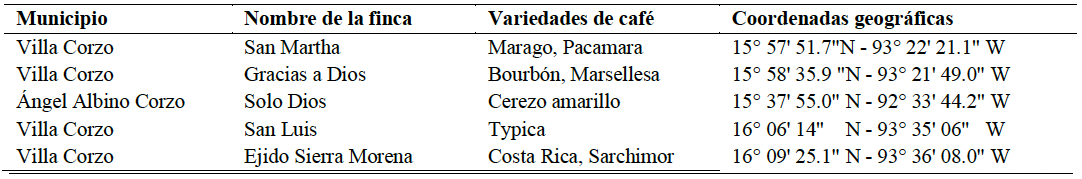
Cuadro 1. Fincas cafetaleras muestreadas con síntomas <em>Damping off</em> en la región Frailesca, Chiapas.
Cuadro 1. Fincas cafetaleras muestreadas con síntomas Damping off en la región Frailesca, Chiapas.
Figura 1. Plántulas de café de diferentes variedades con síntomas del <em>Damping off</em>; A). Marago; B) Typica; C) Costa Rica; D) Sarchimor; E) Marsellesa; F) Bourbón.
Figura 1. Plántulas de café de diferentes variedades con síntomas del Damping off; A). Marago; B) Typica; C) Costa Rica; D) Sarchimor; E) Marsellesa; F) Bourbón.
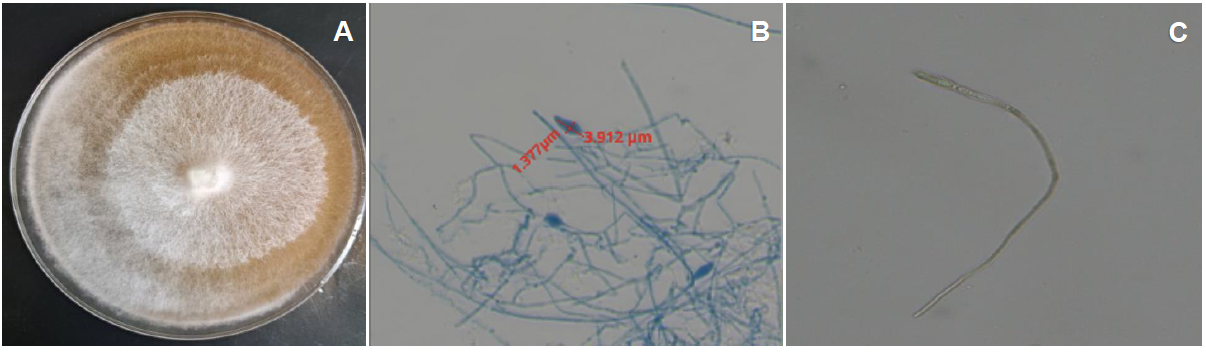
Figura 2. Características morfológicas de <em>Fomitopsis meliae</em>; A) Colonia desarrollada en medio PDA; B) Longitud y ancho de los cistidiolos; C) Cistidiolos en agua observadas en el microscopio a 40X.
Figura 2. Características morfológicas de Fomitopsis meliae; A) Colonia desarrollada en medio PDA; B) Longitud y ancho de los cistidiolos; C) Cistidiolos en agua observadas en el microscopio a 40X.
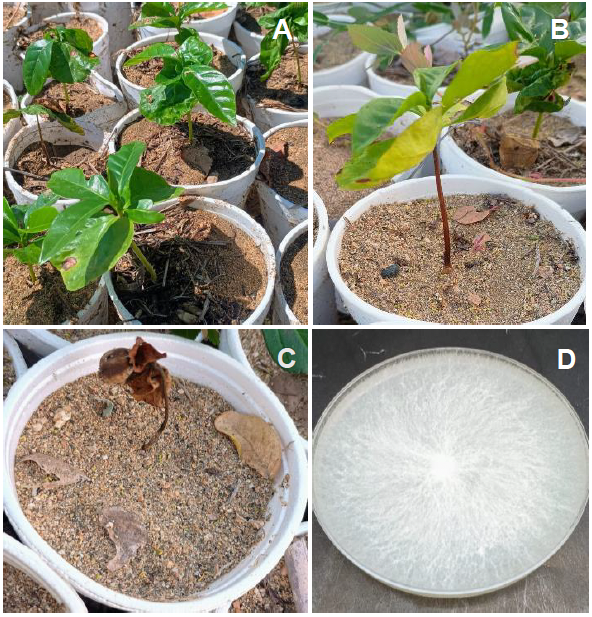
Figura 3. Síntomas reproducidas en plántulas de café inoculadas con <em>Fomitopsis meliae</em>; A) Plántula control; B) Enferma; C) Muerta; D) <em>F</em>. <em>meliae</em> reaislado en medio PDA.
Figura 3. Síntomas reproducidas en plántulas de café inoculadas con Fomitopsis meliae; A) Plántula control; B) Enferma; C) Muerta; D) F. meliae reaislado en medio PDA.
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Pochonia chlamydosporia var. chlamydosporia sobre huevos de Meloidogyne incognita de Escuinapa, Sinaloa

PorOmar Jiménez Pérez, Bernardo Espinosa Palomeque, Augusto Gil Ceballos Ceballos, Francisco Castillo Reyes, Gabriel Gallegos Morales*

Recibido: 30/noviembre/2024 – Publicado: 14/noviembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-31

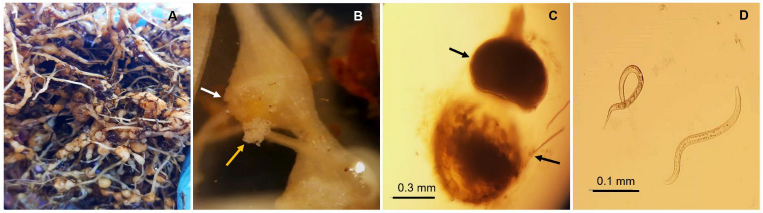
Resumen Antecedentes/Objetivo. El cultivo del chile es de gran importancia para Escuinapa por ser el mayor productor de chile en Sinaloa, México. Su producción se ve afectada por diversas plagas, como el nematodo Meloidogyne que llega a ocasionar hasta el 50 % de pérdidas. Su control radica en aplicaciones de nematicidas químicos. Por lo tanto, la necesidad de más alternativas sustentables de biocontrol es crucial. El objetivo de este estudio fue aislar e identificar al nematodo y al hongo parasito de nematodos y evaluar su parasitismo in vitro sobre huevos del nematodo agallador de plantas de chile de Escuinapa, Sinaloa.

Desarrollo experimental. Se colectaron raíces de chile con agallas de nematodos para aislar e identificar al nematodo causante de la enfermedad y a hongos nematófagos. Las hembras y juveniles se identificaron mediante cortes perineales y morfometría. El hongo nematófago se identificó morfológicamente y por secuenciación molecular (ITS1 e ITS2). Se evaluó el parasitismo in vitro del hongo sobre huevos de Meloidogyne a seis concentraciones de esporas más un testigo. Con los datos obtenidos se calculó el porcentaje de parasitismo y la DL50 y DL95 mediante análisis probit.

Resultados. Se identificó morfológicamente a Meloidogyne incognita como el nematodo agallador de raíces de plantas de chile. A su vez, se aisló e identificó morfológica y molecularmente a Pochonia chlamydosporia var. chlamydosporia, el cual, demostró altos porcentajes de parasitismo (98.9 %) in vitro sobre huevos de este nematodo en un periodo de tiempo de 48 horas.

Conclusión. Se aisló una cepa de Pochonia chlamydosporia de Meloidogyne incognita que presentó altos niveles de parasitismo en huevos (80 a 98 %) de este nematodo in vitro. Ensayos in vivo y en campo pudieran confirmar su eficacia de control como bionematicida.

Mostrar Figuras y/o Cuadros
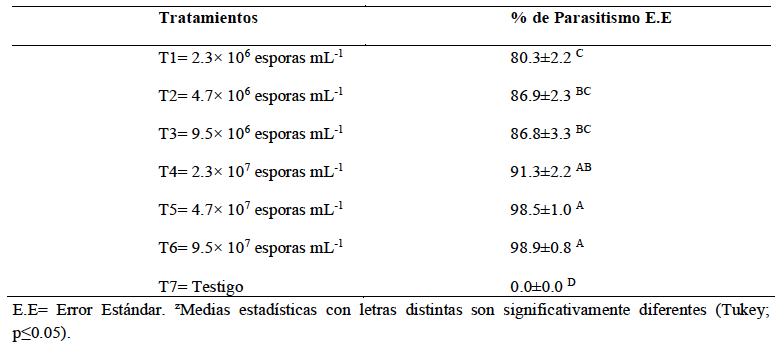
Cuadro 1. Porcentaje de parasitismo de <em>Pochonia chlamydosporia</em> sobre huevos de <em>Meloidogyne incognita</em> bajo condiciones <em>in vitro</em>.
Cuadro 1. Porcentaje de parasitismo de Pochonia chlamydosporia sobre huevos de Meloidogyne incognita bajo condiciones in vitro.
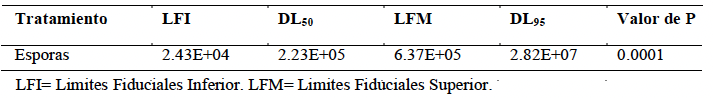
Cuadro 2. Análisis probabilístico de la concentración de esporas de <em>Pochonia chlamydosporia</em> en la supresión de huevos de <em>Meloidogyne</em> <em>incognita</em>.
Cuadro 2. Análisis probabilístico de la concentración de esporas de Pochonia chlamydosporia en la supresión de huevos de Meloidogyne incognita.
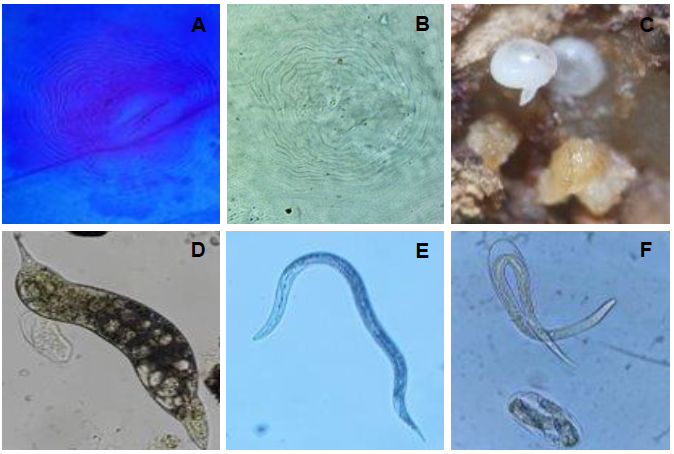
Figura 1. Características morfológicas de <em>Meloidogyne incognita</em>; A y B) Corte perianal de hembras globosas; C) Hembras globosas; D) Juvenil J4; E) Estado juvenil J2; F) Estado juvenil J2 eclosionando del huevo.
Figura 1. Características morfológicas de Meloidogyne incognita; A y B) Corte perianal de hembras globosas; C) Hembras globosas; D) Juvenil J4; E) Estado juvenil J2; F) Estado juvenil J2 eclosionando del huevo.
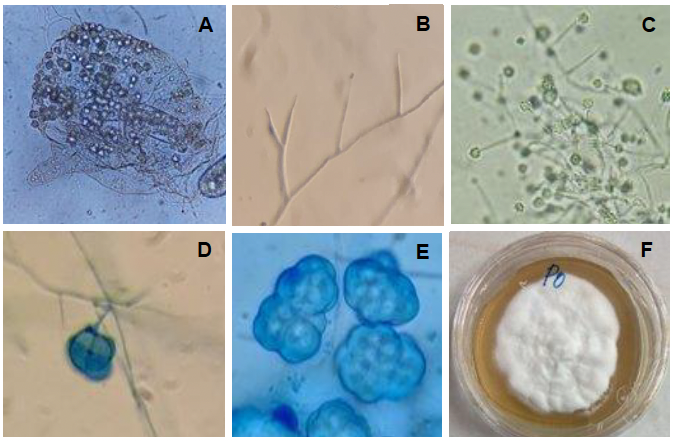
Figura 2. Características morfológicas de <em>Pochonia chlamydosporia</em> var. <em>chlamydosporia</em>; A) Hembra globosa de donde fue aislado <em>Pochonia</em>, con presencia de dictioclamidosporas; B) Conidióforos ramificados verticilados; C) Producción de esporas en racimo; D) Formación de dictioclamidospora; E) Grupo de dictioclamidosporas; F) Micelio de coloración blanquecino.
Figura 2. Características morfológicas de Pochonia chlamydosporia var. chlamydosporia; A) Hembra globosa de donde fue aislado Pochonia, con presencia de dictioclamidosporas; B) Conidióforos ramificados verticilados; C) Producción de esporas en racimo; D) Formación de dictioclamidospora; E) Grupo de dictioclamidosporas; F) Micelio de coloración blanquecino.
Figura 3. Parasitismo de <em>Pochonia chlamydosporia</em> sobre huevos de <em>Meloidogyne incognita</em>; A) Huevos parasitados con gran cantidad de micelio; B) Micelio saliendo del huevecillo y presencia de esporas en la superficie del huevecillo; C) Huevecillo parasitado con micelio. y presencia de dictioclamidosporas; D) Huevos del tratamiento testigo.
Figura 3. Parasitismo de Pochonia chlamydosporia sobre huevos de Meloidogyne incognita; A) Huevos parasitados con gran cantidad de micelio; B) Micelio saliendo del huevecillo y presencia de esporas en la superficie del huevecillo; C) Huevecillo parasitado con micelio. y presencia de dictioclamidosporas; D) Huevos del tratamiento testigo.
  • Vol. 2026, 44(1)
  • Artículo Científico

Actividad antifúngica de micropartículas de ZnO con distintas morfologías frente a Rhizoctonia sp.

PorFlor A Macías Mendoza, Laila Muñoz Castellanos, Juan C Pantoja Espinoza, Francisco Paraguay Delgado*

Recibido: 08/agosto/2025 – Publicado: 13/noviembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2508-1

Resumen Antecedentes/Objetivo. El objetivo principal del estudio fue sintetizar micropartículas (MP) de óxido de zinc (ZnO) con tres tipos de morfologías (prismas, laminas y varillas) para evaluar su actividad antifúngica contra Rhizoctonia sp. Se planteó la hipótesis de que la morfología y la concentración de ZnO son factores clave que influyen en la eficacia antifúngica, sugiriendo que el control morfológico de partículas de ZnO puede aportar en el tratamiento de enfermedades fúngicas.

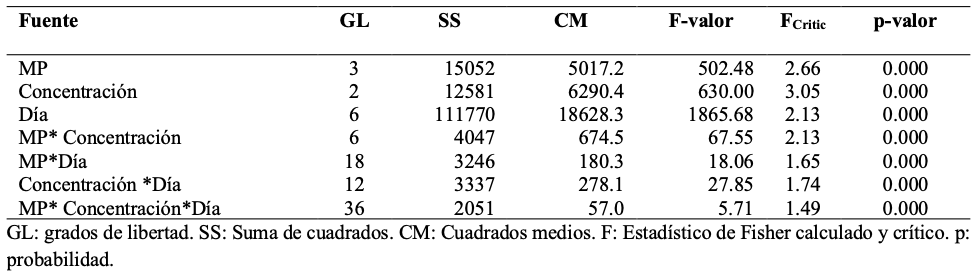
Materiales y Métodos. Las MP de ZnO se sintetizaron mediante el método hidrotérmico para obtener tres morfologías: prismas, laminas y varillas. Se caracterizaron mediante microscopía electrónica de barrido (MEB) y difracción de rayos X (DRX). Se evaluó la actividad antifúngica de ZnO a concentraciones de 200, 500 y 1000 ppm frente a Rhizoctonia sp. Se realizó un análisis estadístico utilizando ANOVA y la prueba diferencia mínima significativa (LSD) de Fisher para evaluar los efectos de la morfología, la concentración y el tiempo sobre el crecimiento fúngico.

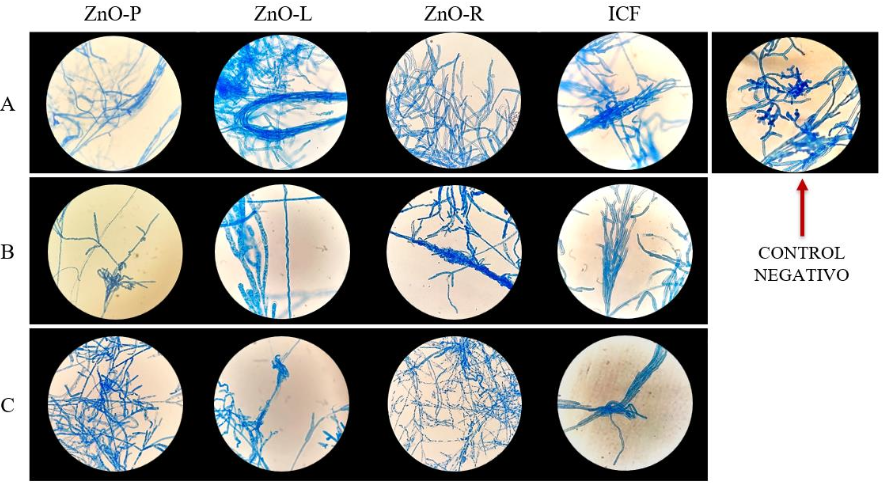
Resultados. Se observó una inhibición de crecimiento significativa de Rhizoctonia sp. bajo las concentraciones 500 y 1000 ppm de ZnO. Mientras que la inhibición entre el control negativo y la concentración de 200 ppm de ZnO no fue significativa. Además, se identificó la formación de esclerocios a la concentración más baja (200 ppm) en todas las muestras de ZnO, así como a 500 ppm con la morfología laminar (ZnO-L). La evaluación microscópica a 200 ppm también reveló daños estructurales en las hifas y condensación citoplasmática. Sin embargo, esto no se encontró en los tratamientos a 1000 ppm. Las partículas de ZnO con morfología de varillas (ZnO-R) mostraron la actividad antifúngica más eficaz.

Conclusión. Las partículas ZnO-R mostraron una prometedora actividad antifúngica contra Rhizoctonia sp. La eficacia aumentó a concentraciones de 500 y 1000 ppm, lo que dio lugar a una inhibición significativa del crecimiento fúngico. La morfología y la concentración de las partículas son factores clave que influyen en el crecimiento antifúngico. Este resultado demuestra que la morfología de las partículas de ZnO desempeña un papel crucial en el control de las enfermedades fúngicas con Rhizoctonia sp.

Mostrar Figuras y/o Cuadros
Cuadro 1. ANOVA para el crecimiento micelial (mm) en función del tipo y la concentración de MPs de ZnO, así como del tiempo de incubación (días).
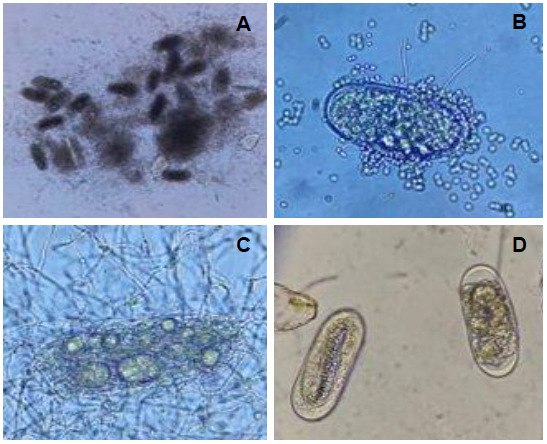
Figura 1. Micrografías obtenidas por MEB de las MPs de ZnO con las tres morfologías, ZnO-P (A, D), ZnO-L (B, E) y ZnO-R (C, F). Distribución de tamaños de partículas de ZnO-P (G), ZnO-L (H) y ZnO-R (I).
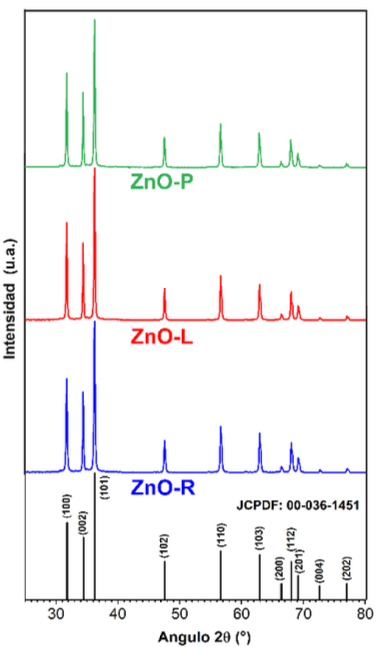
Figura 2. Patrones de difracción de rayos X (DRX) de las tres MPs de ZnO: ZnO-P (verde), ZnO-L (rojo) y ZnO-R (azul). Todos los picos de difracción se indexan con la estructura hexagonal de wurtzita del ZnO (JCPDF: 00-036-1451).
Figura 3. Crecimiento (mm) de <em>Rhizoctonia</em> sp. respecto al tiempo (días) con las muestras (A) ZnO-P, (B) ZnO-L y (C) ZnO-R comparadas con ICF (D) y el control negativo (E). Las etiquetas (A, B y C) en las gráficas corresponden a las concentraciones A: 1000 ppm, B: 500 ppm y C: 200 ppm.
Figura 3. Crecimiento (mm) de Rhizoctonia sp. respecto al tiempo (días) con las muestras (A) ZnO-P, (B) ZnO-L y (C) ZnO-R comparadas con ICF (D) y el control negativo (E). Las etiquetas (A, B y C) en las gráficas corresponden a las concentraciones A: 1000 ppm, B: 500 ppm y C: 200 ppm.
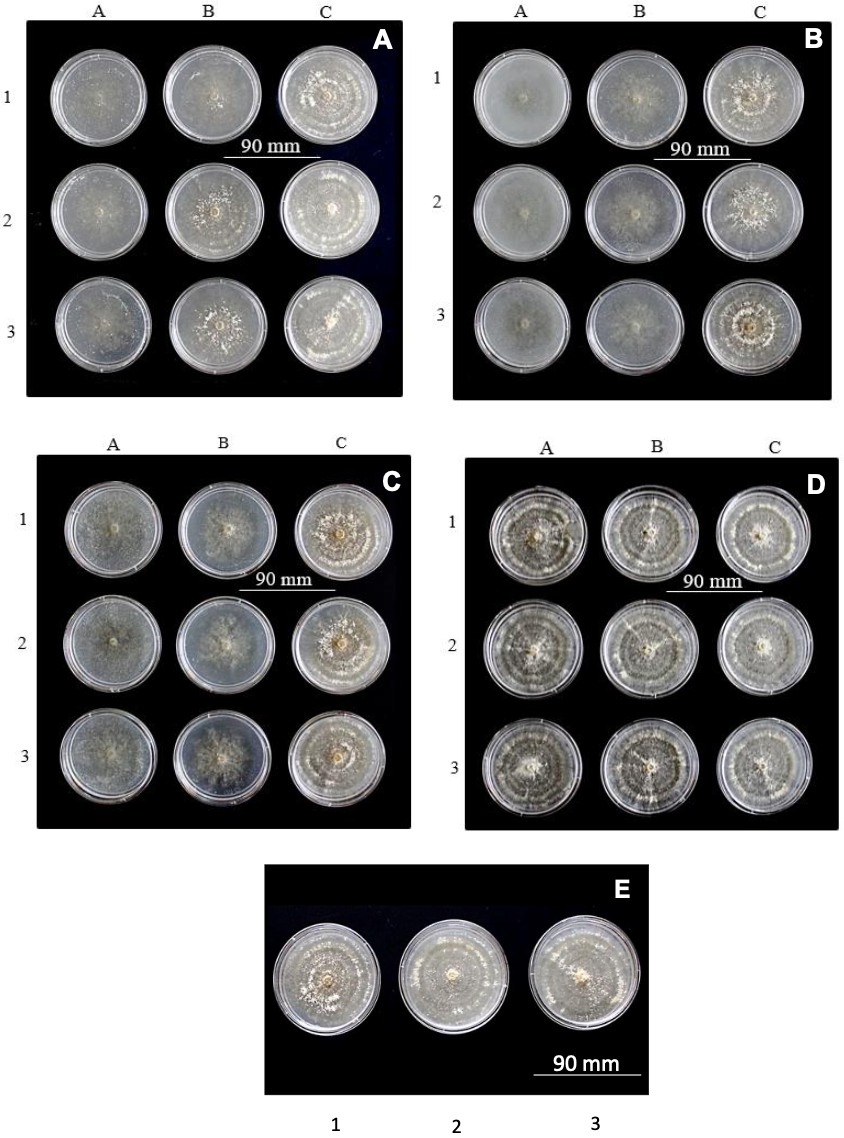
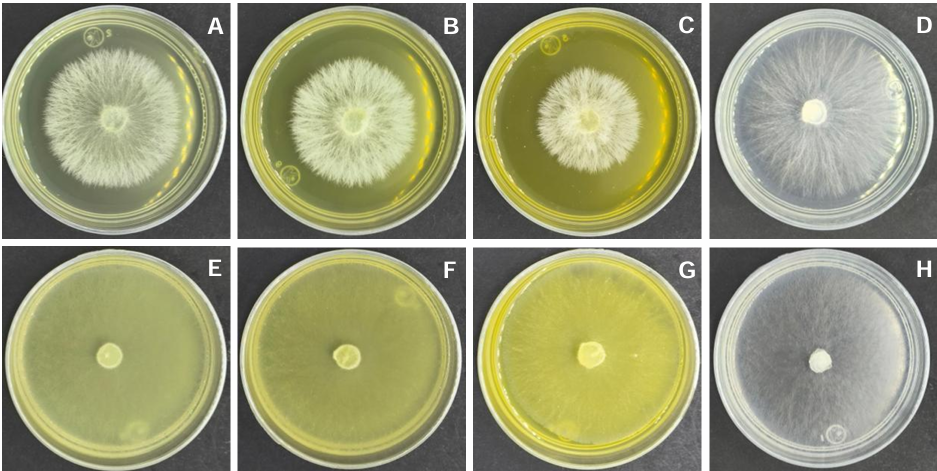
Figura 4. Morfología macroscópica del micelio aéreo. <em>Rhizoctonia</em> sp. en agar PDA con MPs: las imágenes se obtuvieron en la inspección del séptimo día, (A) ZnO-P, (B) ZnO-L, (C) ZnO-R en comparación con ICF (D) y el control negativo (E). Las etiquetas de las columnas (A, B y C) en los gráficos representan las siguientes concentraciones: A, 1000 ppm; B, 500 ppm; y C, 200 ppm. Los números etiquetados como 1, 2 y 3 representan el número de repeticiones.
Figura 4. Morfología macroscópica del micelio aéreo. Rhizoctonia sp. en agar PDA con MPs: las imágenes se obtuvieron en la inspección del séptimo día, (A) ZnO-P, (B) ZnO-L, (C) ZnO-R en comparación con ICF (D) y el control negativo (E). Las etiquetas de las columnas (A, B y C) en los gráficos representan las siguientes concentraciones: A, 1000 ppm; B, 500 ppm; y C, 200 ppm. Los números etiquetados como 1, 2 y 3 representan el número de repeticiones.
Figura 5. Morfología microscópica de <em>Rhizoctonia</em> sp. en agar PDA con concentraciones de MPs de ZnO, A: 1000 ppm, B: 500 ppm y C: 200 ppm; ZnO-P, ZnO-L, ZnO-R en comparación con ICF y el control negativo tras 7 días de crecimiento. El aumento del microscopio óptico fue de 40X. Usando tinción azul de lactofenol.
Figura 5. Morfología microscópica de Rhizoctonia sp. en agar PDA con concentraciones de MPs de ZnO, A: 1000 ppm, B: 500 ppm y C: 200 ppm; ZnO-P, ZnO-L, ZnO-R en comparación con ICF y el control negativo tras 7 días de crecimiento. El aumento del microscopio óptico fue de 40X. Usando tinción azul de lactofenol.
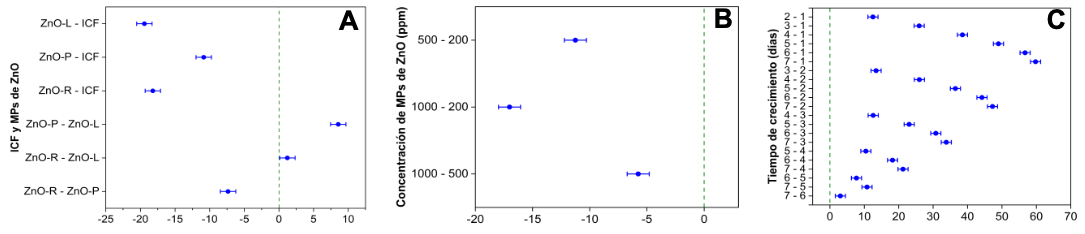
Figura 6. Prueba de diferencias de medias para el crecimiento (mm) mediante la prueba LSD de Fisher para (A) tratamientos, (B) concentraciones y (C) tiempo (días).
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Efecto del fungicida pidiflumetofeno in vitro contra aislados de Fusarium virguliforme y Sclerotinia sclerotiorum de Iowa, USA

PorEdgar H Nieto Lopez, Austin Bierl, Desiree Chang Villatoro, Parbati Joshi, José F González Acuña, Stith Wiggs, Daren Mueller*

Recibido: 05/mayo/2025 – Publicado: 31/octubre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2505-2

Resumen Antecedentes/Objetivo. El síndrome de la muerte súbita causado por Fusarium virguliforme (Fv) y el moho blanco causado por Sclerotinia sclerotiorum (Ss) son de las enfermedades más importantes de soya, en cuanto a pérdidas de rendimiento en el norte de USA. Pocos estudios han estimado el EC50 del fungicida pidiflumetofeno para el crecimiento micelial de aislados de Fv y Ss de Iowa, así como el EC50 para la producción de esclerocios de Ss.

Desarrollo Experimental. Papa dextrosa agar (PDA) a 1/3 de su concentración fue suplementado con Saltro® (pidiflumetofeno 41.7 %) en 0.0008, 0.0042, 0.0083, 0.0417, 0.0834, 0.8340 y 834 ppm a partir de diluciones en serie. Los aislados fueron incubados en oscuridad a 25 °C. Los aislados de Fv fueron evaluados a los 7 días y los de Ss a las 48 h de inoculados, midiendo el crecimiento radial. El número y peso seco de los esclerocios fueron registrados a los 21 días de incubación.

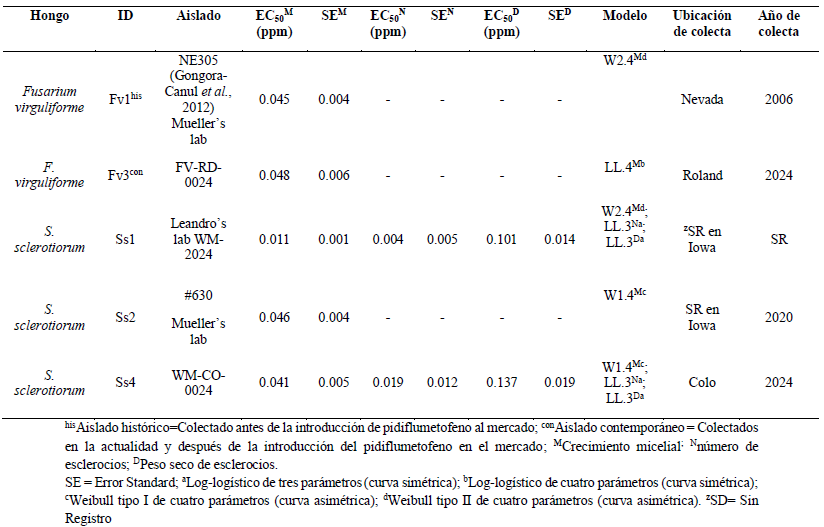
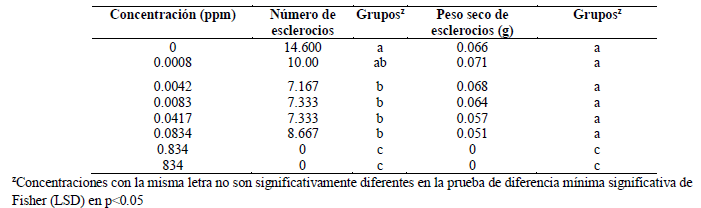
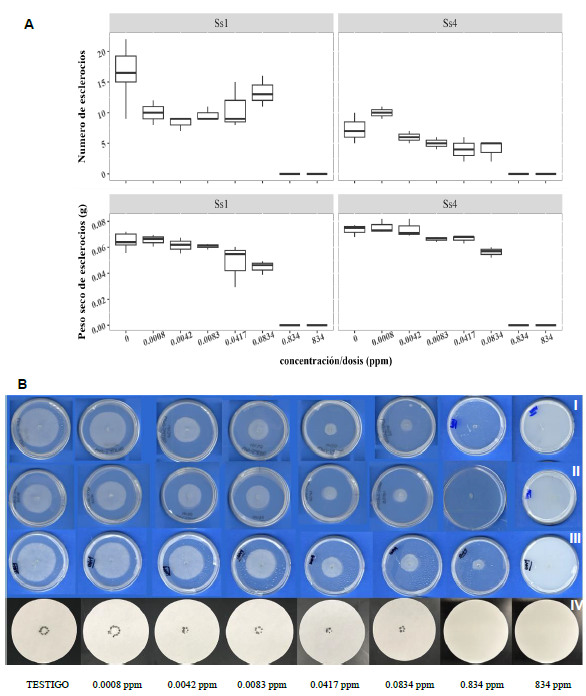
Resultados. Los valores absolutos del EC50 del pidiflumetofeno para el crecimiento micelial de Fv fueron 0.045 y 0.048 ppm. El aislado contemporáneo (FV-RD-0024; colectado en el año 2024) e histórico (NE205; colectado en el año 2006 —años antes de la introducción de pidiflumetofeno en el mercado), ambos presentaron un EC50 para el crecimiento micelial en el rango de la línea base (0.04–0.24 ppm) en USA. Los valores de EC50 para el crecimiento micelial de los aislados contemporáneos de Ss presentaron un rango de 0.011 a 0.046 ppm, el cual está dentro de la línea base de hospedantes de soya y de no soya, de China. Las concentraciones de 0.834 y 834 ppm fueron estadísticamente diferentes (sin producción de esclerocios) al testigo, el cual presentó 14.6 esclerocios y 0.066 g.

Conclusión. Los valores de EC50 del crecimiento micelial de los aislados de F. virguliforme de Iowa están en el rango de reportes previos en USA. Los valores de EC50 del crecimiento micelial de los aislados de S. sclerotiorum de Iowa están en el rango de reportes previos fuera de USA. Pidiflumetofeno tiene el potencial efecto de disminuir la producción de esclerocios, pero son necesarios más estudios.

Mostrar Figuras y/o Cuadros
Cuadro 1. Aislados de <em>Fusarium virguliforme</em> (Fv) y <em>Sclerotinia sclerotiorum</em> (Ss) usados en el estudio, incluyendo sus antecedentes y su estimado EC<sub>50</sub> valor absoluto por variable de las placas de Petri suplementadas con el fungicida pidiflumetofeno (Saltro®; Syngenta) a 0.0008, 0.0042, 0.0083, 0.0417, 0.0834, 0.8340, y 834 ppm mediante dilución seriada. El aislado Ss2 (#630) muestra solo un modelo, ya que no produjo esclerocios en el testigo.
Cuadro 1. Aislados de Fusarium virguliforme (Fv) y Sclerotinia sclerotiorum (Ss) usados en el estudio, incluyendo sus antecedentes y su estimado EC50 valor absoluto por variable de las placas de Petri suplementadas con el fungicida pidiflumetofeno (Saltro®; Syngenta) a 0.0008, 0.0042, 0.0083, 0.0417, 0.0834, 0.8340, y 834 ppm mediante dilución seriada. El aislado Ss2 (#630) muestra solo un modelo, ya que no produjo esclerocios en el testigo.
Cuadro 2. Promedio en el número y peso seco de los esclerocios producidos por aislados de <em>Sclerotinia sclerotiorum</em> Ss1 (WM-2024) y Ss4 (WM-CO-0024) incubados por 21 días en oscuridad a 25 °C. Las placas Petri suplementadas con el fungicida pidiflumetofeno. Variables entre ambos aislados fueron combinadas.
Cuadro 2. Promedio en el número y peso seco de los esclerocios producidos por aislados de Sclerotinia sclerotiorum Ss1 (WM-2024) y Ss4 (WM-CO-0024) incubados por 21 días en oscuridad a 25 °C. Las placas Petri suplementadas con el fungicida pidiflumetofeno. Variables entre ambos aislados fueron combinadas.
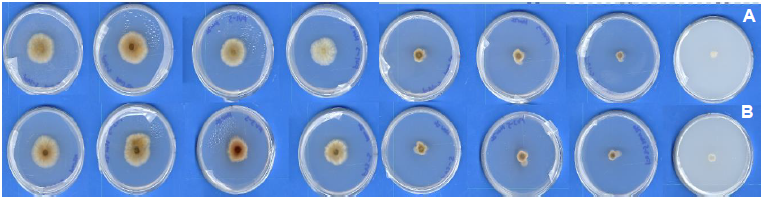
Figura 1. Aislados de <em>Fusarium virguliforme</em> en placas Petri con PDA a 1/3 de su concentración, incubados a 7 días después de la inoculación (DDI) en oscuridad a 25 °C. Placas Petri suplementadas con el fungicida pidiflumetofeno en dilución seriada. A) Aislado <em>Fusarium virguliforme</em> Fv1 (NE305); B) Aislado <em>Fusarium virguliforme</em> Fv3 (FV-RD-0024).
Figura 1. Aislados de Fusarium virguliforme en placas Petri con PDA a 1/3 de su concentración, incubados a 7 días después de la inoculación (DDI) en oscuridad a 25 °C. Placas Petri suplementadas con el fungicida pidiflumetofeno en dilución seriada. A) Aislado Fusarium virguliforme Fv1 (NE305); B) Aislado Fusarium virguliforme Fv3 (FV-RD-0024).
Figura 2. Crecimiento micelial y producción de esclerocios en placas Petri de <em>Sclerotinia sclerotiorum</em> incubados en oscuridad a 25 °C. Placas Petri suplementadas con el fungicida pidiflumetofeno en dilución seriada. A) Diagrama de caja. B) Imagen en la cual un mismo aislado se encuentra en la misma fila con diferentes concentraciones que se incrementan de izquierda a derecha. Paneles B-I to B-III: Crecimiento micelial a las 48 horas después de la inoculación (HDI); B-I) Aislado <em>Sclerotinia sclerotiorum</em> Ss1 – etiquetado WM1 (WM-2024); Aislado <em>Sclerotinia sclerotiorum</em> Ss2 – etiquetado WM2 (#630); B-III) Aislado <em>Sclerotinia sclerotiorum</em> Ss4 – etiquetado WM4 (WM-CO-0024); Panel B-IV: Producción de esclerocios a los 21 días de incubación (DDI); B-IV) Aislado <em>Sclerotinia sclerotiorum</em> Ss4 (WM-CO-0024).
Figura 2. Crecimiento micelial y producción de esclerocios en placas Petri de Sclerotinia sclerotiorum incubados en oscuridad a 25 °C. Placas Petri suplementadas con el fungicida pidiflumetofeno en dilución seriada. A) Diagrama de caja. B) Imagen en la cual un mismo aislado se encuentra en la misma fila con diferentes concentraciones que se incrementan de izquierda a derecha. Paneles B-I to B-III: Crecimiento micelial a las 48 horas después de la inoculación (HDI); B-I) Aislado Sclerotinia sclerotiorum Ss1 – etiquetado WM1 (WM-2024); Aislado Sclerotinia sclerotiorum Ss2 – etiquetado WM2 (#630); B-III) Aislado Sclerotinia sclerotiorum Ss4 – etiquetado WM4 (WM-CO-0024); Panel B-IV: Producción de esclerocios a los 21 días de incubación (DDI); B-IV) Aislado Sclerotinia sclerotiorum Ss4 (WM-CO-0024).
  • Vol. 2025, 43(4)
  • Nota Fitopatológica
  • Número Especial

Efecto de micorrizas arbusculares en caña de azúcar y en el biocontrol de Fusarium andiyazi

PorMaría Eugenia Rodríguez Luqueño, Edgar Martínez Fernández*, Patricia Martínez Jaimes, Víctor Manuel Hernández Velázquez, Verónica Obregón Barbosa, Jorge Luis Folch Mallol

Recibido: 30/noviembre/2024 – Publicado: 14/octubre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-30

Resumen Antecedentes/Objetivo. Dentro del complejo de especies de Fusarium causantes de la necrosis de la raíz de la caña de azúcar destaca F. andiyazi por su patogenicidad. El objetivo de este estudio fue evaluar el efecto de hongos micorrízicos arbusculares (HMA) nativos de Morelos sobre el desarrollo de la caña de azúcar y su potencial en el biocontrol de F. andiyazi.

Desarrollo experimental. Se recolectaron muestras de suelo en campos de caña de azúcar en Jojutla, Morelos, donde se identificaron quince morfoespecies de HMA utilizadas como tratamientos en dos bioensayos. En el primer bioensayo se evaluaron parámetros de crecimiento y colonización micorrízica. En el segundo, se analizó la biomasa de las plantas inoculadas con F. andiyazi y el grado de necrosis en raíces como indicador del biocontrol. Los datos se analizaron mediante ANOVA y pruebas de separación de medias (p≤0.05).

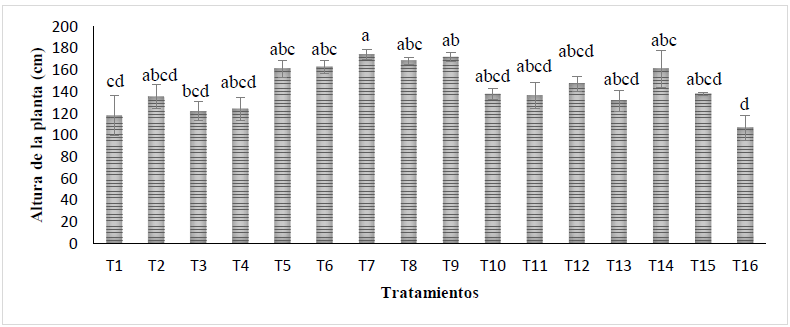
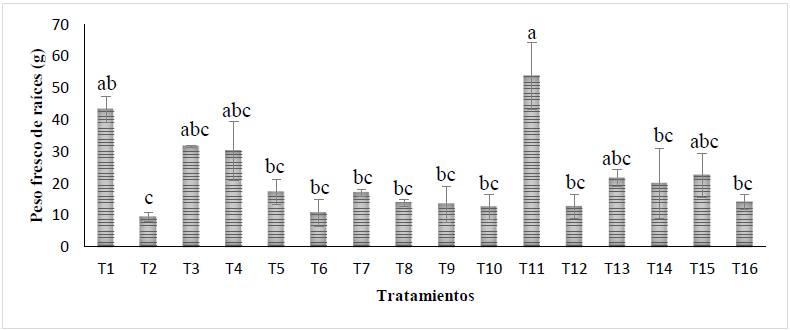
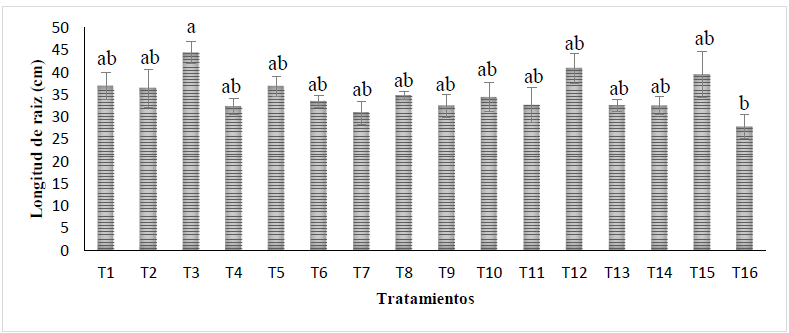
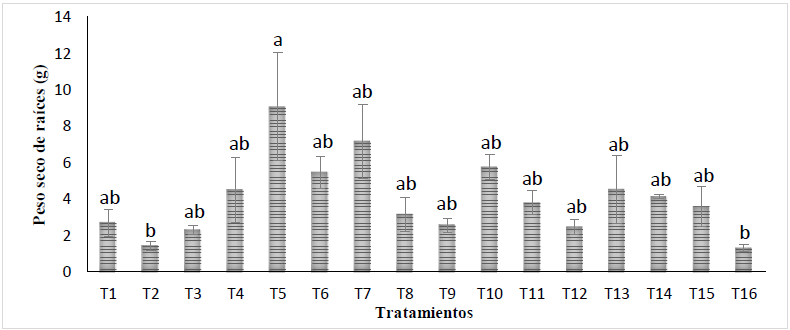
Resultados. En el primer bioensayo, los géneros Acaulospora y Glomus obtuvieron los mayores valores en la micorrización, además, incrementaron significativamente la altura de las plantas, longitud y peso fresco de raíces. Por otra parte, en el segundo bioensayo con las plantas micorrizadas sometidas a la inoculación con F. andiyazi se presentó un desarrollo significativo en la longitud y peso seco de raíces. Las morfoespecies G. ambisporum y G. mosseae, limitaron la infección en raíces aproximadamente a solo un 10 % de daño.

Conclusión. Los HMA nativos de Morelos demostraron su capacidad para estimular el crecimiento de la caña de azúcar y disminuyeron los daños causados por F. andiyazi.

Mostrar Figuras y/o Cuadros
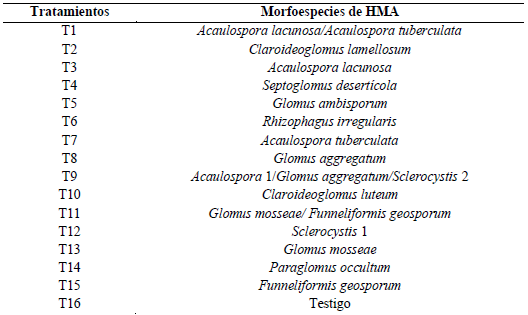
Cuadro 1. Morfoespecies de hongos micorrízicos arbusculares (HMA) utilizados como tratamientos en los bioensayos en caña de azúcar.
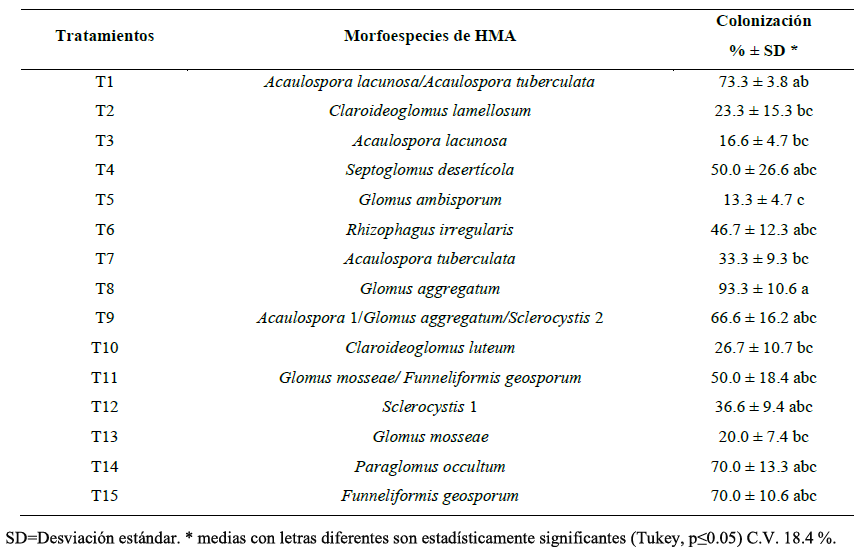
Cuadro 2. Colonización de hongos micorrízicos arbusculares (HMA) en las raíces de caña de azúcar.
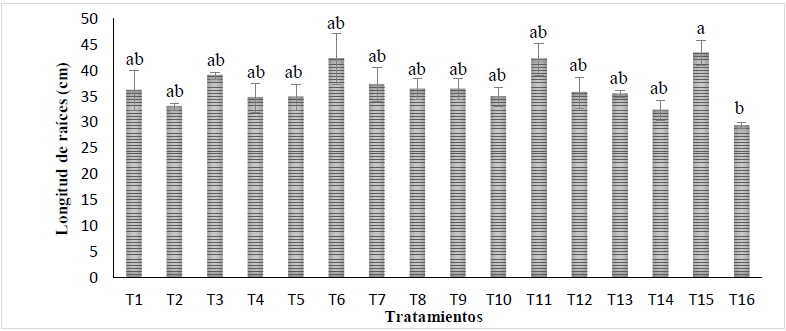
Figura 1. Efecto de la inoculación de HMA en la altura de plantas de caña de azúcar en el Bioensayo 1 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. = 11.81.
Figura 2. Efecto de la inoculación de HMA en el peso fresco de las raíces de caña de azúcar en el Bioensayo 1 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. =17.67.
Figura 3. Efecto de la inoculación de HMA en la longitud de raíz de plantas de caña de azúcar en el Bioensayo 1 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 12.19.
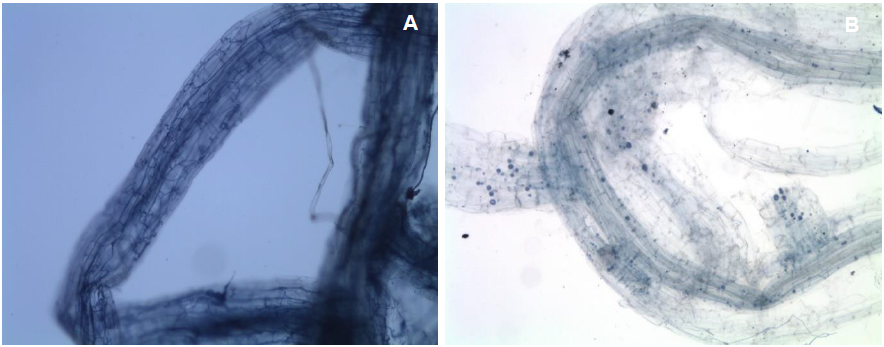
Figura 4. Colonización micorrízica de los HMA en raíces de caña de azúcar teñidas con azul de tripano (40X). (A) Desarrollo de hifas de <em>Glomus aggregatum</em> (T8). (B) Desarrollo de hifas y esporas de <em>Claroideoglomus luteum</em>.
Figura 4. Colonización micorrízica de los HMA en raíces de caña de azúcar teñidas con azul de tripano (40X). (A) Desarrollo de hifas de Glomus aggregatum (T8). (B) Desarrollo de hifas y esporas de Claroideoglomus luteum.
Figura 5. Efecto de la inoculación de HMA en la longitud de raíz de plantas de caña de azúcar en el Bioensayo 2 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 14.39.
Figura 6. Efecto de la inoculación de HMA en el peso seco de la raíz de plantas de caña de azúcar en el Bioensayo 2 (media ± error estándar). Letras diferentes indican diferencias significativas entre las medias de los tratamientos de acuerdo con la prueba Tukey (p≤0.05), C.V. 27.42.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Control de la roya del café (Hemileia vastatrix) con Trichoderma spp.: evaluación cuantitativa mediante el paquete Pliman

PorSandra Lizveth Enríquez López, Gerardo Alvarado Castillo*, Carlos Roberto Cerdán Cabrera, Rosalba Argumedo Delira, Esteban Escamilla Prado

Recibido: 28/noviembre/2024 – Publicado: 14/octubre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-36

Resumen Antecedentes/Objetivo. La roya (Hemileia vastatrix) reduce la producción y rentabilidad de la cafeticultura. Las alternativas para su control (químico y genético) no han sido del todo eficientes, por lo que se propone el uso de microorganismos como Trichoderma. Actualmente, herramientas como el paquete Pliman ofrecen una alternativa cuantitativa de evaluación de severidad. El objetivo fue evaluar la efectividad de cepas de Trichoderma aplicadas al suelo en la reducción de la severidad de H. vastatrix mediante análisis digital de imágenes con el paquete Pliman.

Materiales y Métodos. Se evaluó el efecto de Trichoderma harzianum (Th), T. asperellum (Ta) y su consorcio (Th_Ta) en dos concentraciones (1x10⁸ y 1x10¹² conidios mL-1) a 42 plantas de café 'Catuaí Amarillo' asintomáticas y sintomáticas. Se realizaron aplicaciones al suelo cada dos meses durante un año. La severidad se cuantificó con el paquete Pliman en R-Studio. Con los datos se realizó un ANOVA factorial y pruebas de Tukey (p<0.05).

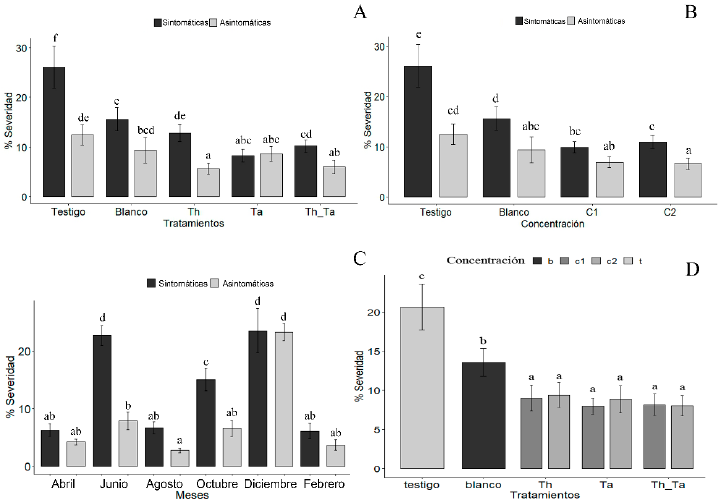
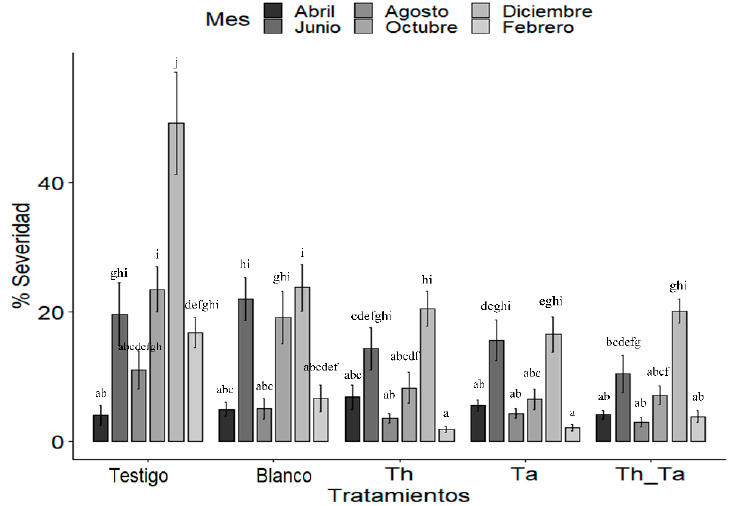
Resultados. Los tratamientos con Trichoderma redujeron significativamente (p < 0.05) la severidad en comparación con el testigo. Las plantas asintomáticas tratadas mostraron la menor severidad (Th_Ta=5.99 %, Th=5.61 %, Ta=8.61 %). En plantas sintomáticas, T. asperellum (Ta) fue el más efectivo, reduciendo la severidad a un 8.25 %, valor que no mostró diferencia significativa con el de las plantas asintomáticas tratadas. No se encontraron diferencias significativas entre las concentraciones utilizadas (1x10⁸ y 1x10¹² conidios mL-1). La severidad presentó una clara variación estacional, siendo menor en meses secos (febrero=4.89 %, agosto=4.71 % y abril=5.23 %) y mayor en los lluviosos (junio=15.29 %, octubre=10.79 % y diciembre=23.39 %).

Conclusión. La aplicación al suelo de Trichoderma spp. reduce significativamente la severidad de la roya del café. Los tratamientos más efectivos fueron el consorcio de T. harzianum y T. asperellum en plantas asintomáticas y T. asperellum en plantas sintomáticas, siendo la concentración de 1x10⁸ conidios mL-1 la más recomendable por su eficacia y viabilidad económica. Finalmente, el paquete Pliman demostró ser una herramienta eficaz para la cuantificación objetiva de la enfermedad.

Mostrar Figuras y/o Cuadros
Figura 1. Efecto de los tratamientos con <em>Trichoderma</em> spp. en la severidad de la roya del café (<em>Hemileia vastatrix</em>) en plantas sintomáticas y asintomáticas. A) Interacción entre tipo de planta (sintomática y asintomática) y tratamientos; B) Interacción entre tipo de planta y concentración: (C1 = 1×10<sup>8</sup> conidios mL<sup>-1</sup>, C2 = 1×10<sup>12</sup> conidios mL<sup>-1</sup>); C) Variación de la severidad a lo largo del año; D) Interacción entre tratamientos y concentraciones Las barras indican la media ± error estándar. Las diferencias significativas se determinaron mediante ANOVA de medidas repetidas y prueba de Tukey (p < 0.05).
Figura 1. Efecto de los tratamientos con Trichoderma spp. en la severidad de la roya del café (Hemileia vastatrix) en plantas sintomáticas y asintomáticas. A) Interacción entre tipo de planta (sintomática y asintomática) y tratamientos; B) Interacción entre tipo de planta y concentración: (C1 = 1×10⁸ conidios mL-1, C2 = 1×10¹² conidios mL-1); C) Variación de la severidad a lo largo del año; D) Interacción entre tratamientos y concentraciones Las barras indican la media ± error estándar. Las diferencias significativas se determinaron mediante ANOVA de medidas repetidas y prueba de Tukey (p < 0.05).
Figura 2. Interacción entre tratamientos con <em>Trichoderma</em> spp. y meses de evaluación sobre severidad de la roya del café. La figura muestra la evolución temporal de la severidad en plantas tratadas con <em>T. harzianum</em> (Th), <em>T. asperellum</em> (Ta), su consorcio (Th_Ta), el manejo convencional (blanco) y el testigo sin aplicación. Las barras representan la media ± error estándar. Diferencias significativas determinadas mediante ANOVA de medidas repetidas (p < 0.05).
Figura 2. Interacción entre tratamientos con Trichoderma spp. y meses de evaluación sobre severidad de la roya del café. La figura muestra la evolución temporal de la severidad en plantas tratadas con T. harzianum (Th), T. asperellum (Ta), su consorcio (Th_Ta), el manejo convencional (blanco) y el testigo sin aplicación. Las barras representan la media ± error estándar. Diferencias significativas determinadas mediante ANOVA de medidas repetidas (p < 0.05).

Página 4 de 16