
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)
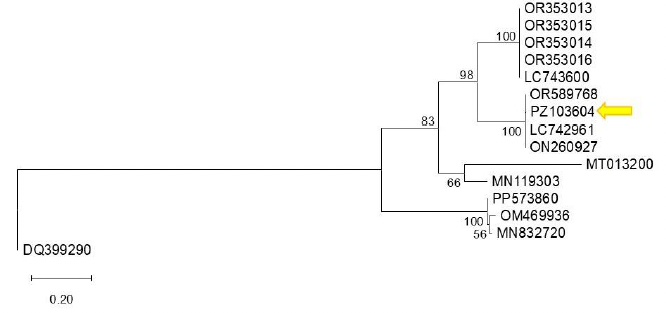
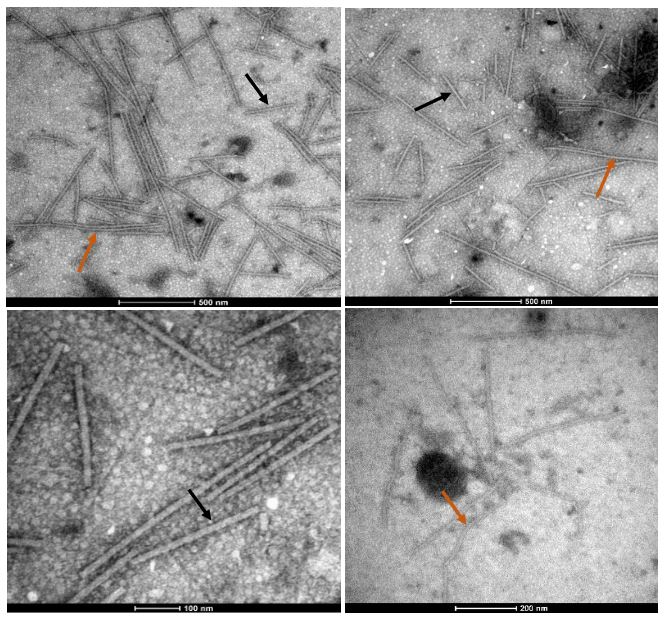
Primera detección de bell pepper endornavirus infectando al pimiento morrón en Guanajuato, México. Figura 1 - El árbol filogenético fue construido usando el método de máxima verosimilitud, basado en la secuencia de la poliproteína de bell pepper endornavirus (BPEV, <em>Alphaendornavirus capsici</em>) y de otras secuencias de endornavirus del pimiento morrón disponibles en GenBank. Secuencias de referencia fueron seleccionadas basadas en su anotación como aislados de BPEV y la disponibilidad de sus secuencias. Los análisis fueron realizados usando el modelo de sustitución de nucleótidos correspondientes. Los valores de soporte de bootstrap (1 000 réplicas) están indicados en los nodos, solo los superiores a 50 % son visibles. La secuencia PZ103604 (indicada por una flecha) se agrupa con secuencias estrechamente relacionadas con un alto soporte bootstrap, sugiriendo una relación filogenética cercana. La secuencia DQ399290 (<em>Betaendornavirus</em>) fue utilizada como grupo externo. La barra de escala representa 0.20 sustituciones por sitio.

Todos los Artículos

  • Vol. 2025, 43(2)
  • Nota Fitopatológica

Sustrato degradado de Pleurotus ostreatus como nematicida de Nacobbus aberrans en plantas de chile (Capsicum annuum)

PorRicardo Del Porte Argueta, Maura Téllez Téllez, Ma. de Lourdes Acosta Urdapilleta, Olga Gómez Rodríguez, Arnoldo Wong Villarreal, Christian Carreño Campos, Liliana Aguilar Marcelino*

Recibido: 27/julio/2024 – Publicado: 17/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2407-2

Resumen Antecedentes/Objetivo. El chile (Capsicum annuum) es uno de los cultivos agrícolas más importantes en México. Por lo que los objetivos fueron determinar el efecto in vitro del sustrato degradado del hongo comestible P. ostreatus cepa HEMIM-50 (SDPO) contra N. aberrans y evaluar la efectividad in situ del SDPO contra N. aberrans en plantas de chile.

Material y Métodos. Para las pruebas in vitro, se utilizaron seis concentraciones seriadas del extracto hidroalcohólico (SDPO) de 0.62 a 20 mg mL-1 contra juveniles de N. aberrans. Se realizó un ANOVA, seguido de una comparación de medias con Tukey (p<0.05), ajustado con Schiller-Orelli. Para el ensayo in situ con plantas de chile se evaluaron tres tratamientos: control (Peat moss), nematicida (Peat moss + Fluopiram) y SDPO (Peat moss 80% + SDPO 20%) y se midieron agallas, masas de huevos y huevos por gramo de raíz a los 45 días. Los datos fueron analizados con las pruebas de GLM y LSD para comparar las medias de cada tratamiento. Todos los análisis estadísticos se analizaron en el programa Statistical Analysis System SAS 9.0.

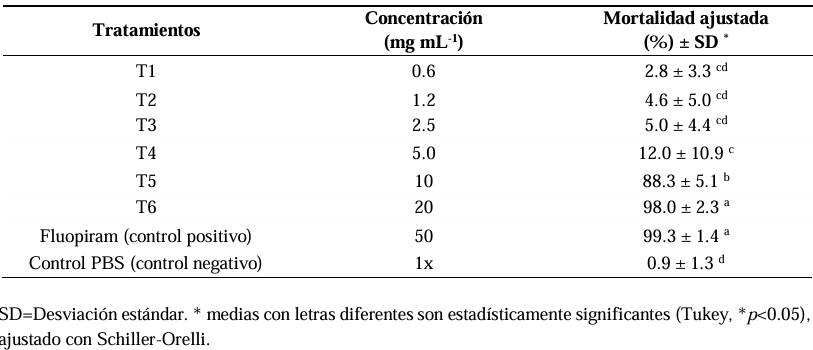
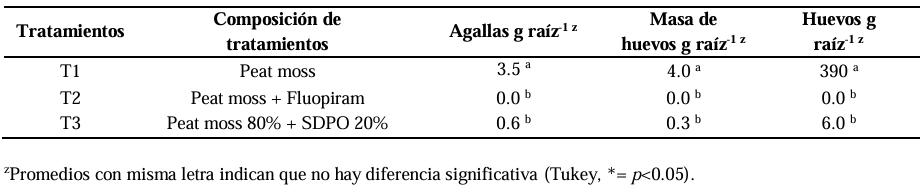
Resultados. El mayor porcentaje de mortalidad se obtuvo con 20 mg mL-1 del SDPO con un 98 % de mortalidad y no tuvo diferencia significativa respecto al control positivo con Fluopiram (p<0.05), seguida de un 88.3 % de mortalidad con tratamiento a 10 mg mL-1. En la evaluación in situ en una combinación de Peat moss 80% + SDPO 20% se presentó una disminución del 82 % número de agallas, un 99 % en la masa de huevos y un 98 % en el número de huevos de N. aberrans respecto al control con Peat moss. No hubo diferencias significativas (0.0b) con la combinación Peat moss + nematicida comercial Fluopiram (Tukey, p<0.05).

Conclusión. El sustrato degradado por P. ostreatus (SDPO) tuvo actividad nematicida (98 %) in vitro contra nematodos juveniles de N. aberrans, además el insumo donde el hongo fue crecido, presentó una disminución de agallas del 82% y un 98% de masas de huevos in situ de N. aberrans que infectaron el cultivo de chile.

Mostrar Figuras y/o Cuadros
Cuadro 1. Mortalidad de <em>N. aberrans</em> (J2) en presencia del extracto del sustrato degradado de <em>P. ostreatus</em> (SDPO) a 72 h post confrontación.
Cuadro 1. Mortalidad de N. aberrans (J2) en presencia del extracto del sustrato degradado de P. ostreatus (SDPO) a 72 h post confrontación.
Cuadro 2. Efecto <em>in situ</em> del sustrato degradado de <em>P. ostreatus</em> contra <em>N. aberrans</em> a los 45 días de la inoculación en plantas de chile.
Cuadro 2. Efecto in situ del sustrato degradado de P. ostreatus contra N. aberrans a los 45 días de la inoculación en plantas de chile.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Antagonismo in vitro de Trichoderma contra Sclerotium rolfsii provenientes de papa (Solanum tuberosum)

PorGabriel Herrera Rodríguez, Gabriel Antonio Lugo García*, María Belén Irazoqui Acosta, Diana Laura Muñoz Bojórquez, Sara Elodia Armenta López, Rubén Félix Gastélum, Hugo Beltrán Peña, Guadalupe Arlene Mora Romero

Recibido: 23/noviembre/2024 – Publicado: 17/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-10

Resumen Antecedentes/Objetivo. Trichoderma constituye una alternativa viable para reducir el potencial destructivo de la pudrición blanda (Sclerotium rolfsii) en el cultivo de papa. Los objetivos de la investigación fueron determinar la efectividad antagónica in vitro de Trichoderma asperellum, T. asperelloides, T. afroharzianum y T. azevedoi contra S. rolfsii (Scr4 y Scr17) y determinar las interacciones hifales de los antagonistas, además de determinar la inhibición del crecimiento micelial de S. rolfsii (Scr4) mediante metabolitos volátiles producidos por las especies de Trichoderma.

Materiales y Métodos. Se estudió la efectividad biológica in vitro de 16 aislados de T. asperellum, cinco de T. asperelloides, cuatro de T. afroharzianum, uno de T. azevedoi, sobre la inhibición del crecimiento micelial de S. rolfsii (Scr4 y Scr17). También, se determinó el tipo de interacción hifal de los mismos aislados de Trichoderma spp. y S. rolfsii (Scr4). Se evaluó el efecto de los metabolitos volátiles producidos por los aislados de Trichoderma spp. sobre la inhibición del crecimiento micelial de S. rolfsii (Scr4). Los datos sobre inhibición del crecimiento micelial se analizaron mediante análisis estadístico no paramétrico (Kruskal-Wallis) y la separación de medias se realizó mediante los procedimientos de Conover (1999) con (P ≤ 0.05).

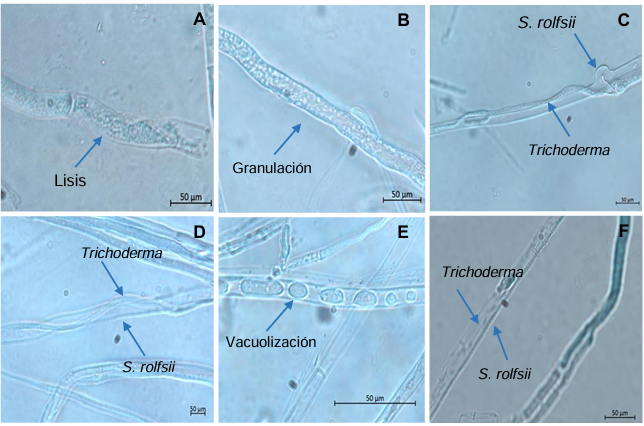
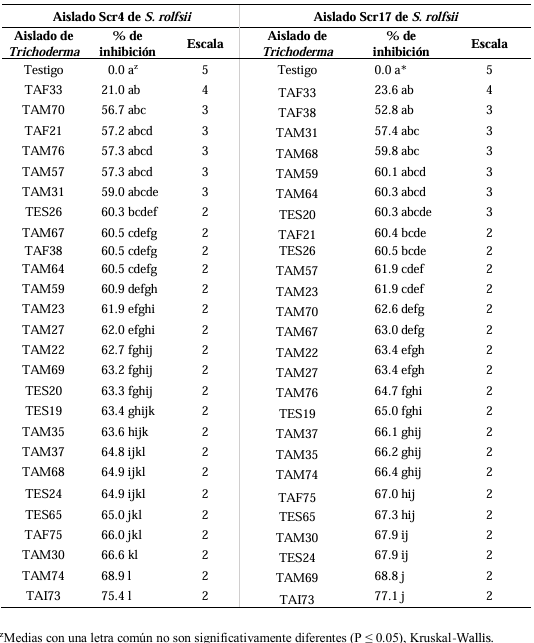
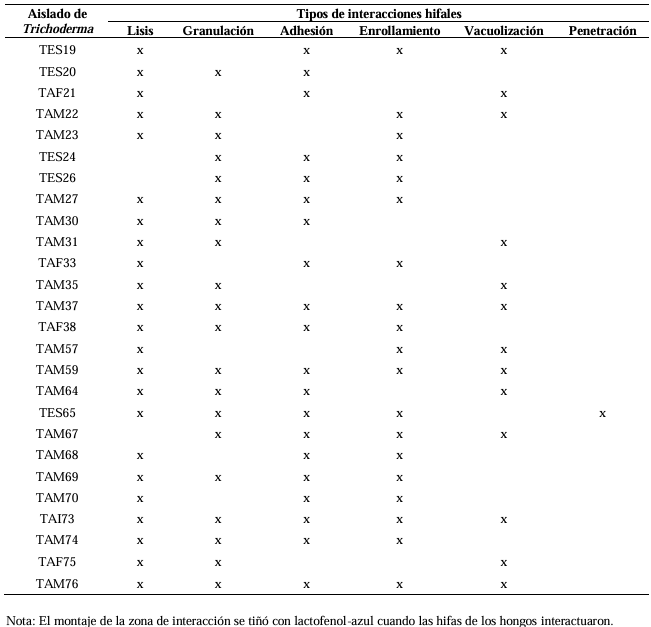
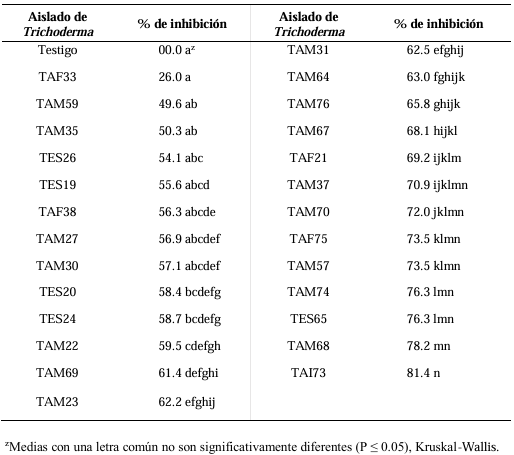
Resultados. En las confrontaciones duales, especies de Trichoderma mostraron inhibiciones en crecimiento micelial de 21.0 a 75.4 % y de 23.6 a 77.1 % en los aislados Scr4 y Scr17 de S. rolfsii, respectivamente. Las interacciones hifales de las mismas especies de Trichoderma, consistieron en vacuolización, granulación, enrollamiento, adhesión, lisis y penetración en el patógeno (Scr4); las cuatro especies de Trichoderma inhibieron el crecimiento micelial (26.0 a 81.4 %) de S. rolfsii. T. azevedoi destacó entre los aislados por mostrar mayor capacidad antagónica en todas las pruebas.

Conclusión. Los resultados indican que las especies de Trichoderma, en especial T. azevedoi (TAI73), inhibió el crecimiento de S. rolfsii Scr4 (75.4 %) y Scr17 (77.1 %). T. azevedoi (TAI73) causó vacuolización, granulación, enrollamiento, adhesión y lisis de las hifas en aislado Scr4.

Mostrar Figuras y/o Cuadros
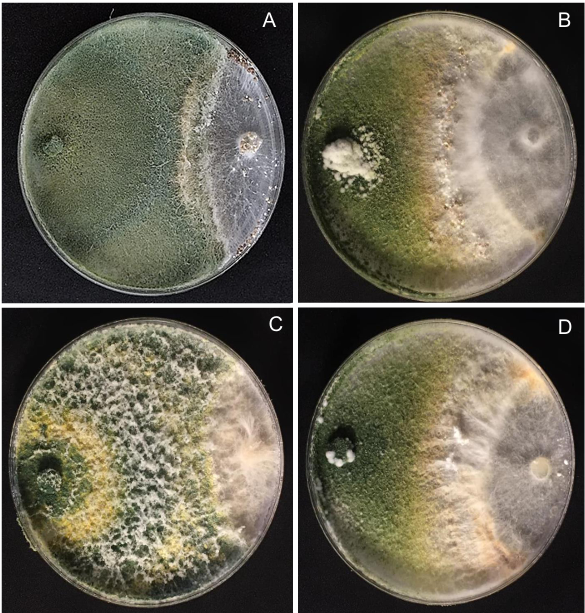
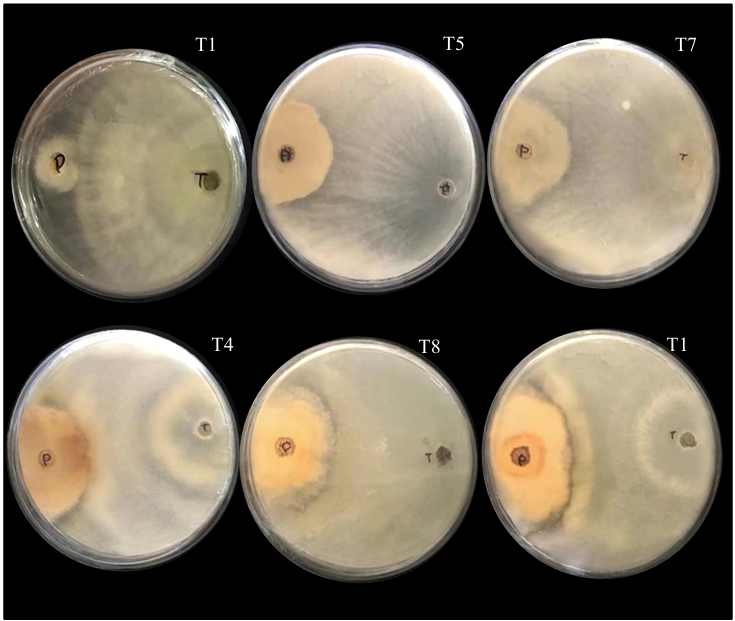
Figura 1. Antagonismo <em>in vitro</em> de <em>Trichoderma</em> spp. (izquierda) contra <em>S. rolfsii</em> (derecha). (A) Aislado de <em>Trichoderma</em> TAI73 contra <em>S. rolfsii</em> Scr4, (B) <em>Trichoderma</em> TAF33 contra <em>S. rolfsii</em> Scr4, (C) <em>Trichoderma</em> TES24 contra <em>S. rolfsii</em> Scr17 y (D) <em>Trichoderma</em> TAF33 contra <em>S. rolfsii</em> Scr17.
Figura 1. Antagonismo in vitro de Trichoderma spp. (izquierda) contra S. rolfsii (derecha). (A) Aislado de Trichoderma TAI73 contra S. rolfsii Scr4, (B) Trichoderma TAF33 contra S. rolfsii Scr4, (C) Trichoderma TES24 contra S. rolfsii Scr17 y (D) Trichoderma TAF33 contra S. rolfsii Scr17.
Figura 2. Interacciones hifales entre aislados de <em>Trichoderma</em> spp. y <em>Sclerotium rolfsii</em>. (A) Lisis (TAM67), (B) granulación (TES65), (C) adhesión (TAM69), (D) enrollamiento (TAM59), (E) vacuolización (TAM76) y (F) penetración (TES65).
Figura 2. Interacciones hifales entre aislados de Trichoderma spp. y Sclerotium rolfsii. (A) Lisis (TAM67), (B) granulación (TES65), (C) adhesión (TAM69), (D) enrollamiento (TAM59), (E) vacuolización (TAM76) y (F) penetración (TES65).
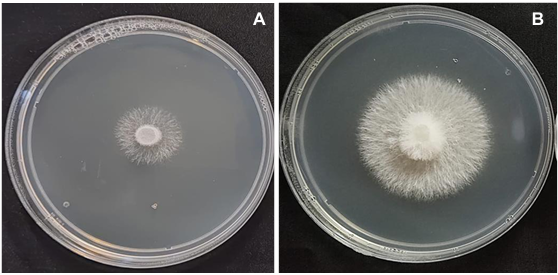
Figura 3. Efecto inhibitorio de metabolitos volátiles de <em>Trichoderma</em> spp. contra <em>Sclerotium rolfsii</em>. (A) Aislado de <em>Sclerotium rolfsii</em> (Scr4) expuesto a metabolitos volátiles de <em>Trichoderma</em> TAM68 y (B) <em>S. rolfsii</em> (Scr4) expuesto a metabolitos volátiles de <em>Trichoderma</em> TAM30.
Figura 3. Efecto inhibitorio de metabolitos volátiles de Trichoderma spp. contra Sclerotium rolfsii. (A) Aislado de Sclerotium rolfsii (Scr4) expuesto a metabolitos volátiles de Trichoderma TAM68 y (B) S. rolfsii (Scr4) expuesto a metabolitos volátiles de Trichoderma TAM30.
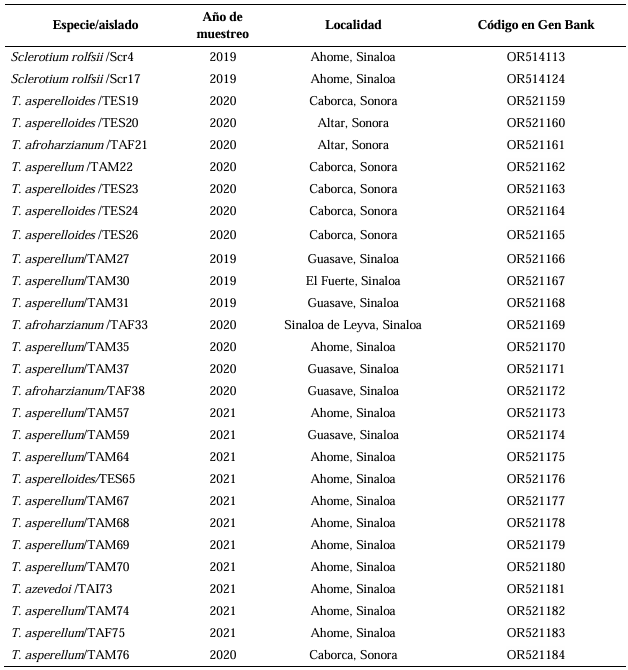
Cuadro 1. Origen e identificación de aislados de <em>Sclerotium rolfsii</em> y especies de <em>Trichoderma</em>.
Cuadro 1. Origen e identificación de aislados de Sclerotium rolfsii y especies de Trichoderma.
Cuadro 2. Antagonismo <em>in vitro</em> de 26 aislados de <em>Trichoderma</em> spp. contra dos aislados de <em>Sclerotium rolfsii</em>.
Cuadro 2. Antagonismo in vitro de 26 aislados de Trichoderma spp. contra dos aislados de Sclerotium rolfsii.
Cuadro 3. Interacción hifal <em>in vitro</em> de 26 aislados de <em>Trichoderma</em> spp. y <em>Sclerotium rolfsii</em> (Scr4).
Cuadro 3. Interacción hifal in vitro de 26 aislados de Trichoderma spp. y Sclerotium rolfsii (Scr4).
Cuadro 4. Efecto de metabolitos volátiles de aislados de <em>Trichoderma</em> contra <em>Sclerotium rolfsii</em> Scr4.
Cuadro 4. Efecto de metabolitos volátiles de aislados de Trichoderma contra Sclerotium rolfsii Scr4.
  • Vol. 2025, 43(2)
  • Artículo Científico

Sensibilidad in vitro de Sclerotium rolfsii y cuatro especies de Trichoderma, a fungicidas de uso común en el cultivo de papa (Solanum tuberosum)

PorGabriel Herrera Rodríguez, Gabriel Antonio Lugo García1, María Belén Irazoqui Acosta, José de Jesús Lara Flores, Sara Elodia Armenta López, Rubén Félix Gastélum*, Hugo Beltrán Peña, Guadalupe Arlene Mora Romero

Recibido: 30/mayo/2024 – Publicado: 14/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2405-12

Resumen Antecedentes/Objetivo. La pudrición blanda de tubérculos de papa, causada por Sclerotium rolfsii, es una enfermedad que se presenta en suelos con altos niveles de humedad y temperaturas superiores a los 30 °C. Para su control se usan principalmente fungicidas sintéticos. Los objetivos del presente trabajo fueron determinar la efectividad biológica de fungicidas sintéticos a diferentes concentraciones contra el hongo y la sensibilidad de cuatro especies de Trichoderma a fungicidas de uso común en papa en Sinaloa.

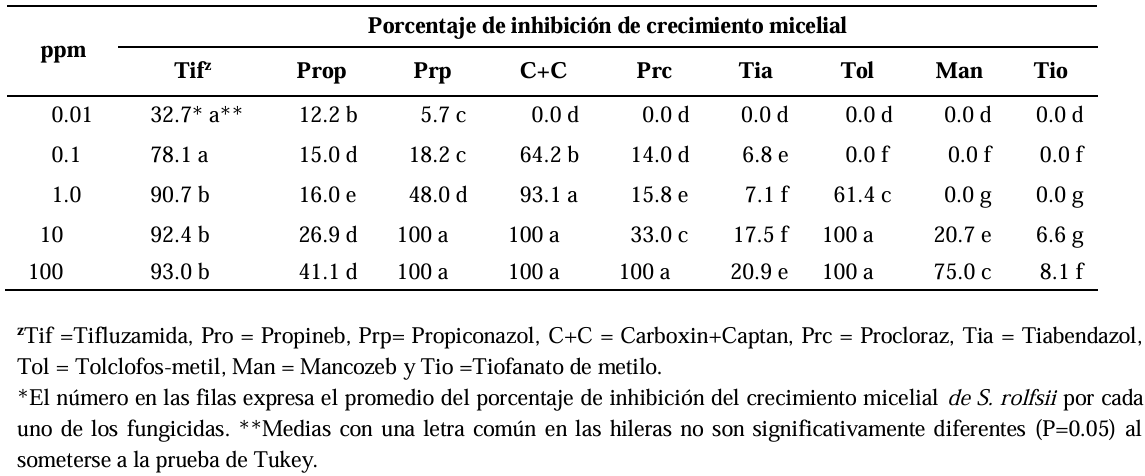
Materiales y Métodos. Se determinó la efectividad biológica in vitro de nueve fungicidas a las concentraciones de 0.01, 0.1, 1, 10 y 100 ppm contra el crecimiento micelial y formación de esclerocios de S. rolfsii; además, se determinó la sensibilidad in vitro de Trichoderma afroharzianum, T. asperelloides, T. asperellum y T. azevedoi a 10 fungicidas en las concentraciones de 100, 500, 1000 y 2000 ppm. Los experimentos se repitieron dos veces. Los tratamientos se distribuyeron en un arreglo completamente al azar cuyos datos se sometieron a ANOVA. La comparación de medias fue mediante la prueba de Tukey (p<0.05).

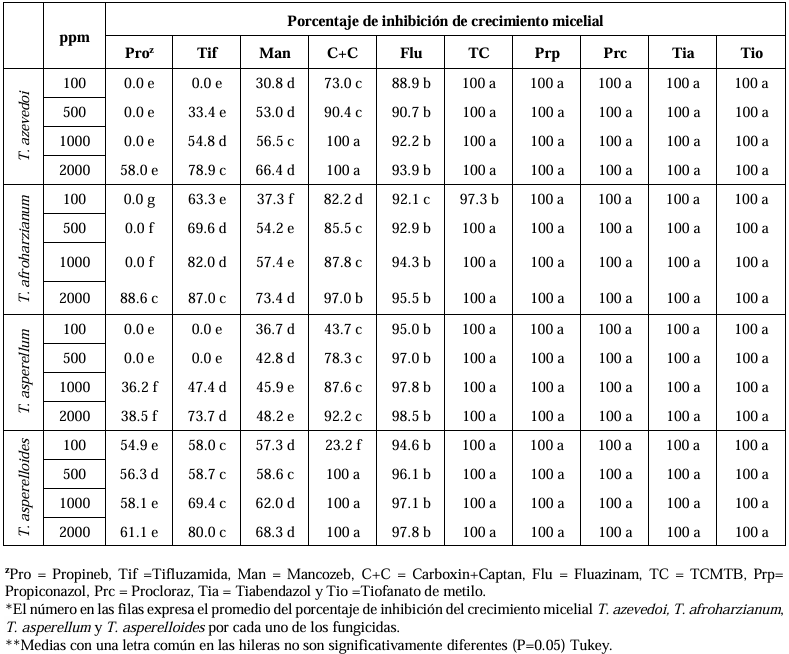
Resultados. Tifluzamida y Propineb a la concentración de 0.01 ppm inhibieron el crecimiento micelial de S. rolfsii en 32.7 y 12.2 %, en forma respectiva. Por otro lado, S. rolfsii produjo de 157, 164 y 164 esclerocios por caja de Petri en PDA adicionado con los fungicidas Tifluzamida, Propineb y procloraz, respectivamente a la misma concentración. En cambio, Propineb a la concentración de 100 ppm inhibió el crecimiento micelial de T. azevedoi, T. afroharzianum, T. asperellum y T. asperelloides de 0, 0, 0 y 54.9 %, en forma respectiva; mientras que la inhibición de crecimiento micelial por Tifluzamida a la misma concentración en T. azevedoi, T. afroharzianum, T. asperellum y T. asperelloides varió de 0 a 63 %. Los resultados indican que las cuatro especies de Trichoderma son compatibles a ambos fungicidas.

Conclusión. El efecto de Tifluzamida y Propineb en la inhibición del crecimiento micelial y la formación de esclerocios de S. rolfsii, así como la compatibilidad con las cuatro especies de Trichoderma con estos fungicidas, indica que la mezcla de Trichoderma spp. + los fungicidas, muestra un uso potencial para el control de la pudrición blanda del tubérculo de papa en campo.

Mostrar Figuras y/o Cuadros
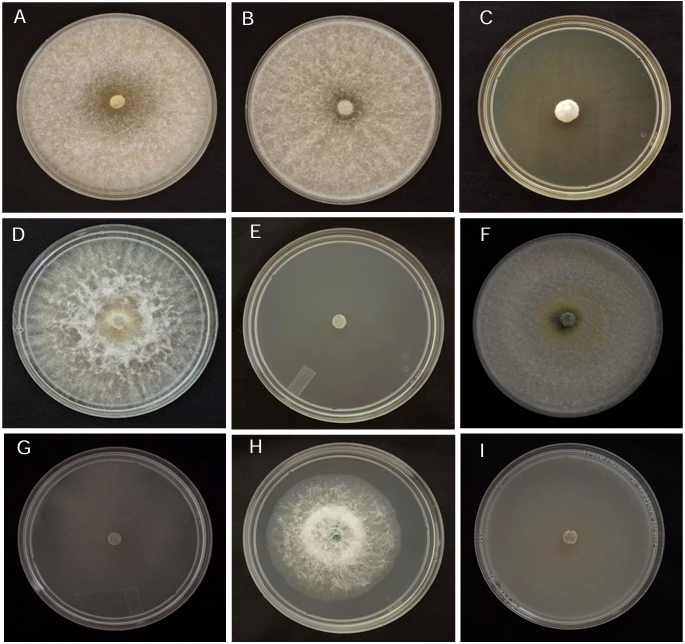
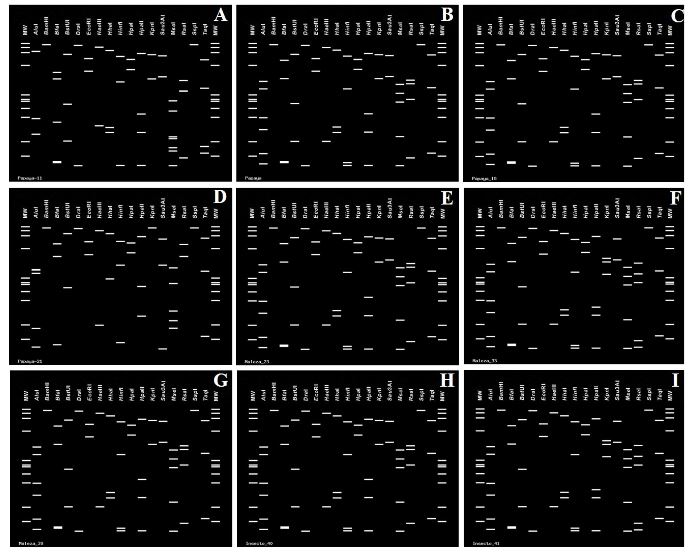
Figura 1. Inhibición del crecimiento micelial de cuatro especies de <em>Trichoderma</em> en PDA adicionado con fungicidas sintéticos. A) <em>T. azevedoi</em>+Propineb 100 ppm; B) <em>T. azevedoi</em>+Tifluzamida 100 ppm; C) <em>T. azevedoi</em>+Fluazinam 100 ppm; D) <em>T. afroharzianum</em>+Propineb 100 ppm; E)<em> T. afroharzianu</em>m+Propiconazol 100 ppm; F) <em>T. asperellum</em>+Propineb 100 ppm; G) <em>T. asperellum</em>+Tiabendazol 100 ppm; H) <em>T. asperelloides</em>+Tifluzamida 100 ppm; I) <em>T. asperelloides</em>+TCMTB 100 ppm.
Figura 1. Inhibición del crecimiento micelial de cuatro especies de Trichoderma en PDA adicionado con fungicidas sintéticos. A) T. azevedoi+Propineb 100 ppm; B) T. azevedoi+Tifluzamida 100 ppm; C) T. azevedoi+Fluazinam 100 ppm; D) T. afroharzianum+Propineb 100 ppm; E) T. afroharzianum+Propiconazol 100 ppm; F) T. asperellum+Propineb 100 ppm; G) T. asperellum+Tiabendazol 100 ppm; H) T. asperelloides+Tifluzamida 100 ppm; I) T. asperelloides+TCMTB 100 ppm.
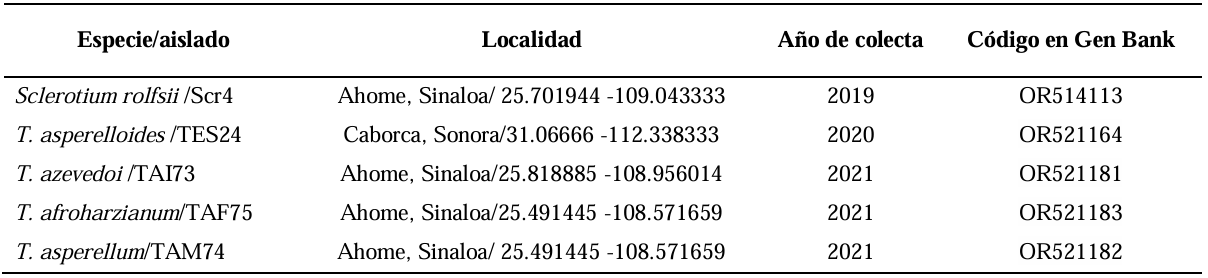
Cuadro 1. Especies y aislados de <em>Sclerotium rolfsii</em> y <em>Trichoderma</em>, sitio y año de colecta y código en el Gen Bank.
Cuadro 1. Especies y aislados de Sclerotium rolfsii y Trichoderma, sitio y año de colecta y código en el Gen Bank.
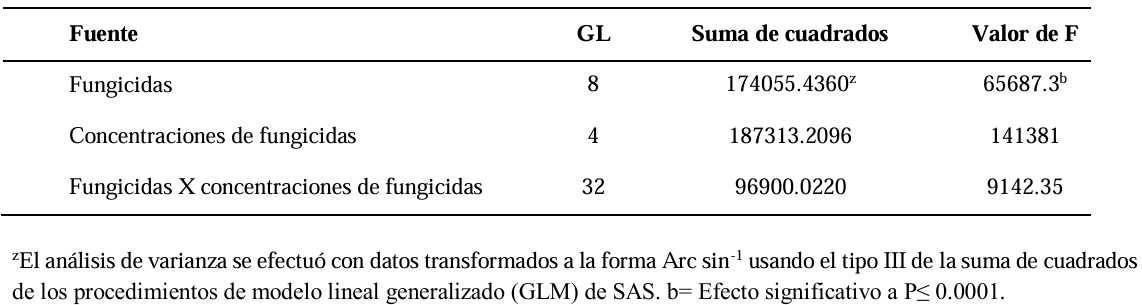
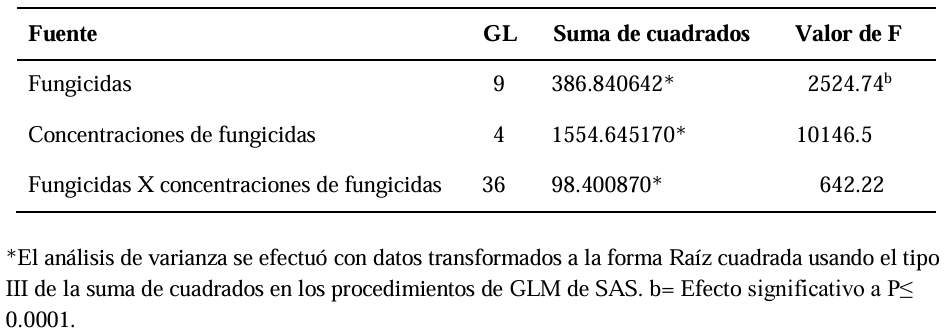
Cuadro 2. Análisis de varianza factorial del porcentaje de inhibición <em>in vitro</em> del crecimiento micelial de <em>S. rolfsii</em> a cuatro concentraciones de nueve fungicidas.
Cuadro 2. Análisis de varianza factorial del porcentaje de inhibición in vitro del crecimiento micelial de S. rolfsii a cuatro concentraciones de nueve fungicidas.
Cuadro 3. Porcentaje de inhibición promedio <em>in vitro</em> del crecimiento radial de <em>Sclerotium rolfsii</em>, causado por varios fungicidas sintéticos.
Cuadro 3. Porcentaje de inhibición promedio in vitro del crecimiento radial de Sclerotium rolfsii, causado por varios fungicidas sintéticos.
Cuadro 4. Análisis de varianza factorial de producción de esclerocios por <em>S. rolfsii</em> en PDA con cinco concentraciones de nueve fungicidas.
Cuadro 4. Análisis de varianza factorial de producción de esclerocios por S. rolfsii en PDA con cinco concentraciones de nueve fungicidas.
Cuadro 5. Producción de esclerocios de <em>Sclerotium rolfsii</em> por caja Petri con PDA adicionado con las diferentes concentraciones de nueve fungicidas.
Cuadro 5. Producción de esclerocios de Sclerotium rolfsii por caja Petri con PDA adicionado con las diferentes concentraciones de nueve fungicidas.
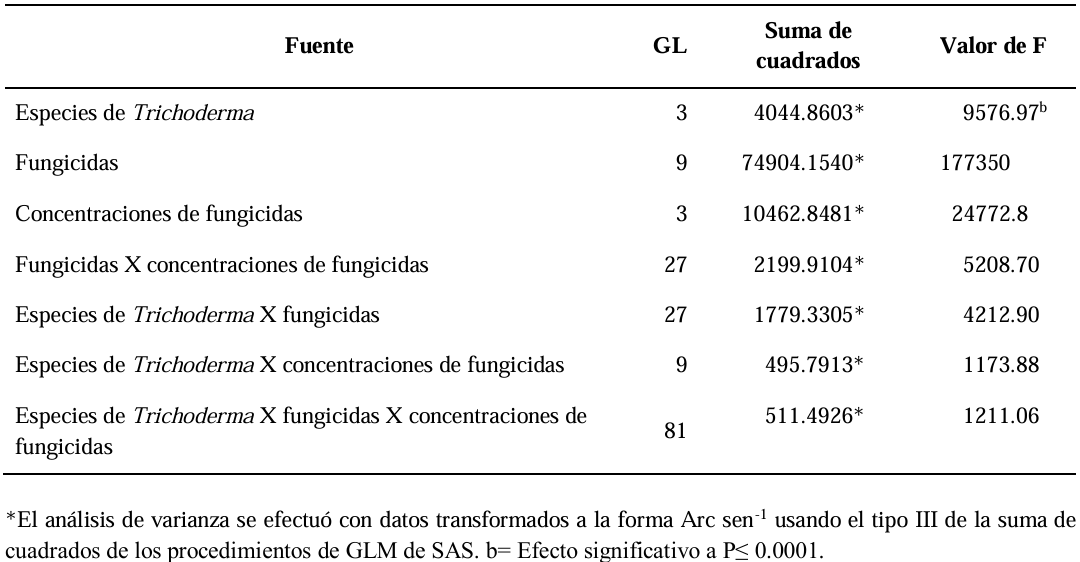
Cuadro 6. Análisis de varianza factorial del porcentaje de inhibición <em>in vitro</em> del crecimiento micelial de cuatro especies de <em>Trichoderma</em> por cuatro concentraciones de diez fungicidas.
Cuadro 6. Análisis de varianza factorial del porcentaje de inhibición in vitro del crecimiento micelial de cuatro especies de Trichoderma por cuatro concentraciones de diez fungicidas.
Cuadro 7. Porcentaje de inhibición promedio <em>in vitro</em> del crecimiento radial de cuatro especies de <em>Trichoderma</em>, causado por varios fungicidas sintéticos.
Cuadro 7. Porcentaje de inhibición promedio in vitro del crecimiento radial de cuatro especies de Trichoderma, causado por varios fungicidas sintéticos.
  • Vol. 2025, 43(2)
  • Artículo Científico

Resistencia de variedades de triticale (x Triticosecale) a Fusarium spp.

PorGloria Sánches Jiménez, Santos Gerardo Leyva Mir, Mateo Vargas Hernández, María Florencia Rodríguez García*, Héctor Eduardo Villaseñor Mir

Recibido: 24/noviembre/2024 – Publicado: 14/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2305-3

Resumen Antecedentes/Objetivo. El tizón de la espiga causado principalmente por especies de Fusarium spp., es una enfermedad que afecta el rendimiento y calidad del grano de cereales. El objetivo fue evaluar la resistencia en planta adulta de siete variedades de triticale a Fusarium boothii, F. camptoceras y F. graminearum.

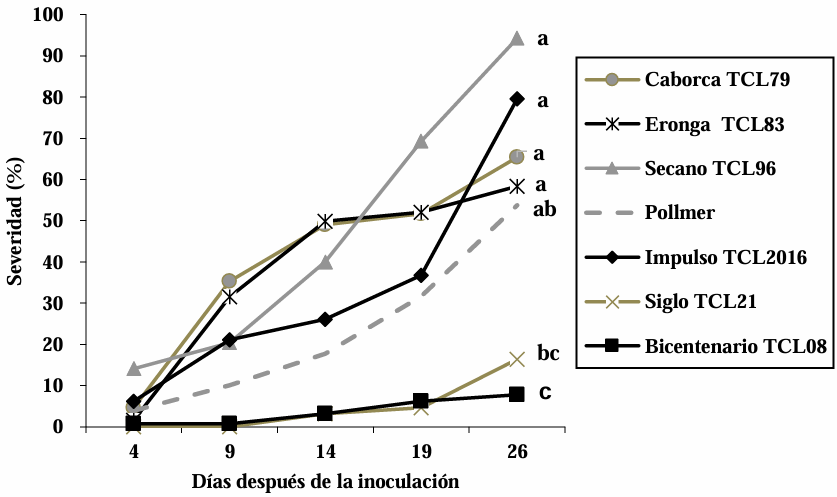
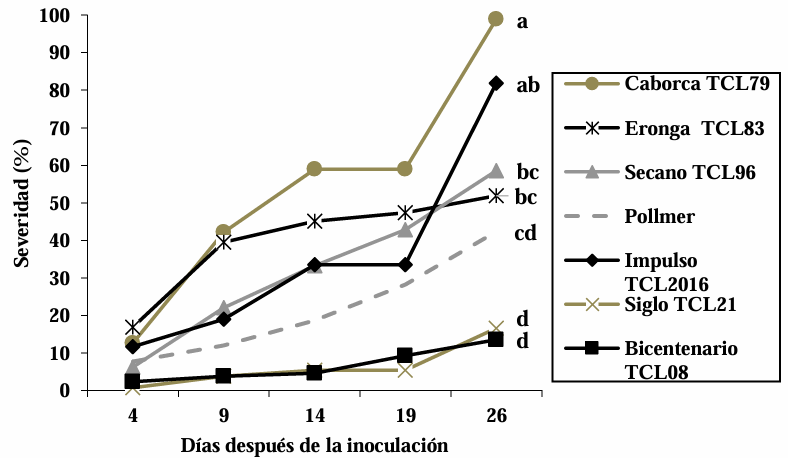
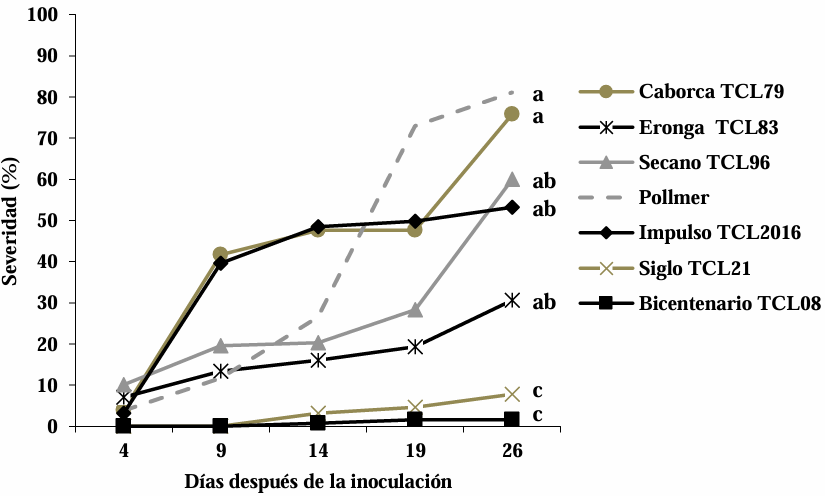
Materiales y Métodos. Se estableció un experimento bajo condiciones de invernadero en el INIFAP-CEVAMEX. Las pruebas de patogenicidad se realizaron durante la etapa de floración, por medio de inoculación puntual mediante el método del algodón. Se evaluó la severidad de la enfermedad en las espigas a los 4, 9, 14, 19 y 26 días después de la inoculación.

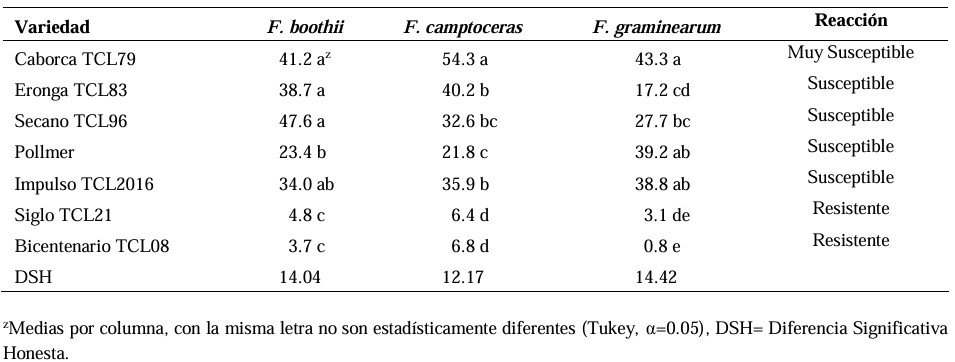
Resultados. El análisis de varianza mostró diferencias significativas (p≤0.01) entre variedades donde se observó una variación en la resistencia. Las variedades Siglo TCL21 (3.1 a 6.4 %) y Bicentenario TCL08 (0.8 a 6.8 %) presentaron las menores severidades y fueron resistentes a las tres especies de Fusarium, mientras que Secano TCL96 fue la variedad más susceptible a F. boothii presentando 47.6 % de severidad; para F. camptoceras y F. graminearum la variedad más susceptible fue Caborca TCL79 con un porcentaje de severidad de 54.3 y 43.3 % respectivamente. El peso de grano por espiga se vio afectado hasta en un 90 % en variedades susceptibles.

Conclusión. Es importante considerar en los programas de mejoramiento genético de triticale la incorporación de resistencia a diversas especies de Fusarium, sobresaliendo en el presente estudio Siglo TCL21 y Bicentenario TCL08.

Mostrar Figuras y/o Cuadros
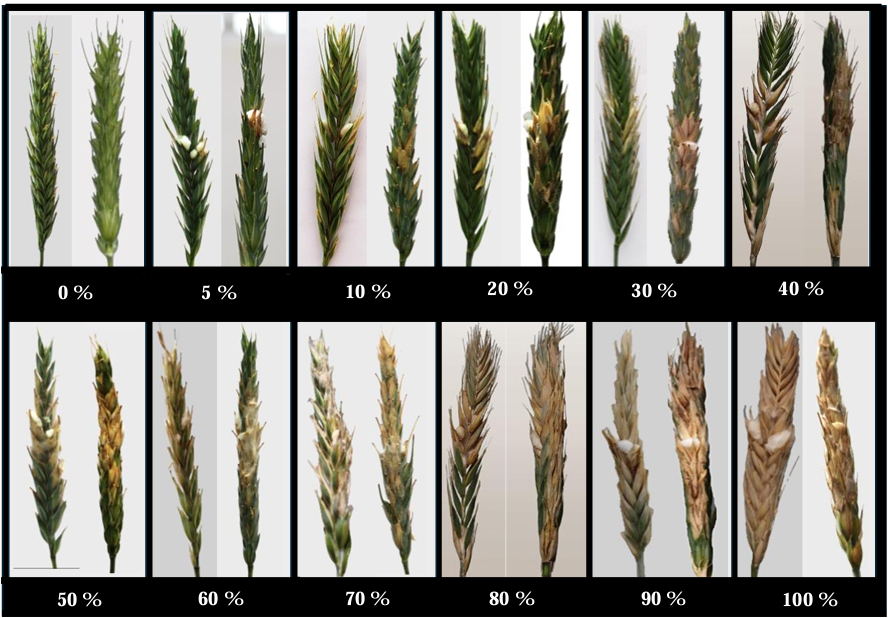
Figura 1. Escala visual para determinar el porcentaje de severidad del tizón en la espiga de triticale, bajo condiciones de invernadero.
Figura 2. Comportamiento de las variedades inoculadas con <em>F. boothii</em> durante las cinco evaluaciones.
Figura 2. Comportamiento de las variedades inoculadas con F. boothii durante las cinco evaluaciones.
Figura 3. Comportamiento de las variedades inoculadas con <em>F. camptoceras</em> durante las cinco evaluaciones.
Figura 3. Comportamiento de las variedades inoculadas con F. camptoceras durante las cinco evaluaciones.
Figura 4. Comportamiento de las variedades inoculadas con <em>F. graminearum</em> durante las cinco evaluaciones.
Figura 4. Comportamiento de las variedades inoculadas con F. graminearum durante las cinco evaluaciones.
Cuadro 1. Comparaciones de medias del promedio de severidad (%) de cada variedad de triticale, en el análisis combinado a través de las cinco evaluaciones de cada especie de <em>Fusarium</em>.
Cuadro 1. Comparaciones de medias del promedio de severidad (%) de cada variedad de triticale, en el análisis combinado a través de las cinco evaluaciones de cada especie de Fusarium.
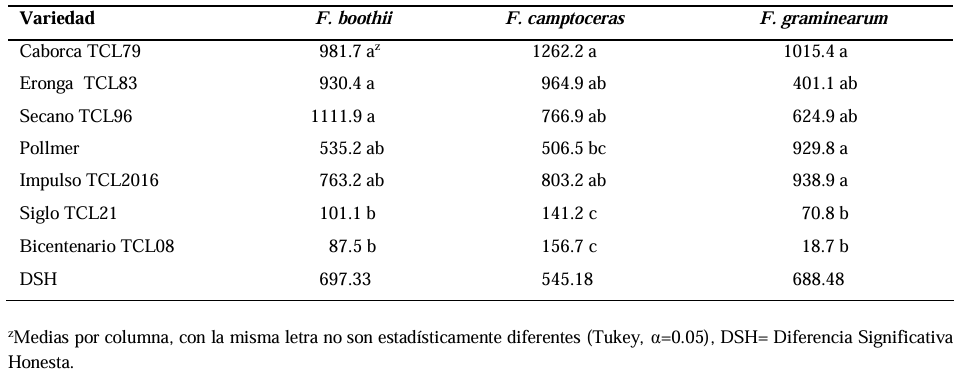
Cuadro 2. Comparaciones de medias del Área Bajo la Curva del Progreso de la Enfermedad (ABCPE) de cada variedad de triticale, en el análisis combinado a través de las cinco evaluaciones de cada especie del <em>Fusarium</em>.
Cuadro 2. Comparaciones de medias del Área Bajo la Curva del Progreso de la Enfermedad (ABCPE) de cada variedad de triticale, en el análisis combinado a través de las cinco evaluaciones de cada especie del Fusarium.
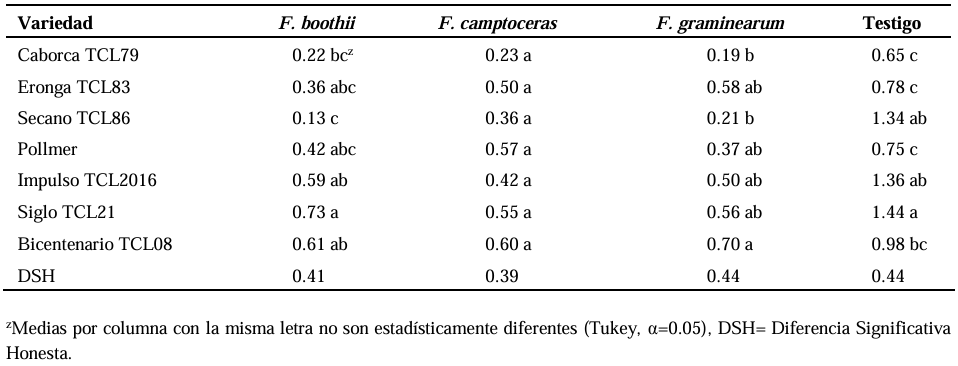
Cuadro 3. Comparaciones de medias del peso de grano (gramos) por espiga de cada variedad de triticale en las cinco evaluaciones.
  • Vol. 2025, 43(4)
  • Nota Fitopatológica
  • Número Especial

Efectividad de fungicidas biológicos y químicos para el control de enfermedades de la cebada (Hordeum vulgare)

PorMaría Florencia Rodríguez García, Miguel González González*, Andrés Mandujano Bueno

Recibido: 20/noviembre/2024 – Publicado: 05/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-13

Resumen Antecedentes/Objetivo. En el cultivo de cebada en México las enfermedades ocasionan pérdidas económicas; el control químico ha sido la forma más eficaz para mitigar sus efectos; sin embargo, es necesario explorar otras estrategias de control amigables con el ambiente. El objetivo fue comparar bajo condiciones de campo, la efectividad de fungicidas biológicos y un químico para el control de los patógenos que causan principales enfermedades de cebada.

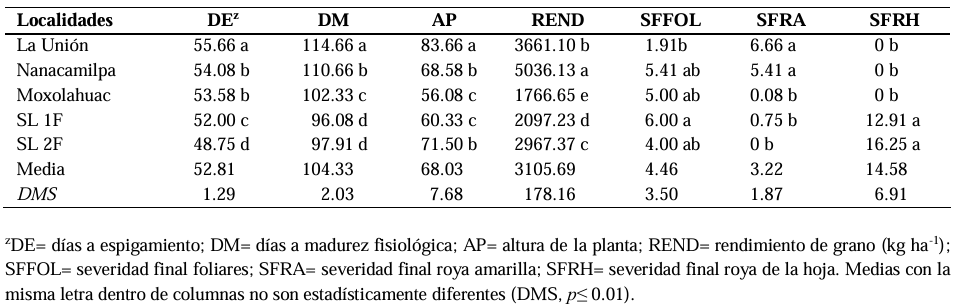
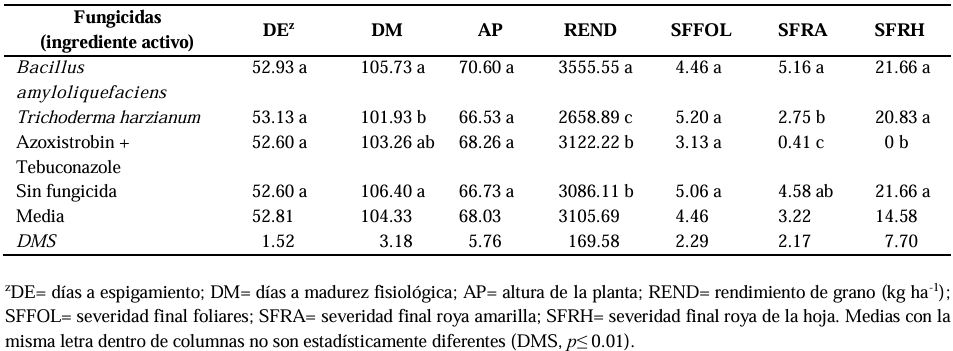
Materiales y Métodos. En primavera-verano 2022, se establecieron cinco experimentos en diferentes ambientes. El diseño fue bloques completos al azar con tres repeticiones. Esmeralda fue la variedad utilizada. Se evaluaron dos fungicidas biológicos (SERENADE® OPTI y Trichoderma Sub) y un químico (Azimut® 320 SC). Se aplicaron tres veces. Las enfermedades se presentaron de forma natural. Las variables que se midieron fueron: días a espigamiento (DE), días a madurez fisiológica (DM), altura de la planta (AP), rendimiento de grano (REND), severidad final: foliares (SFFOL), roya amarilla (SFRA), roya de la hoja (SFRH).

Resultados. El análisis de varianza mostró variación significativa para REND, SFRA y SFRH (p≤0.01). En REND el mejor fungicida biológico fue SERENADE® OPTI con rendimiento de 3 555 kg ha-1, en comparación con el testigo (3 086 kg ha-1). Para SFRA y SFRH el más eficaz fue Azimut® 320, seguido de Trichoderma Sub.

Conclusión. La eficacia del producto químico para enfermedades foliares fue del 38 %, roya amarilla un 91 % y roya de la hoja 100 %. El control químico sigue siendo el más efectivo para el control de los patógenos causantes de enfermedades de la cebada.

Mostrar Figuras y/o Cuadros
Cuadro 1. Comportamiento promedio para las variables DE, DM, AP, REND, SFFOL, SFRA y SFRH en cebada, evaluadas en cinco ambientes de temporal.
Cuadro 2. Efecto promedio de dos productos biológicos y un químico en las variables agronómicas, rendimiento y severidad de enfermedades de cebada.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Sensibilidad de Colletotrichum truncatum aislado de plantas de Echeveria gibbiflora a diferentes biofungicidas

PorJosé Terrones Salgado*, Carlos David Carretillo Moctezuma, José Francisco Díaz Nájera, Sergio Ayvar Serna, José Luis Arispe Vázquez, César Flores de los Ángeles, Nicolás Álvarez Acevedo

Recibido: 15/noviembre/2024 – Publicado: 02/abril/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-16

Resumen Antecedentes/Objetivo. Colletotrichum truncatum es un hongo fitopatógeno que induce la enfermedad de antracnosis en hojas de Echeveria gibbiflora (tememetla), una especie nativa de México de gran valor ornamental. El objetivo fue evaluar la sensibilidad de C. truncatum aislado de plantas E. gibbiflora a 11 biofungicidas, como una alternativa para el manejo integrado de la enfermedad.

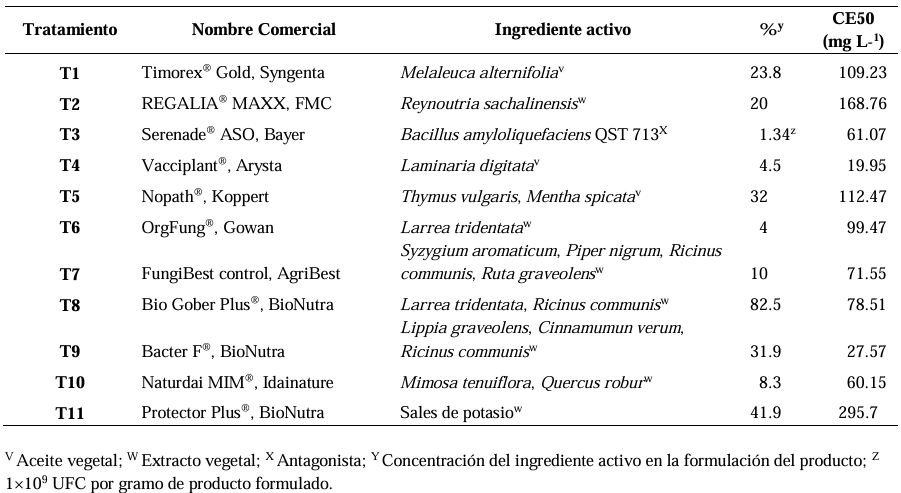
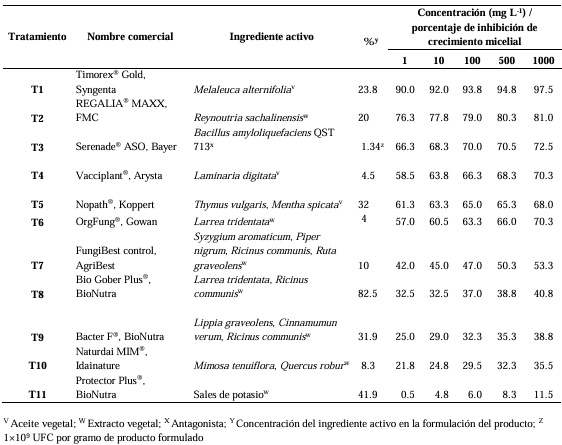
Materiales y Métodos. Mediante pruebas de sensibilidad, se determinó el porcentaje de inhibición del crecimiento del hongo en medio PDA modificado con cada biofungicida en concentraciones de 0, 1, 10, 100, 500 y 1000 mg L-1. Se utilizó un diseño completamente aleatorizado en arreglo factorial 11 × 6 (11 biofungicidas × seis concentraciones) y cuatro repeticiones. Se determinó la concentración efectiva para 50 % de inhibición (CE50) mediante regresión logística.

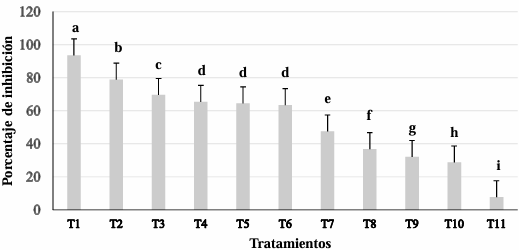
Resultados. C. truncatum aislado de E. gibbiflora fue más sensible al aceite de Melaleuca alternifolia (CE50 = 109.23 mg L-1), extracto de Reynoutria sachalinensis (CE50 = 168.76 mg L-1) y Bacillus amyloliquefaciens QST 713 (CE50=61.07 mg L-1) en condiciones in vitro. El aceite de Laminaria digitata (CE50 = 19.95 mg L-1), aceites esenciales de Thymus vulgaris y Mentha spicata (CE50 = 112.47 mg L-1) y el extracto de Larrea tridentata y Ricinus communis (CE50 = 78.51 mg L-1) inhibieron más de 50 % el crecimiento del hongo.

Conclusión. El aceite de L. digitata, aceites esenciales de T. vulgaris y M. spicata y el extracto de L. tridentata y R. communis tienen efecto inhibitorio en el crecimiento del hongo superior a 50 % Estos resultados contribuyen al conocimiento sobre el manejo integrado del C. truncatum causante de antracnosis en hoja de E. gibbiflora con la aplicación de biofungicidas.

Mostrar Figuras y/o Cuadros
Figura 1. Concentración respuesta y CE<sub>50</sub> de 11 biofungicidas contra <em>C. truncatum</em> aislado de <em>E. gibbiflora</em>. A) aceite de <em>M. alternifolia</em>; B) extracto de <em>R. sachalinensis</em>; C) <em>B. amyloliquefaciens</em> QST 713; D) aceite de <em>L. digitata</em>; E) aceites esenciales de <em>T. vulgaris</em> y <em>M. spicata</em>; F) extractos de <em>L. tridentata</em> y <em>R. communis</em>; G) cinamaldehído, extractos de <em>S. aromaticum</em>, <em>P. nigrum</em>, <em>R. communis</em> y <em>R. graveolens</em>; H) extracto de <em>L. tridentata</em>; I) extractos de <em>L. graveolens</em>, <em>C. verum</em> y <em>R. communis</em>; J) extracto de <em>M. tenuiflora</em> y <em>Q. robur</em>; K) sales de potasio ricas en ácidos grasos.
Figura 1. Concentración respuesta y CE50 de 11 biofungicidas contra C. truncatum aislado de E. gibbiflora. A) aceite de M. alternifolia; B) extracto de R. sachalinensis; C) B. amyloliquefaciens QST 713; D) aceite de L. digitata; E) aceites esenciales de T. vulgaris y M. spicata; F) extractos de L. tridentata y R. communis; G) cinamaldehído, extractos de S. aromaticum, P. nigrum, R. communis y R. graveolens; H) extracto de L. tridentata; I) extractos de L. graveolens, C. verum y R. communis; J) extracto de M. tenuiflora y Q. robur; K) sales de potasio ricas en ácidos grasos.
Figura 2. Porcentaje de inhibición del crecimiento micelial de <em>C. truncatum</em> aislado de <em>E. gibbiflora</em>, evaluado con 11 biofungicidas <em>in vitro</em>. Los valores medios seguidos por las mismas letras, son estadísticamente similares (Tukey α = 0.05) según la prueba de diferencia significativa honesta de Tukey. T1= aceite de <em>M. alternifolia</em>; T2= extracto de <em>R. sachalinensis</em>; T3= <em>B. amyloliquefaciens</em> QST 713; T4= aceite de <em>L. digitata</em>; T5= aceites esenciales de <em>T. vulgaris</em> y <em>M. spicata</em>; T6= extracto de <em>L. tridentata</em>; T7= cinamaldehído, extractos de <em>S. aromaticum</em>, <em>P. nigrum</em>, <em>R. communis</em> y <em>R. graveolens</em>; T8= extractos de <em>L. tridentata</em> y <em>R. communis</em>; T9= extractos de <em>L. graveolens</em>, <em>C. verum</em> y <em>R. communis</em>; T10= extracto de <em>M. tenuiflora</em> y <em>Q. robur</em>; y T11= sales de potasio ricas en ácidos grasos.
Figura 2. Porcentaje de inhibición del crecimiento micelial de C. truncatum aislado de E. gibbiflora, evaluado con 11 biofungicidas in vitro. Los valores medios seguidos por las mismas letras, son estadísticamente similares (Tukey α = 0.05) según la prueba de diferencia significativa honesta de Tukey. T1= aceite de M. alternifolia; T2= extracto de R. sachalinensis; T3= B. amyloliquefaciens QST 713; T4= aceite de L. digitata; T5= aceites esenciales de T. vulgaris y M. spicata; T6= extracto de L. tridentata; T7= cinamaldehído, extractos de S. aromaticum, P. nigrum, R. communis y R. graveolens; T8= extractos de L. tridentata y R. communis; T9= extractos de L. graveolens, C. verum y R. communis; T10= extracto de M. tenuiflora y Q. robur; y T11= sales de potasio ricas en ácidos grasos.
Cuadro 1. Efecto de diferentes biofungicidas en la sensibilidad de <em>C. truncatum</em> aislado de <em>E. gibbiflora</em>.
Cuadro 1. Efecto de diferentes biofungicidas en la sensibilidad de C. truncatum aislado de E. gibbiflora.
Cuadro 2. Efecto de diferentes biofungicidas en el porcentaje de inhibición de crecimiento micelial de <em>C. truncatum</em> aislado <br />de <em>E. gibbiflora</em>.
Cuadro 2. Efecto de diferentes biofungicidas en el porcentaje de inhibición de crecimiento micelial de C. truncatum aislado
de E. gibbiflora.
  • Vol. 2025, 43(2)
  • Artículo Científico

Inhibición del crecimiento de Colletotrichum causante de antracnosis de café (Coffea arabica) por cepas nativas de Trichoderma

PorAbimael Rubio Sosa, Misael Martínez Bolaños, Juan Florencio Gómez Leyva, Salvador Lozano Trejo*, Ernesto Castañeda Hidalgo, Gustavo Omar Diaz Zorrilla

Recibido: 30/agosto/2024 – Publicado: 26/marzo/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2307-1

Resumen Antecedentes/Objetivo. El objetivo del estudio fue aislar y caracterizar cepas nativas de Trichoderma provenientes de cultivos orgánicos de café arábica (Coffea arabica) en el estado de Oaxaca, así como evaluar su potencial de biocontrol in vitro contra Colletotrichum spp., agente causal de la antracnosis.

Materiales y Métodos. Se colectaron muestras de suelo y material vegetativo de parcelas de plantas de café, a partir de las cuales se aislaron cepas de hongos correspondientes al género Trichoderma y Colletotrichum. Se realizó la caracterización macroscópica, microscópica y se evaluó la tasa de crecimiento de cada uno de los aislamientos. Finalmente se realizó la caracterización molecular mediante secuenciación de la región ITS de RNAr. Para evaluar el potencial de biocontrol se hicieron pruebas de antagonismo entre las cepas de los dos géneros.

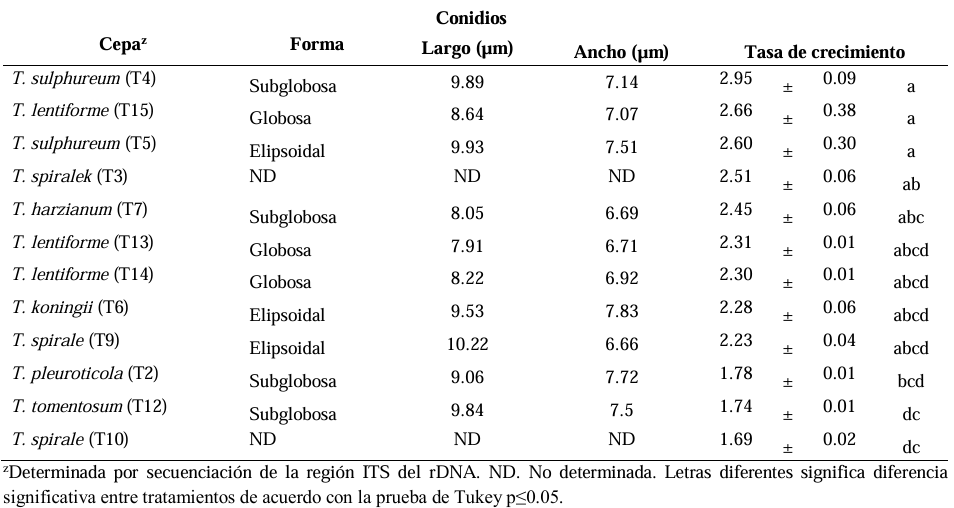
Resultados. Se identificaron siete especies diferentes: T. harzianum, T. pleuroticola, T. sulphureum, T. tomentosum, T. koningii, T. spirale y T. lentiforme. Estos últimos fueron los más abundantes. De ellos, se seleccionó y evaluó a T. lentiforme en su capacidad de inhibición in vitro contra tres especies de Colletotrichum. Se observó que es capaz de inhibir entre 20 y 80% el crecimiento del hongo.

Conclusión. Se destaca el potencial de Trichoderma como biocontrolador sobre Colletotrichum actuando de diferentes maneras ante este fitopatógeno. Esto, aporta al conocimiento sobre la diversidad de Trichoderma nativos de la región cafetalera del estado de Oaxaca. Además, esta comprensión más profunda, contribuye a enriquecer el conocimiento y a elegir dichas especies para futuros estudios en el biocontrol de fitopatógenos, con el fin de promover prácticas agrícolas sostenibles.

Mostrar Figuras y/o Cuadros
Figura 1. Caracterización macroscópica de 12 aislamientos de <em>Trichoderma</em> en PDA.
Figura 1. Caracterización macroscópica de 12 aislamientos de Trichoderma en PDA.
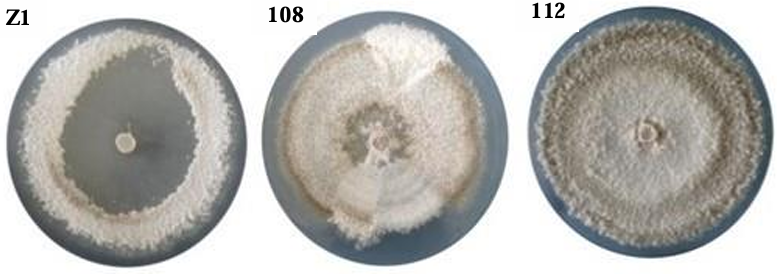
Figura 2. Caracterización macroscópica de tres aislamientos de <em>Colletotrichum</em> en PDA.
Figura 2. Caracterización macroscópica de tres aislamientos de Colletotrichum en PDA.
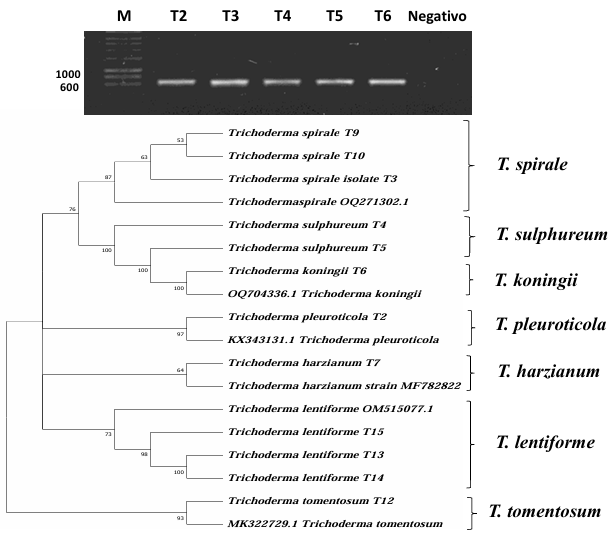
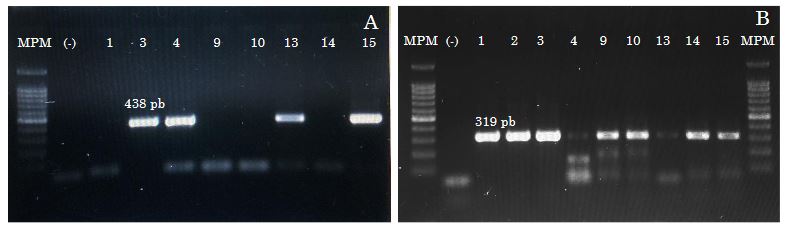
Figura 3. <strong>Árbol filogenético</strong>. A) Productos de amplificación por PCR de la región ITS del ADNr con los oligonucleotidos universales ITS1 e ITS4 de aproximadamente 620 pb. B) Relación filogenética de 12 aislamientos de <em>Trichoderma</em> inferido por análisis de secuencias de ADNr (ITS1, 58S y ITS2). Los números en los nodos representan el porcentaje del bootstrapping con 1,000 repeticiones.
Figura 3. Árbol filogenético. A) Productos de amplificación por PCR de la región ITS del ADNr con los oligonucleotidos universales ITS1 e ITS4 de aproximadamente 620 pb. B) Relación filogenética de 12 aislamientos de Trichoderma inferido por análisis de secuencias de ADNr (ITS1, 58S y ITS2). Los números en los nodos representan el porcentaje del bootstrapping con 1,000 repeticiones.
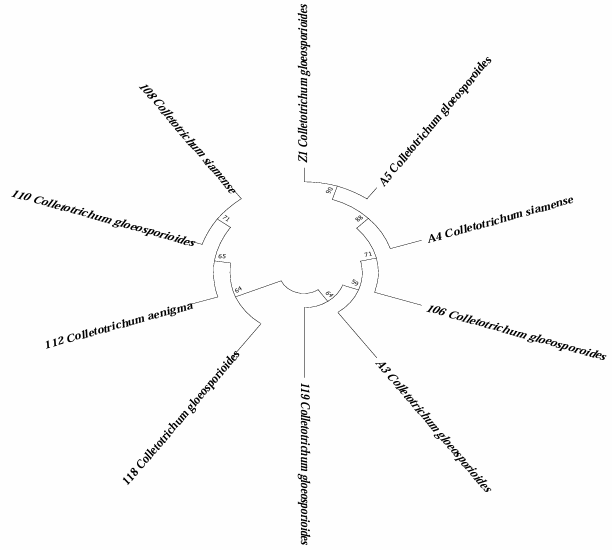
Figura 4. Dendrograma de relación filogenética de 10 aislamientos de <em>Colletotrichum</em>.
Figura 4. Dendrograma de relación filogenética de 10 aislamientos de Colletotrichum.
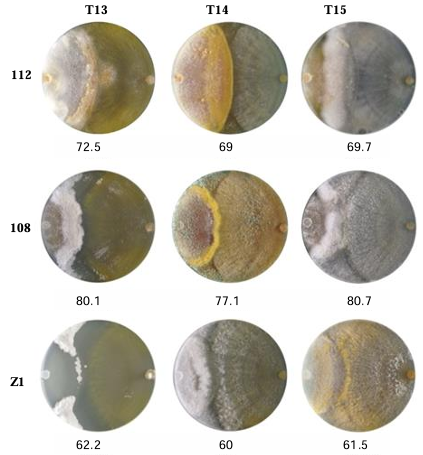
Figura 5. Confrontación dual entre cepas de <em>Trichoderma</em> spp. (T13, T14 y T15) y cepas de <em>Colletotrichum</em> spp. (Z1, 108 y 112). Números debajo de los aislamientos representa el PICR (porcentaje de inhibición de crecimiento radial).
Figura 5. Confrontación dual entre cepas de Trichoderma spp. (T13, T14 y T15) y cepas de Colletotrichum spp. (Z1, 108 y 112). Números debajo de los aislamientos representa el PICR (porcentaje de inhibición de crecimiento radial).
Cuadro 1. Caracterización y tasa de crecimiento de los diferentes aislamientos de <em>Trichoderma</em> spp.
Cuadro 1. Caracterización y tasa de crecimiento de los diferentes aislamientos de Trichoderma spp.
  • Vol. 2025, 43(2)
  • Artículo Científico

Resistencia a Phytophthora capsici de chile manzano injertado en CM-334, cultivado en suelo infestado, con aplicaciones de auxinas y Trichoderma Harzianum

PorTabita Queren Pérez Reyes, Santos Gerardo Leyva Mir, Mario Pérez Grajales*, María Teresa Martínez Damián, Rogelio Castro Brindis

Recibido: 30/agosto/2024 – Publicado: 08/marzo/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2408-5

Resumen Antecedentes/Objetivo. Phytophthora capsici ocasiona pérdidas hasta de 100 % en Capsicum pubescens y no existen variedades comerciales resistentes. Una alternativa viable y sustentable es emplear el portainjerto CM-334 (Capsicum annuum) resistente universal a Phytophthora capsici.

Materiales y Métodos. Se estudió el comportamiento de la biomasa radical del CM-334 al injertarse los híbridos ‘Maruca’, ‘Jhos’ y ‘Dali’ de chile manzano; la resistencia del injerto a P. capsici en suelo infestado y su rendimiento (híbrido ‘Dali’), así como la biomasa radical del CM-334 con aplicaciones de auxinas y T. harzianum.

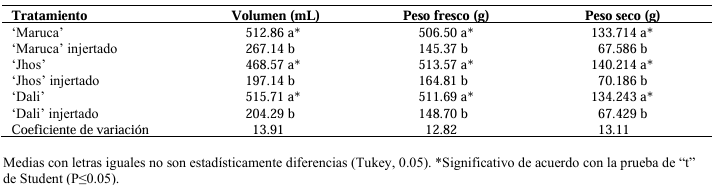
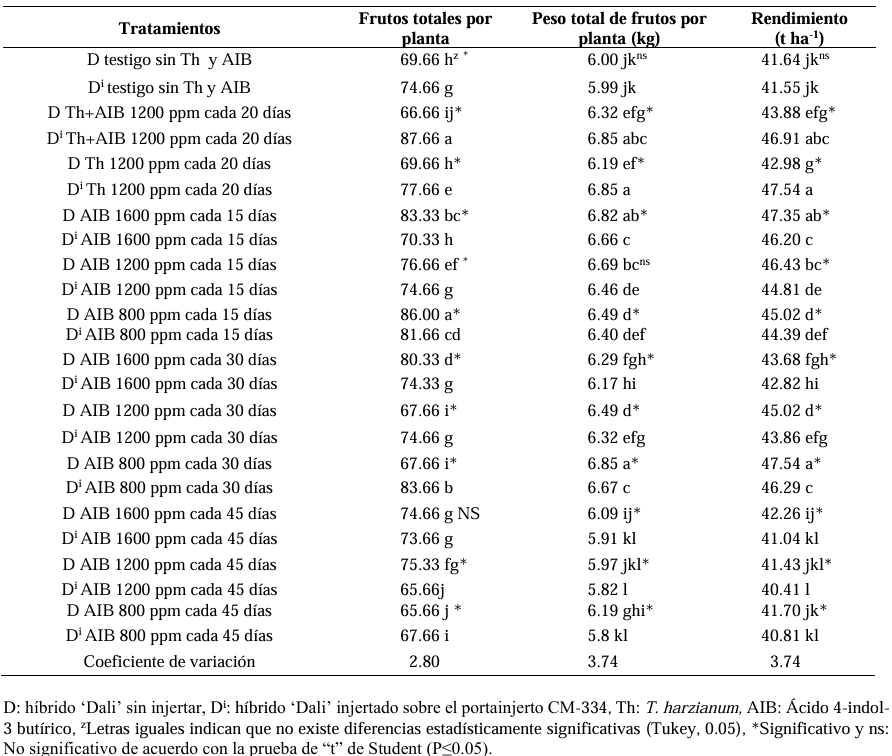
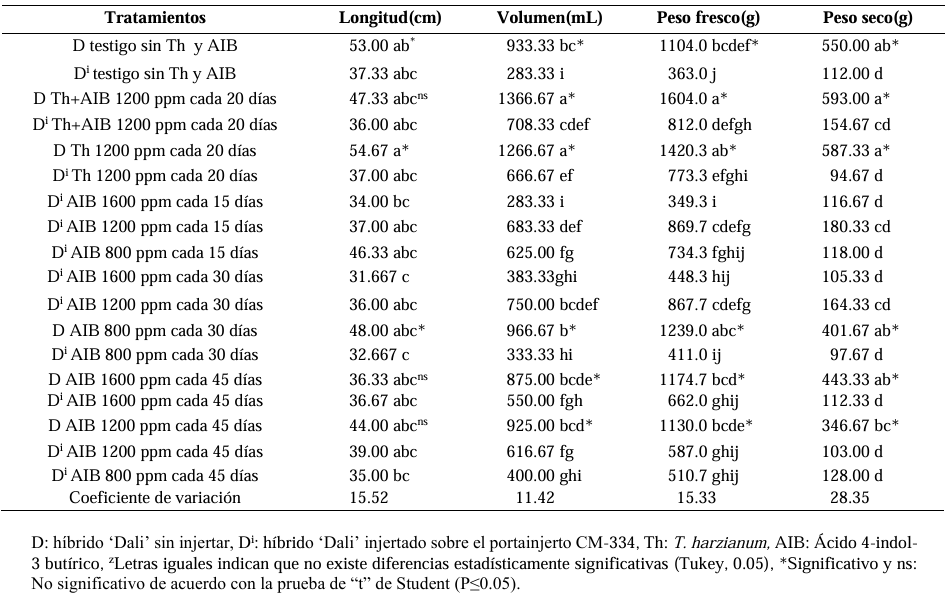
Resultados. El CM-334 como portainjerto presentó 50, 53 y 75 % de menor volumen de raíz, peso fresco y seco, comparado con los híbridos no injertados. Con el portainjerto CM 334 no hubo incidencia de P. capsici y el rendimiento disminuyó 2 % e incluso con T. harzianum solo o combinado con 1200 ppm de AIB incrementó 8 %. El híbrido ‘Dali’ injertado presentó 32, 50, 50 y 76 % de menor longitud radical, volumen, peso fresco y seco, respectivamente, comparado con el híbrido sin injertar, por lo que se sugieren aplicaciones de 1.25 kg ha-1 de T. harzianum y 1200 ppm de AIB cada 20 días para mejorar la biomasa radical.

Conclusión. El injerto de chile manzano en CM-334 es una alternativa de control viable y sustentable para disminuir la incidencia de P. capsici, ya que ninguna planta injertada mostró síntomas de marchitez, como las no injertadas, y el rendimiento fue igual en el primer ciclo de producción, con la ventaja de que las plantas injertadas producen más ciclos (4 años) mientras que las no injertadas mueren durante el primer ciclo por el oomicete.

Mostrar Figuras y/o Cuadros
Cuadro 1. Volumen, peso fresco y peso seco de raíces de plantas de chile manzano de los híbridos ‘Maruca’, ‘Jhos’ y ‘Dali’ injertadas en CM-334 vs plantas no injertadas cultivadas en Chapingo, México. Ciclo 2017-2019.
Cuadro 2. Medias de número y peso de frutos por planta y rendimiento por hectárea de chile manzano de plantas injertadas sobre CM-334 vs no injertadas, con y sin aplicación de AIB y <em>T. harzianum</em> cultivadas en Chapingo, México. Ciclo 2020 y 2021.
Cuadro 2. Medias de número y peso de frutos por planta y rendimiento por hectárea de chile manzano de plantas injertadas sobre CM-334 vs no injertadas, con y sin aplicación de AIB y T. harzianum cultivadas en Chapingo, México. Ciclo 2020 y 2021.
Cuadro 3. Biomasa de raíces de plantas de chile manzano no injertadas e injertadas sobre el CM-334, con y sin aplicación de AIB y <em>T. harzianum</em> en Chapingo, México. Ciclo 2020-2022.
Cuadro 3. Biomasa de raíces de plantas de chile manzano no injertadas e injertadas sobre el CM-334, con y sin aplicación de AIB y T. harzianum en Chapingo, México. Ciclo 2020-2022.
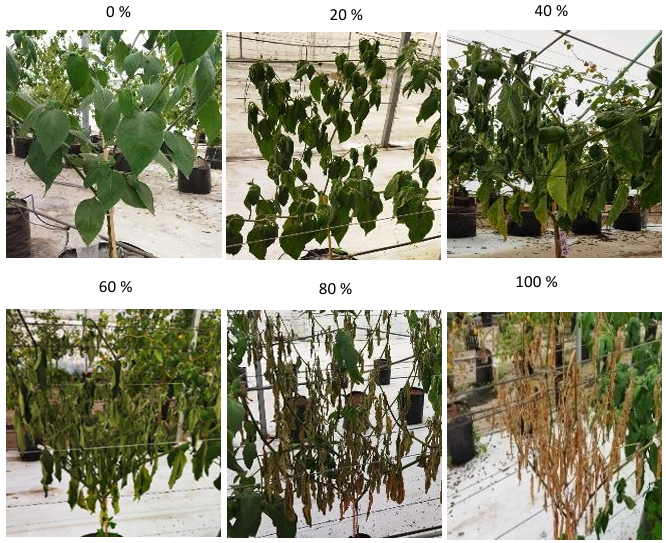
Figura 1. Escala arbitraria para evaluación de incidencia y severidad causada por <em>P. capsici</em> en plantas del híbrido ‘Dali’ de Chile manzano (<em>Capsicum pubescens</em>) cultivado en macetas con suelo infestado de <em>P. capsici</em>. Chapingo, México de 2020 a 2021.
Figura 1. Escala arbitraria para evaluación de incidencia y severidad causada por P. capsici en plantas del híbrido ‘Dali’ de Chile manzano (Capsicum pubescens) cultivado en macetas con suelo infestado de P. capsici. Chapingo, México de 2020 a 2021.
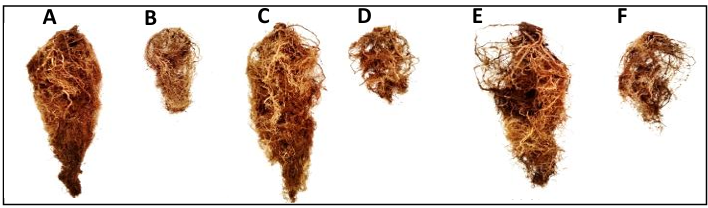
Figura 2. Raíz del híbrido de chile manzano sin injertar vs injertado en CM-334 cultivados en hidroponía e invernadero en Chapingo, México de 2017 a 2019. A) Maruca, B) Maruca injertado, C) Jhos, D) Jhos injertado, E) ‘Dali’, F) ‘Dali’ injertado.
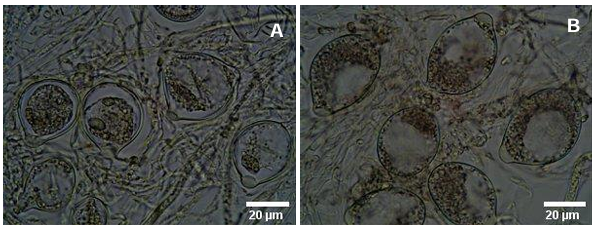
Figura 3. Esporangio bipapilado y micelio liso; B) Esporangio unipapilado con zoosporas de <em>P. capsici</em> obtenido de suelo infestado en Chapingo, México.
Figura 3. Esporangio bipapilado y micelio liso; B) Esporangio unipapilado con zoosporas de P. capsici obtenido de suelo infestado en Chapingo, México.
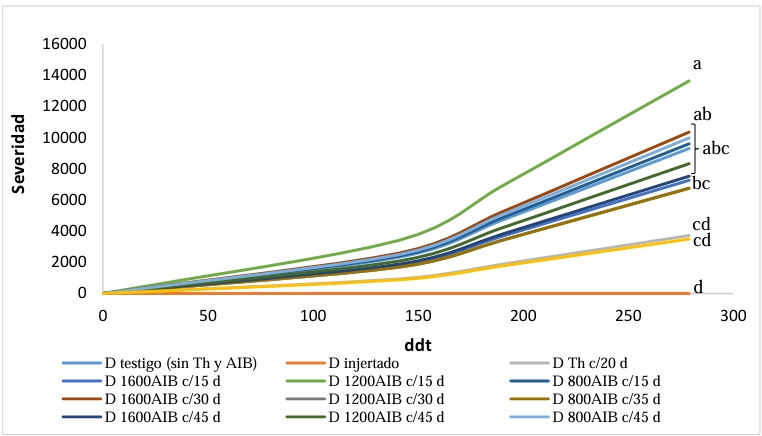
Figura 4. Área bajo la curva del progreso de <em>P. capsici</em> en chile manzano en plantas cultivadas en Chapingo, México, de 2020 a 2021. ddt: días después del trasplante. D: Híbrido ‘Dali’ sin injertar, d: días (frecuencia de aplicación). zLetras iguales indican que no existe diferencias estadísticamente significativas (LSD de Fisher P≤0.05).
Figura 4. Área bajo la curva del progreso de P. capsici en chile manzano en plantas cultivadas en Chapingo, México, de 2020 a 2021. ddt: días después del trasplante. D: Híbrido ‘Dali’ sin injertar, d: días (frecuencia de aplicación). zLetras iguales indican que no existe diferencias estadísticamente significativas (LSD de Fisher P≤0.05).
Figura 5. Caracterización morfológica de <em>P. capsici</em> en plantas enfermas. A) crecimiento algodonoso, B y C) esporangios bipapilados de <em>P. capsici</em> en chile manzano en Chapingo, México.
Figura 5. Caracterización morfológica de P. capsici en plantas enfermas. A) crecimiento algodonoso, B y C) esporangios bipapilados de P. capsici en chile manzano en Chapingo, México.
  • Vol. 2025, 43(2)
  • Artículo Científico

Caracterización y sensibilidad a fungicidas de hongos causantes de deterioro postcosecha en Allium sativum, Nuevo León, México

PorGermán Ramírez Jiménez, Omar G Alvarado Gómez, Magdiel Torres de la Cruz*, Miguel Ángel Mayo Hernández, Ángel F Huamán Pilco, Jorge R Díaz Valderrama

Recibido: 07/junio/2024 – Publicado: 21/febrero/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2406-2

Resumen Antecedentes/Objetivo. El ajo (Allium sativum) es un cultivo de relevancia económica en México. Nuevo León destaca en producción; sin embargo, en el municipio de Aramberri se han reportado pérdidas en postcosecha debido a enfermedades de etiología desconocida. El objetivo de este trabajo fue identificar los hongos asociados al deterioro postcosecha de bulbos de A. sativum en Aramberri, Nuevo León, México y evaluar in vitro su sensibilidad a fungicidas.

Materiales y Métodos. A partir de bulbos con evidencias de deterioro y necrosis se realizó el aislamiento de hongos en medio PDA. Cuatro aislamientos se identificaron mediante análisis morfológico y un aislamiento de cada especie morfológica se identificó mediante análisis molecular. Se evaluó la patogenicidad de los cuatro aislamientos sobre bulbillos libres de síntomas. Además, se realizaron pruebas de sensibilidad in vitro de los aislamientos a fungicidas protectantes y sistémicos. Los fungicidas se evaluaron a tres concentraciones y se estimó la inhibición del crecimiento micelial (CRM) y de la germinación de conidios (GDC).

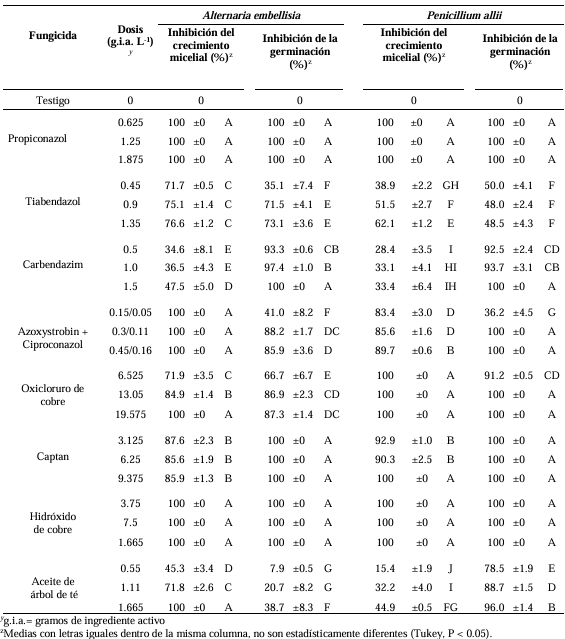
Resultados. Se identificaron a los hongos Alternaria embellisia y Penicillium allii asociadas a bulbos de A. sativum con deterioro en poscosecha. P. allii mostró capacidad para desarrollar infecciones internas a partir de heridas; A. embellisia sólo mostró crecimiento sobre las heridas. Hubo diferencias significativas (p <0.0001) en la efectividad de los fungicidas sobre las dos especies. El propiconazol y el hidróxido de cobre inhibieron al 100% el CRM y la GEC en ambos hongos, en todas las dosis evaluadas.

Conclusión. Se reporta por primera vez a P. allii como agente causal de pudrición verde del ajo en México. Este estudio servirá de base para elegir estrategias de control y contribuirá significativamente a reducir las pérdidas económicas en la producción de ajo en esta región.

Mostrar Figuras y/o Cuadros
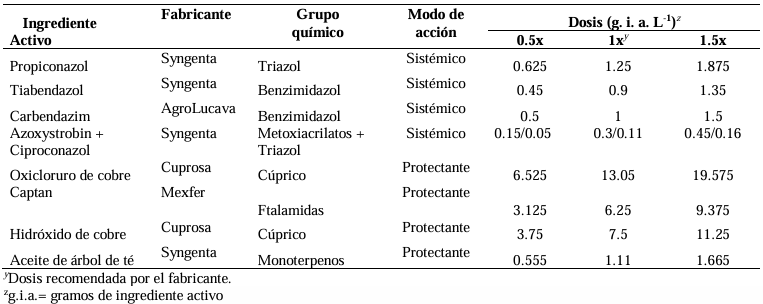
Cuadro 1. Fungicidas sistémicos y protectantes evaluados sobre <em>Alternaria embellisia</em> y <em>Penicillium allii</em>.
Cuadro 1. Fungicidas sistémicos y protectantes evaluados sobre Alternaria embellisia y Penicillium allii.
Cuadro 2. Efectividad de fungicidas sistémicos y protectantes sobre el crecimiento micelial y la germinación de esporas de <em>Alternaria embellisia</em> y <em>Penicillium allii in vitro</em>.
Cuadro 2. Efectividad de fungicidas sistémicos y protectantes sobre el crecimiento micelial y la germinación de esporas de Alternaria embellisia y Penicillium allii in vitro.
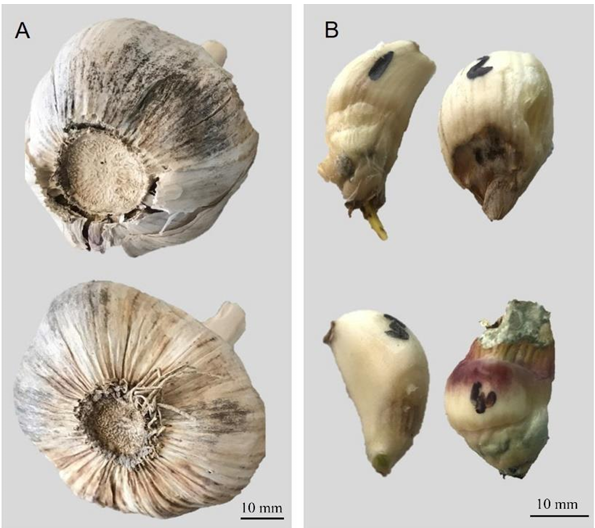
Figura 1. <strong>A.</strong> Bulbos de <em>Allium sativum</em> variedad “Don Fermín” con deterioro en postcosecha. <strong>B</strong>. Bulbillos de <em>A. sativum</em> con cancros y moho verde.
Figura 1. A. Bulbos de Allium sativum variedad “Don Fermín” con deterioro en postcosecha. B. Bulbillos de A. sativum con cancros y moho verde.
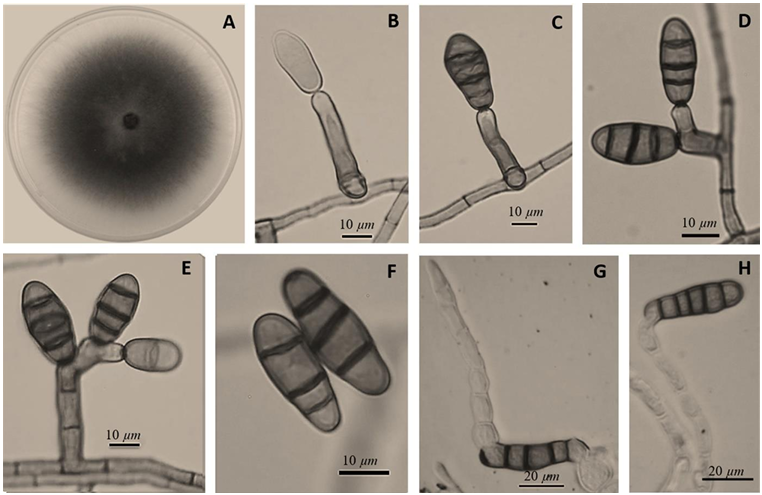
Figura 2. <em>Alternaria embellisia</em> (syn. <em>Embellisia allii</em>), aislamientos AL1D2B y AL1D3B. <strong>A</strong>. Colonia de 7 d creciendo en medio PDA a 25 °C. <strong>B, C</strong>. Conidióforo simple y conidio solitario. <strong>D</strong>, <strong>E</strong>. Conidióforo ramificado. <strong>F</strong>. Conidios septados. <strong>G, H</strong>. Clamidosporas.
Figura 2. Alternaria embellisia (syn. Embellisia allii), aislamientos AL1D2B y AL1D3B. A. Colonia de 7 d creciendo en medio PDA a 25 °C. B, C. Conidióforo simple y conidio solitario. D, E. Conidióforo ramificado. F. Conidios septados. G, H. Clamidosporas.
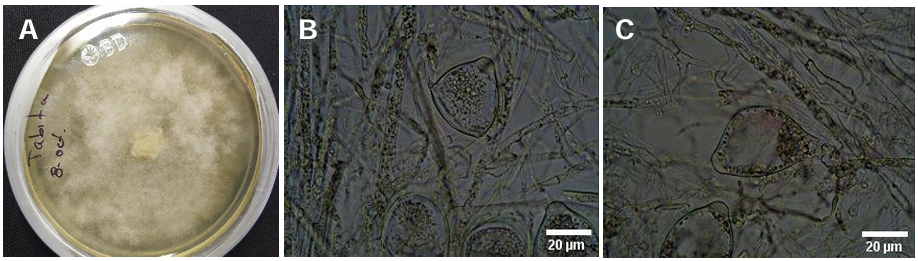
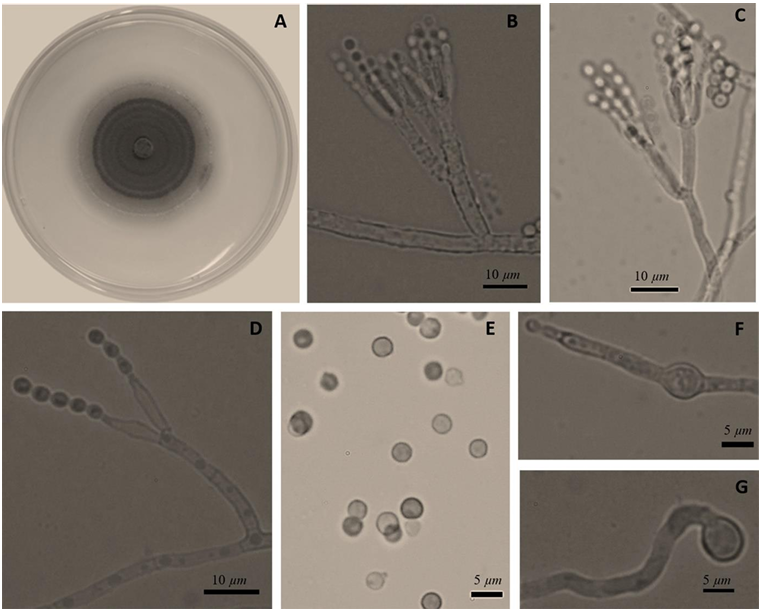
Figura 3. <em>Penicillium allii</em>, aislamientos AL1D4B y AL1D5B. <strong>A</strong>. Colonia de 7 d creciendo en medio PDA a 25°C. <strong>B</strong>. Conidióforo mostrando estípite y métula con pared rugosa. <strong>C</strong>. Conidióforo. <strong>D</strong>. Conidióforo con fiálides y conidiación formando cadenas. <strong>E</strong>. Conidios. <strong>F</strong>, <strong>G</strong>. Clamidosporas terminales e intercalares.
Figura 3. Penicillium allii, aislamientos AL1D4B y AL1D5B. A. Colonia de 7 d creciendo en medio PDA a 25°C. B. Conidióforo mostrando estípite y métula con pared rugosa. C. Conidióforo. D. Conidióforo con fiálides y conidiación formando cadenas. E. Conidios. F, G. Clamidosporas terminales e intercalares.
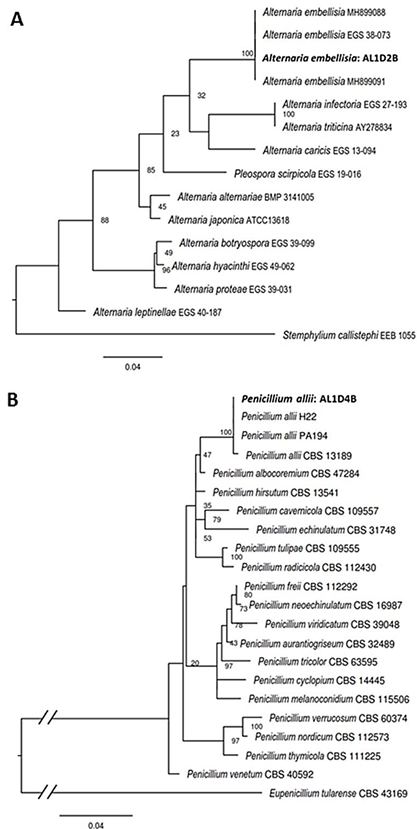
Figura 4. A. Árbol filogenético de máxima verosimilitud construido a partir de secuencias parciales del espaciador interno transcrito 1 y 2 que intervienen en la subunidad 5.8S rDNA para el aislamiento de <em>Alternaria embellisia</em> (número de acceso Genbank: PP869831), y <strong>B</strong>. Árbol filogenético de máxima verosimilitud construido a partir de secuencias parciales del gen de β tubulina para el aislamiento de <em>Penicillium allii</em> (número de acceso Genbank: PP920512); obtenidos de muestras de bulbos de ajo con pudrición en postcosecha, en Aramberri, Nuevo León. Los datos de otras cepas y especies de <em>Alternaria</em> se obtuvieron de Pryor y Bigelow (2003). Los datos de otras cepas y especies de <em>Penicillium</em> se obtuvieron de Samson et al. (2004). Los números al lado de los nodos indican los valores del análisis de robustez en porcentaje.
Figura 4. A. Árbol filogenético de máxima verosimilitud construido a partir de secuencias parciales del espaciador interno transcrito 1 y 2 que intervienen en la subunidad 5.8S rDNA para el aislamiento de Alternaria embellisia (número de acceso Genbank: PP869831), y B. Árbol filogenético de máxima verosimilitud construido a partir de secuencias parciales del gen de β tubulina para el aislamiento de Penicillium allii (número de acceso Genbank: PP920512); obtenidos de muestras de bulbos de ajo con pudrición en postcosecha, en Aramberri, Nuevo León. Los datos de otras cepas y especies de Alternaria se obtuvieron de Pryor y Bigelow (2003). Los datos de otras cepas y especies de Penicillium se obtuvieron de Samson et al. (2004). Los números al lado de los nodos indican los valores del análisis de robustez en porcentaje.
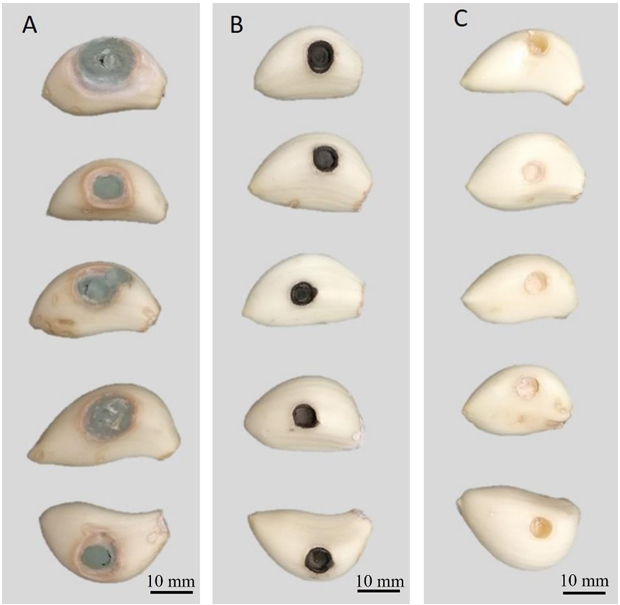
Figura 5. Prueba de patogenicidad de (A) <em>Penicillium allii</em> (AL1D4B) y (B) <em>Alternaria embellisia</em> (AL1D2B) sobre bulbillos de <em>Allium sativum</em>,14 d después de la inoculación. (C) Testigo. Cada bulbillo en una misma columna representa las repeticiones del aislamiento.
Figura 5. Prueba de patogenicidad de (A) Penicillium allii (AL1D4B) y (B) Alternaria embellisia (AL1D2B) sobre bulbillos de Allium sativum,14 d después de la inoculación. (C) Testigo. Cada bulbillo en una misma columna representa las repeticiones del aislamiento.
  • Vol. 2025, 43(4)
  • Artículo Científico
  • Número Especial

Bipolaris oryzae agente asociado a la mancha foliar en Cocos nucifera híbrido “Enano Verde de Brasil”

PorOscar Guillermo Rebolledo Prudencio, Wilberth Chan Cupul*, Guadalupe Moreno Zúñiga, Carlos Adrián Cruz Jiménez, Juan Carlos Sánchez Rangel

Recibido: 15/noviembre/2024 – Publicado: 21/febrero/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-09

Resumen Antecedentes/Objetivo. En Tecomán, Colima, México, se detectó una mancha foliar (MF) con incidencia del 92.0% en Cocos nucifera híbrido “Enano Verde de Brasil” (EVB). El objetivo fue caracterizar morfológica, molecular y bioquímicamente al hongo asociado a la MF en palma de coco EVB y evaluar su susceptibilidad a fungicidas biológicos comerciales.

Materiales y métodos. El aislado se caracterizó morfológica y molecularmente. Se evaluó su crecimiento, esporulación y producción de lacasas en diferentes medios de cultivo. Se determinó la inhibición micelial in vitro y dosis letal media (DL50) de fungicidas biológicos comerciales a base de hongos antagonistas (Trichoderma harzianum y T. viride), bacterias (Bacillus subtilis y B. amyloliquefaciens) y actinobacterias (Streptomyces lydicus y S. jofer).

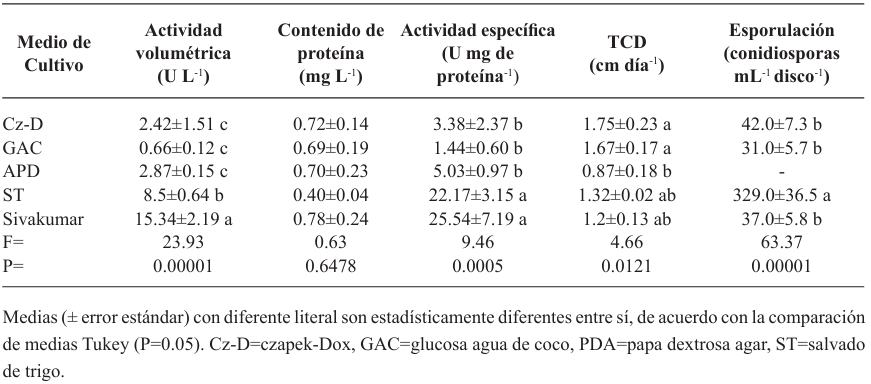
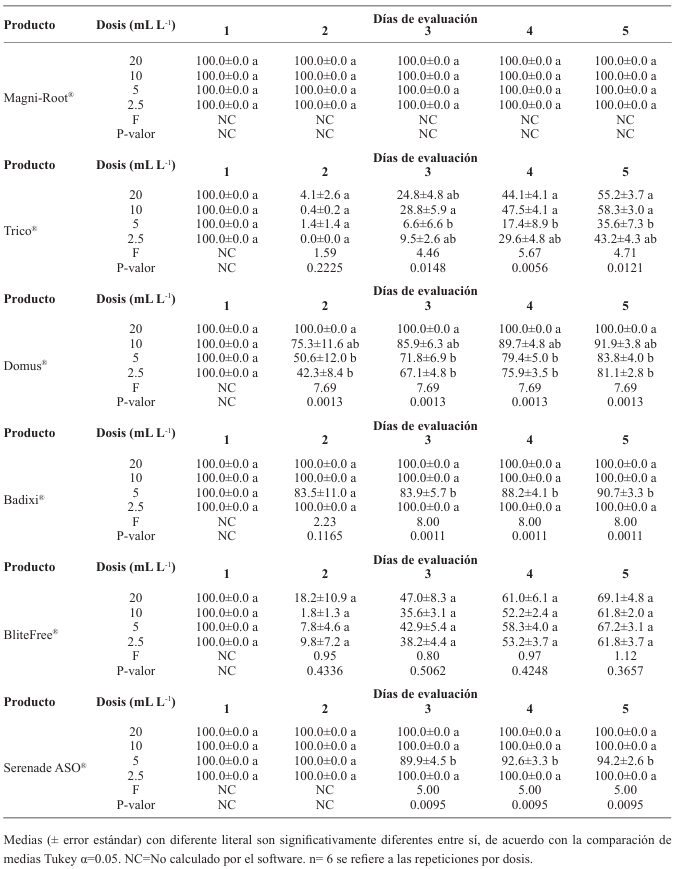
Resultados. Bipolaris oryzae fue el agente asociado a la MF, produjo 25.54 y 22.17 U mg de proteína-1 de actividad lacasa en los medios Sivakumar y salvado de trigo (ST). El medio ST permitió la mayor esporulación. T. harzianum inhibió al 100% a B. oryzae en las cuatro dosis evaluadas. B. subtilis y B. amyloliquefaciens inhibieron al 100% a B. oryzae en la dosis más alta evaluada (20 mL L-1).

Conclusión. Bipolaris oryzae es el agente asociado a la MF, produjo la mayor actividad lacasa en Sivakumar y ST. La mayor esporulación y crecimiento diario fue en ST. T. harzianum destacó sobre T. viride al inhibir en 100% el crecimiento de B. oryzae. Bacillus subtilis, S. lydicus y B. amyloliquefaciens fueron más efectivas contra B. oryzae comparado con S. jofer.

Mostrar Figuras y/o Cuadros
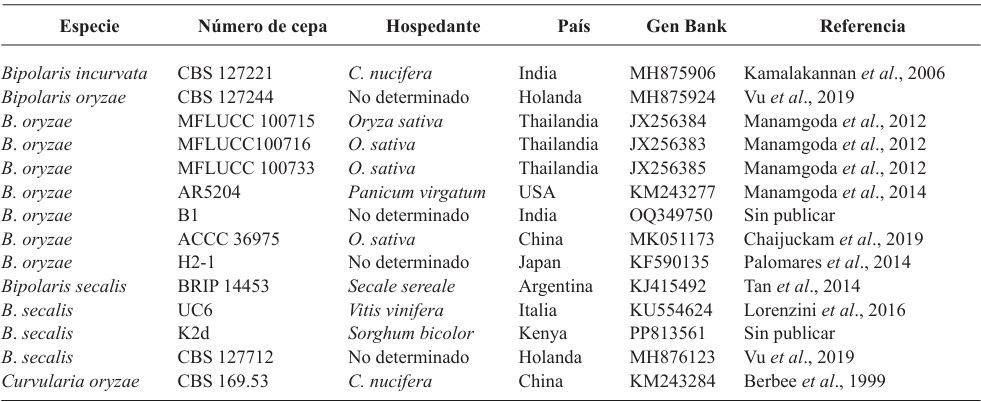
Cuadro 1. Secuencias utilizadas para la generación del árbol filogenético de <em>Bipolaris oryzae</em> agente asociado a la mancha foliar de cocotero.
Cuadro 1. Secuencias utilizadas para la generación del árbol filogenético de Bipolaris oryzae agente asociado a la mancha foliar de cocotero.
Cuadro 2. Actividad lacasa, tasa de crecimiento diario (TCD) y esporulación de <em>Bipolaris oryzae</em> en medios semisólidos.
Cuadro 2. Actividad lacasa, tasa de crecimiento diario (TCD) y esporulación de Bipolaris oryzae en medios semisólidos.
Cuadro 3. Inhibición del crecimiento micelial (%) de <em>Bipolaris oryzae</em> por diferentes dosis de fungicidas biológicos comerciales.
Cuadro 3. Inhibición del crecimiento micelial (%) de Bipolaris oryzae por diferentes dosis de fungicidas biológicos comerciales.
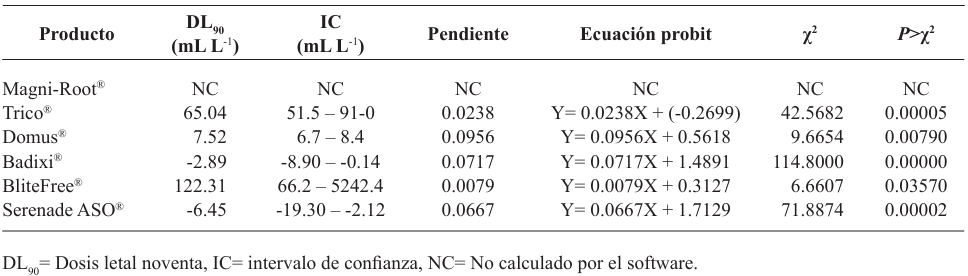
Cuadro 4. Dosis letal noventa (DL90) de seis fungicidas biológicos comerciales sobre <em>Bipolaris oryzae</em>.
Cuadro 4. Dosis letal noventa (DL90) de seis fungicidas biológicos comerciales sobre Bipolaris oryzae.
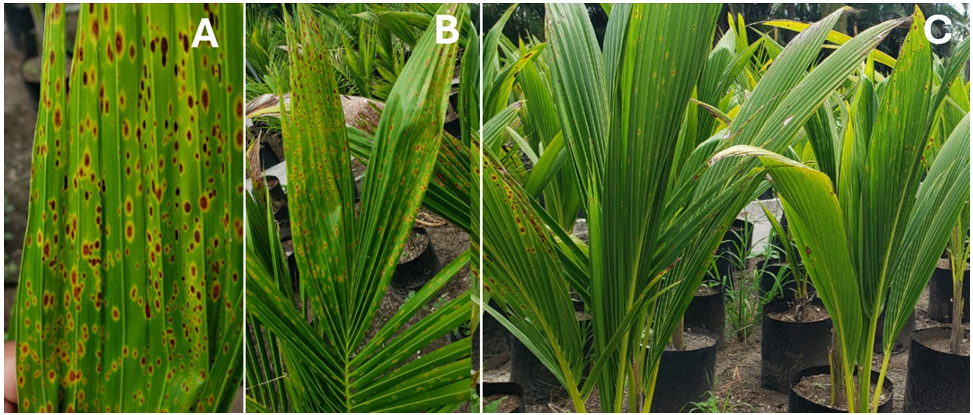
Figura 1. Hojas con síntomas de mancha foliar en palma de cocotero híbrido “Enano Verde de Brasil”. A) Manchas ovaladas color marrón y halo amarillo, B) hojas con de palma con múltiples manchas ovaladas y C) vista del vivero con plantas con síntomas de mancha foliar.
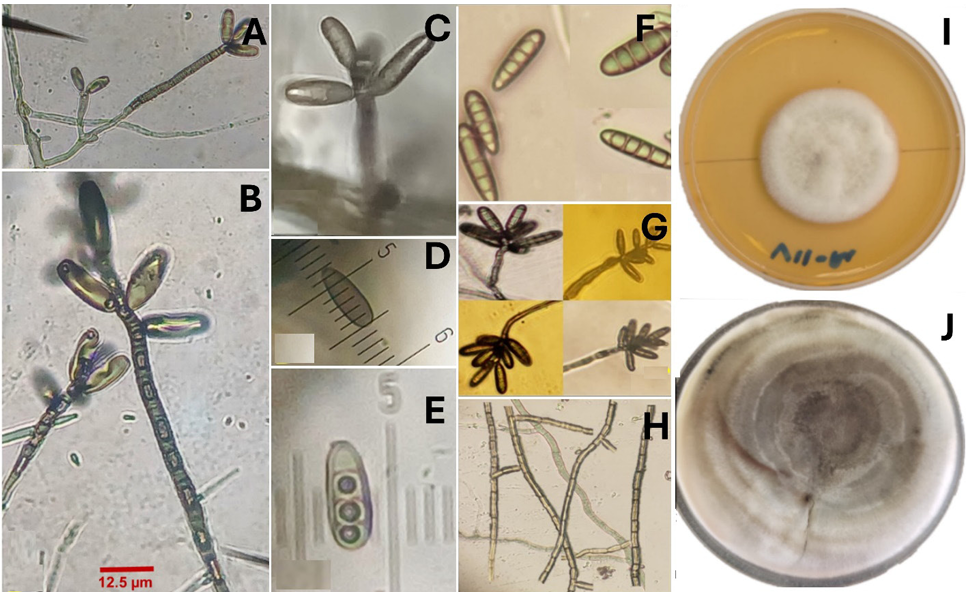
Figura 2. Características culturales y morfológicas de <em>Bipolaris oryzae</em>. A y B) Conidioforos; C a F) conidiosporas; G) agrupación de conidióforos; H) hifas septadas; I) micelio joven de cinco días de crecimiento en medio; J) micelio maduro de 20 días de crecimiento en medio PDA.
Figura 2. Características culturales y morfológicas de Bipolaris oryzae. A y B) Conidioforos; C a F) conidiosporas; G) agrupación de conidióforos; H) hifas septadas; I) micelio joven de cinco días de crecimiento en medio; J) micelio maduro de 20 días de crecimiento en medio PDA.
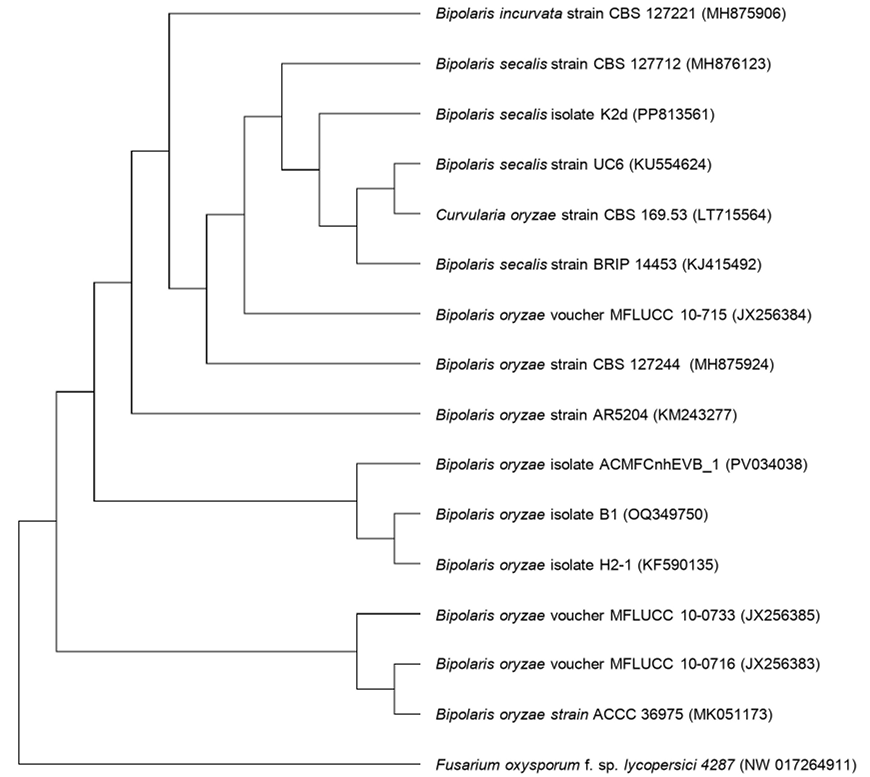
Figura 3. Análisis filogenético con base en el método de máxima verosimilitud utilizando el modelo Kimura de 2 parámetro (G+I). Árbol creado con el logaritmo de probabilidad más alto (-5759.36) de la secuencia del ADNr 28S de las cepas de <em>Bipolaris</em> similares a las del agente asociado a la MF en palma de cocotero EVB (<em>Bipolaris oryzae</em> ACMFCnhEVB_1) usando MEGA11. Es árbol se enraizó utilizando a Fusarium oxysporum se utilizó como grupo externo.
Figura 3. Análisis filogenético con base en el método de máxima verosimilitud utilizando el modelo Kimura de 2 parámetro (G+I). Árbol creado con el logaritmo de probabilidad más alto (-5759.36) de la secuencia del ADNr 28S de las cepas de Bipolaris similares a las del agente asociado a la MF en palma de cocotero EVB (Bipolaris oryzae ACMFCnhEVB_1) usando MEGA11. Es árbol se enraizó utilizando a Fusarium oxysporum se utilizó como grupo externo.
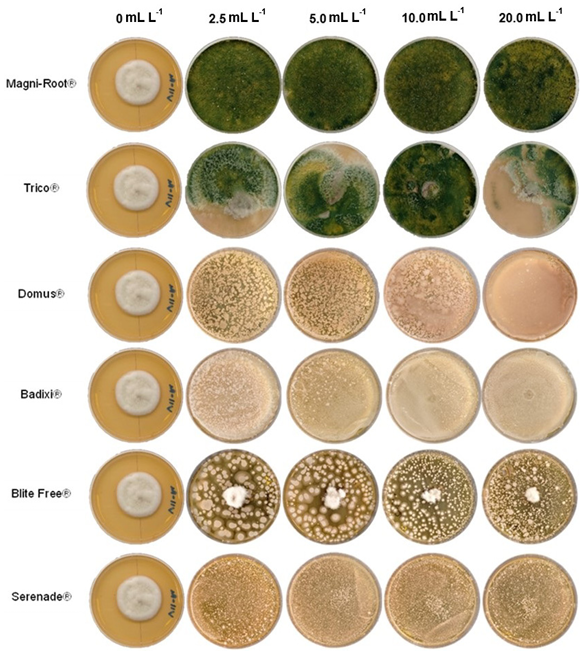
Figura 4. Crecimiento de <em>Bipolaris oryzae</em> a cinco días después de la inoculación en PDA modificado con diferentes dosis de fungicidas biológicos comerciales.
Figura 4. Crecimiento de Bipolaris oryzae a cinco días después de la inoculación en PDA modificado con diferentes dosis de fungicidas biológicos comerciales.
Figura 5. Regresión lineal entre la inhibición (%) del crecimiento de <em>Bipolaris oryzae</em> y las dosis utilizadas de cada fungicida biológico comercial.
Figura 5. Regresión lineal entre la inhibición (%) del crecimiento de Bipolaris oryzae y las dosis utilizadas de cada fungicida biológico comercial.

Página 8 de 16