
RMF Logo

Filtros de Contribuciones

Buscar Contribución:

Búsquedas previas al 2024 ver Archivo (2000-2023)

Todos los Artículos

  • Vol. 2026, 44(2)
  • Artículo Científico

Evaluación in vitro del potencial antagonista de Bacillus zhangzhouensis JJR198 contra Phytophthora capsici

PorDarío Franco Romo, Norma Angélica Chávez Vela, José de Jesús Luna Ruiz*, Sylvia Patricia Fernández Pavía, José Francisco Morales Domínguez, Susana de la Torre Zavala

Recibido: 20/noviembre/2025 – Publicado: 25/febrero/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2511-2

Resumen Antecedentes/Objetivo. Phytophthora capsici representa una de las amenazas más significativas a la producción de chiles a nivel mundial y su control se basa de manera predominante en las aplicaciones de fungicidas, las cuales conllevan considerables preocupaciones medioambientales, Por lo tanto, la exploración de estrategias para el control biológico se ha vuelto una alternativa relevante. El presente estudio se enfocó en la evaluación del potencial de un aislado bacteriano como un agente de biocontrol contra seis aislados de P. capsici y uno de P. cinnamomi.

Materiales y Métodos. Los efectos de biocontrol se evaluaron in vitro mediante ensayos de cultivo dual entre el aislado bacteriano JJR198 y aislados de Phytophthora para determinar la inhibición del crecimiento micelial, la formación de esporangios y la liberación de zoosporas, con observaciones adicionales mediante microscopía electrónica de barrido. La eficacia de JJR198 en la supresión de la pudrición de raíz causada por Phytophthora se evaluó en plantas de chile bajo condiciones de invernadero; se midió la severidad de la enfermedad en plantas inoculadas. Además, se determinó la tolerancia a la sal y la persistencia de la bacteria en la rizósfera y la rizoplano. Todos los datos fueron sometidos a un análisis de varianza (ANOVA) seguido de la prueba de Tukey (p ≤ 0.05).

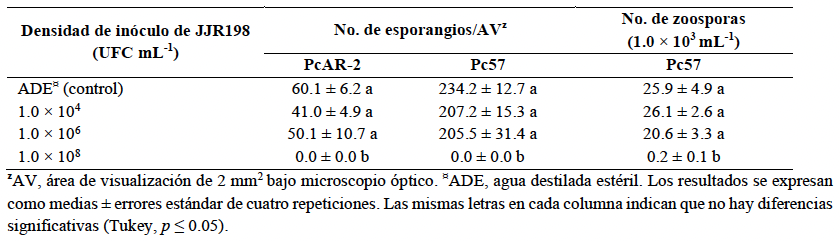
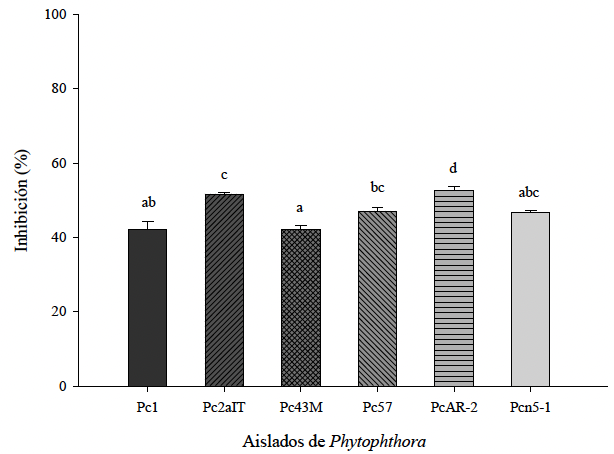
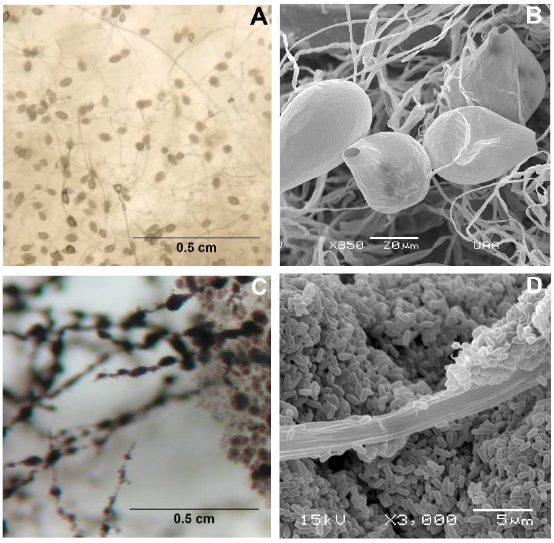
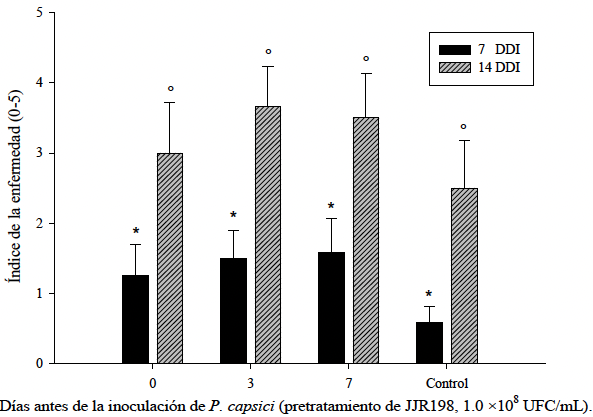
Resultados. Identificado como Bacillus zhangzhouensis mediante secuenciación 16S rRNA, el aislado bacteriano JJR198 mostró actividad antagonista. Los ensayos in vitro demostraron que la cepa JJR198 redujo el crecimiento de micelio entre 42.0 y 52.7 % en seis aislados de Phytophthora evaluados. La actividad biocontrol dependió de la concentración bacteriana inicial, ya que la formación de esporangios y la liberación de zoosporas en los aislados de Phytophthora capsici evaluados se suprimieron por completo a 1.0 × 10⁸ UFC mL⁻¹, mientras que no se observó efecto a concentraciones menores (1.0 × 10⁴ y 1.0 × 10⁶ UFC mL⁻¹). Mediante microscopía óptica y electrónica de barrido se observó que las hifas y el micelio quedaron cubiertos por células bacterianas. Sin embargo, en la evaluación in vivo, el pretratamiento de plantas de chile con JJR198 (1.0 × 10⁸ UFC mL⁻¹) a los 7, 3 o 0 días antes de la inoculación del oomiceto no redujo la severidad de la enfermedad causada por Phytophthora capsici. JJR198 también mostró capacidad de desarrollo en condiciones de alta salinidad; creció en medio AN con 7.5 % de NaCl tras 48 h de incubación a 30 °C. Además, se confirmó la presencia del inóculo bacteriano en las raíces de plantas de chile: se recuperaron colonias con características morfológicas idénticas a JJR198 a partir de muestras de rizósfera y rizoplano, con conteos de 1.6 × 10⁶ y 0.19 × 10⁶ UFC mL⁻¹, respectivamente.

Conclusión. Los resultados indican que Bacillus zhangzhouensis JJR198 presenta actividad antagonista in vitro contra múltiples aislados de Phytophthora, con una inhibición del crecimiento de micelio entre 42.0 y 52.7 %, así como inhibición de la formación de esporangios y la liberación de zoosporas a una concentración de 1.0 × 10⁸ UFC mL⁻¹. Sin embargo, su eficacia in planta fue limitada bajo las condiciones evaluadas

Mostrar Figuras y/o Cuadros
Cuadro 1. Efecto de las concentraciones del inóculo de <em>Bacillus zhangzhouensis</em> JJR198 en la formación de esporangios y liberación de zoosporas en dos aislados de <em>Phytophthora capsici</em>.
Cuadro 1. Efecto de las concentraciones del inóculo de Bacillus zhangzhouensis JJR198 en la formación de esporangios y liberación de zoosporas en dos aislados de Phytophthora capsici.
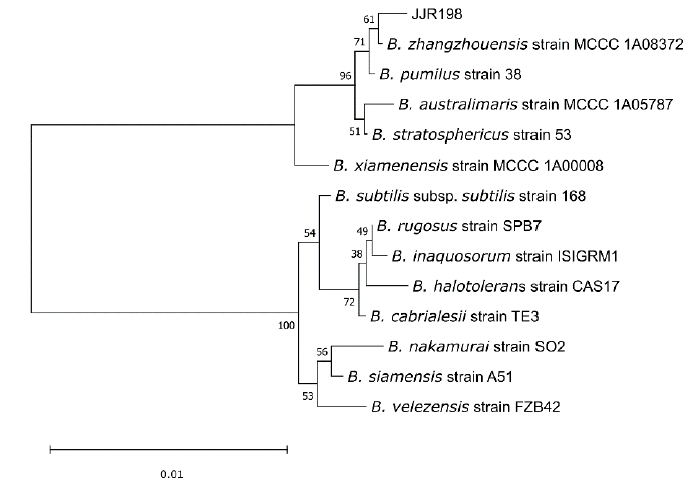
Figura 1. Árbol filogenético de <em>Bacillus zhangzhouensis</em> (JJR198) con otros taxones relacionados, basado en secuencias del gen 16S. El árbol muestra dos ramas distintas, donde JJR198 se ubica en un clado junto con <em>Bacillus zhangzhouensis</em> y <em>Bacillus pumilus</em>.
Figura 1. Árbol filogenético de Bacillus zhangzhouensis (JJR198) con otros taxones relacionados, basado en secuencias del gen 16S. El árbol muestra dos ramas distintas, donde JJR198 se ubica en un clado junto con Bacillus zhangzhouensis y Bacillus pumilus.
Figura 2. Efecto inhibitorio de <em>Bacillus zhangzhouensis</em> JJR198 (1.0 × 10⁸ UFC mL⁻¹) sobre el crecimiento micelial de cinco aislados de <em>Phytophthora capsici</em> (Pc) y un aislado de <em>Phytophthora cinnamomi</em> (Pcn) después de cinco días. Las barras y las líneas verticales representan las medias y los errores estándar de seis repeticiones. Las columnas con la misma letra indican que no existen diferencias significativas (prueba de Tukey, p ≤ 0.05).
Figura 2. Efecto inhibitorio de Bacillus zhangzhouensis JJR198 (1.0 × 10⁸ UFC mL⁻¹) sobre el crecimiento micelial de cinco aislados de Phytophthora capsici (Pc) y un aislado de Phytophthora cinnamomi (Pcn) después de cinco días. Las barras y las líneas verticales representan las medias y los errores estándar de seis repeticiones. Las columnas con la misma letra indican que no existen diferencias significativas (prueba de Tukey, p ≤ 0.05).
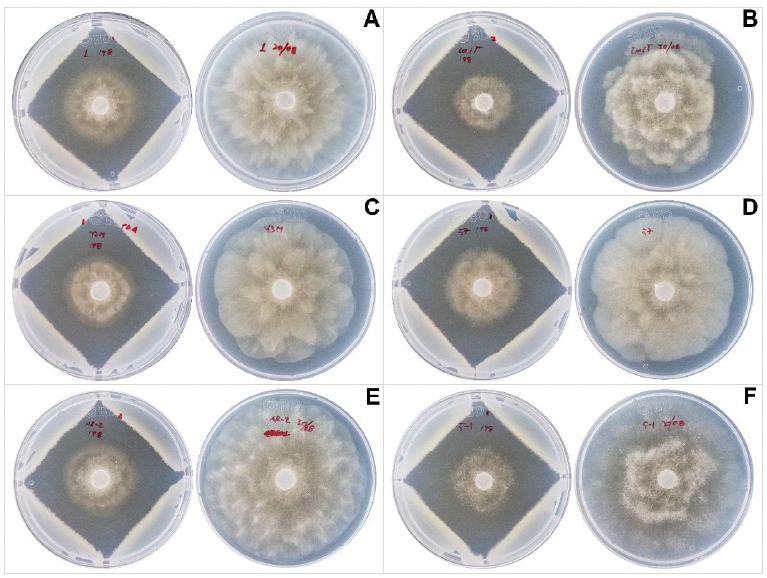
Figura 3. Inhibición del desarrollo de micelio (izquierda) de cinco aislados de <em>Phytophthora capsici</em> (Pc) y uno de <em>Phytophthora cinnamomi</em> (Pcn) por <em>Bacillus zhangzhouensis</em> JJR198 (1.0 × 10⁸ UFC mL-1), comparado a su respectivo control (derecha). A, Pc1; B, Pc2aIT; C, Pc43M, D, Pc57; E, PcAR-2; F, Pcn5-1.
Figura 3. Inhibición del desarrollo de micelio (izquierda) de cinco aislados de Phytophthora capsici (Pc) y uno de Phytophthora cinnamomi (Pcn) por Bacillus zhangzhouensis JJR198 (1.0 × 10⁸ UFC mL-1), comparado a su respectivo control (derecha). A, Pc1; B, Pc2aIT; C, Pc43M, D, Pc57; E, PcAR-2; F, Pcn5-1.
Figura 4. Colonización del micelio de <em>Phytophthora capsici</em> por la cepa <em>Bacillus zhangzhouensis</em> JJR198 observada mediante microscopía óptica y electrónica de barrido. A–B, control sin exposición que muestra micelio, hifas y esporangios bien desarrollados. C–D, exposición a JJR198 (1.0 × 10⁸ UFC mL⁻¹), donde se observan células bacterianas adheridas que cubren hifas y esporangios; el desarrollo de los esporangios parece estar inhibido.
Figura 4. Colonización del micelio de Phytophthora capsici por la cepa Bacillus zhangzhouensis JJR198 observada mediante microscopía óptica y electrónica de barrido. A–B, control sin exposición que muestra micelio, hifas y esporangios bien desarrollados. C–D, exposición a JJR198 (1.0 × 10⁸ UFC mL⁻¹), donde se observan células bacterianas adheridas que cubren hifas y esporangios; el desarrollo de los esporangios parece estar inhibido.
Figura 5. Efecto de JJR198 aplicado en plantas de chile a los 7 y 14 días después de la inoculación (DDI) con <em>Phytophthora capsici</em>. Las plantas de chile fueron pretratadas con JJR198 (1 × 10⁸ UFC mL⁻¹) 7, 3 y 0 días antes de la inoculación con <em>Phytophthora capsici</em>. Plantas tratadas únicamente con el oomiceto se utilizaron como controles. Las barras verticales y las líneas representan las medias y los errores estándar de 12 repeticiones. Las comparaciones estadísticas se realizaron por separado dentro de cada DDI. Las barras que comparten el mismo símbolo dentro del mismo DDI no presentan diferencias significativas (Tukey, p ≤ 0.05)
Figura 5. Efecto de JJR198 aplicado en plantas de chile a los 7 y 14 días después de la inoculación (DDI) con Phytophthora capsici. Las plantas de chile fueron pretratadas con JJR198 (1 × 10⁸ UFC mL⁻¹) 7, 3 y 0 días antes de la inoculación con Phytophthora capsici. Plantas tratadas únicamente con el oomiceto se utilizaron como controles. Las barras verticales y las líneas representan las medias y los errores estándar de 12 repeticiones. Las comparaciones estadísticas se realizaron por separado dentro de cada DDI. Las barras que comparten el mismo símbolo dentro del mismo DDI no presentan diferencias significativas (Tukey, p ≤ 0.05)
  • Vol. 2026, 44(2)
  • Nota Fitopatológica

Sancassania mycophaga (Acari: Acaridae) como agente regulador de Nacobbus aberrans (Tylenchida: Pratylenchidae)

PorOlga Gómez Rodríguez, Edgar Villar Luna, Laith Khalil Tawfeeq Al-Ani, Iván Morales Soto, Reyna Vargas Abasolo, Liliana Aguilar Marcelino*

Recibido: 28/julio/2025 – Publicado: 09/febrero/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2407-4

Resumen Antecedentes/Objetivo. Los ácaros nematófagos representan una herramienta potencialmente eficaz dentro de los programas de manejo integrado de nematodos fitoparásitos. El objetivo de este trabajo fue evaluar la capacidad depredadora del ácaro nematófago Sancassania mycophaga contra el nematodo fitoparásito Nacobbus aberrans bajo condiciones de laboratorio.

Desarrollo experimental. Se realizaron dos experimentos independientes. Para esto, la unidad experimental consistió de una maceta con una planta de pimiento (Capsicum annuum), en la que se inocularon 500 o 1 000 juveniles J2 de N. aberrans. Se evaluaron cuatro tratamientos: (1) control (solo nematodos), (2) inoculación simultánea de ácaros y nematodos, (3) inoculación de nematodos cinco días después de los ácaros, y (4) inoculación de nematodos 10 días después de los ácaros. En todos los tratamientos se introdujeron cinco ácaros por maceta. Las variables fueron: porcentaje de penetración de J2 en raíces, número de agallas, huevos y abundancia de ácaros. Los datos se sometieron a ANAVA y comparación de medias (LSD, p < 0.05).

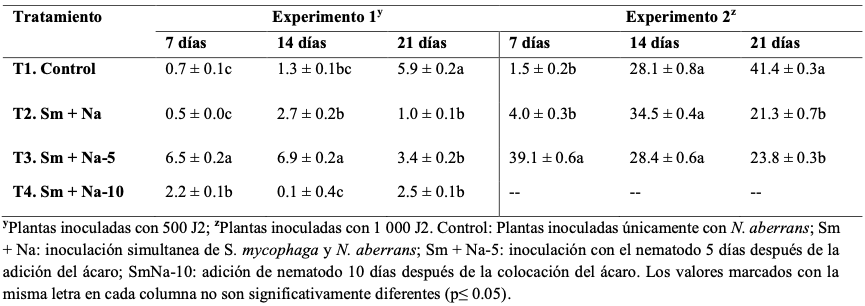
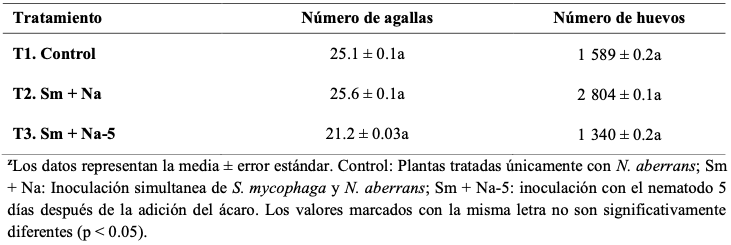
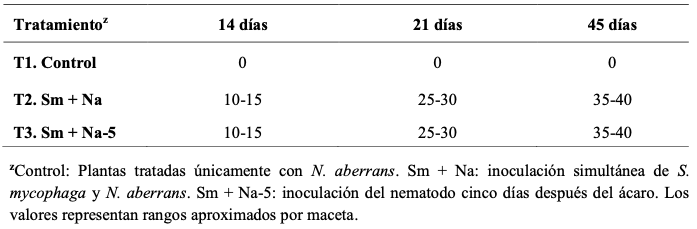
Resultados. Después de 21 días del establecimiento de ensayos, se observó una reducción significativa en la penetración de nematodos en todos los tratamientos con ácaros, en comparación con el control. En el experimento con 500 J2, los porcentajes de penetración en raíces, fue de 1.0, 3.4 y 2.5 % para los tratamientos 2, 3 y 4, respectivamente. En el experimento con 1 000 J2, el porcentaje de penetración correspondió a 21.3 y 23.8 % para los tratamientos 2 y 3. Desde el día 14, la población de ácaros mostró un crecimiento sostenido, y pasó de cinco individuos iniciales, a más de 25 a los 21 días (> 400 %), y más de 35 a los 45 días (> 600 %). No se detectaron diferencias significativas en número de agallas ni huevos a los 45 días.

Conclusión. S. mycophaga redujo la penetración de N. aberrans en raíces de pimiento. Con 500 J2, la reducción relativa osciló entre 42 y 83 %, mientras que con 1 000 J2 varió entre 42 y 49 %, respecto al control. Además, el ácaro logró establecerse y multiplicarse en el sistema experimental. Estos resultados respaldan su potencial como agente biocontrolador de N. aberrans.

Mostrar Figuras y/o Cuadros
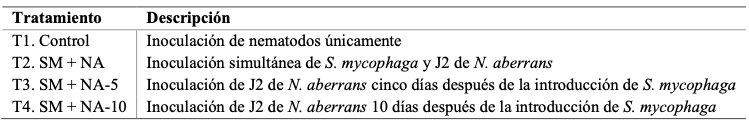
Cuadro 1. Descripción de los tratamientos aplicados en la confrontación entre <em>S. mycophaga</em> y <em>N. aberrans</em>.
Cuadro 1. Descripción de los tratamientos aplicados en la confrontación entre S. mycophaga y N. aberrans.
Cuadro 2. Porcentaje de penetración de J2 en la raíz de pimiento en tres fechas después de la exposición de <em>S. mycophaga</em> vs. <em>N. aberrans</em>.
Cuadro 2. Porcentaje de penetración de J2 en la raíz de pimiento en tres fechas después de la exposición de S. mycophaga vs. N. aberrans.
Cuadro 3. Número de agallas y huevos por gramo de tejido radicular, 45 días después de la exposición de <em>S. mycophaga</em> con 1 000 J2 de <em>N. aberrans<sup>z</sup></em>.
Cuadro 3. Número de agallas y huevos por gramo de tejido radicular, 45 días después de la exposición de S. mycophaga con 1 000 J2 de N. aberransz.
Cuadro 4. Recuperación de ácaros días después de la exposición de <em>S. mycophaga</em> con 1 000 J2 de <em>N. aberrans</em>.
Cuadro 4. Recuperación de ácaros días después de la exposición de S. mycophaga con 1 000 J2 de N. aberrans.
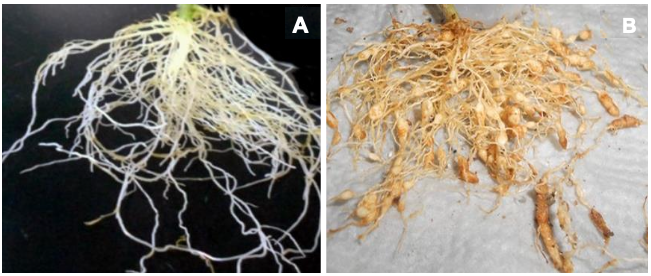
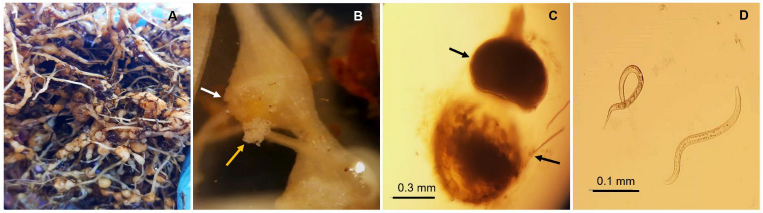
Figura 1. A) Raíz de planta de pimiento antes de la inoculación con nematodos, B) Raíz con formación de agallas, observada 45 días después de la inoculación con juveniles J2 de <em>N. aberrans</em>, en el tratamiento control.
Figura 1. A) Raíz de planta de pimiento antes de la inoculación con nematodos, B) Raíz con formación de agallas, observada 45 días después de la inoculación con juveniles J2 de N. aberrans, en el tratamiento control.
  • Vol. 2026, 44(2)
  • Artículo de Revisión

Fitoquímicos de residuos agrícolas y agroindustriales: Una alternativa para el control de bacterias y hongos fitopatógenos

PorLuis Alfonso Jiménez Ortega, Octavio Valdez Baro, Laura A Contreras Angulo, Erick P Gutiérrez Grijalva, Karina Valencia Sandoval, Raymundo Saúl García Estrada, José Basilio Heredia*

Recibido: 22/mayo/2025 – Publicado: 09/febrero/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2206-3

Resumen Justificación. El uso de pesticidas químicos ha sido generalizado durante varias décadas, demostrando ser eficaz para controlar plagas que reducen la calidad y la productividad de los cultivos. Sin embargo, debido a su naturaleza química, presentan efectos secundarios que afectan la salud del aplicador, del consumidor y del medio ambiente. Por ello, el uso de productos naturales está surgiendo como una alternativa para el control de enfermedades y plagas fitopatógenas. El objetivo de esta investigación fue revisar y analizar los efectos bactericidas y fungicidas de extractos ricos en fitoquímicos obtenidos a partir de subproductos y residuos agrícolas y agroindustriales.

Marco teórico y experimental. Se realizó una revisión bibliográfica en Scopus y Web of Science, enfocada en publicaciones en inglés y español de los últimos 10 años. Solo se consideraron publicaciones relacionadas con la extracción de fitoquímicos a partir de subproductos agrícolas y/o agroindustriales, y que investigaran su efecto contra organismos fitopatógenos. En este sentido, los principales fitoquímicos con actividad antibacteriana y antifúngica son compuestos fenólicos como los flavonoides y otros derivados. Asimismo, compuestos hidrofóbicos, como los terpenos (aceites esenciales), han demostrado potencial biocida a concentraciones similares a las comercializadas actualmente. Los principales modos y mecanismos de acción son multitarget, es decir, afectan más de una vía metabólica y de un organelo. Por ejemplo, impactan la membrana celular al insertarse en la bicapa lipídica, reducen la formación de biopelículas, disminuyen la síntesis de ergosterol y atenúan la síntesis de quitina en la pared celular.

Conclusiones y Perspectivas. Se identificaron fitoquímicos con potente actividad bactericida y fungicida, principalmente compuestos fenólicos y aceites esenciales (terpenos). Estos fitoquímicos presentaron valores de IC50 y porcentajes de reducción incluso superiores a los de los controles químicos. Los subproductos agrícolas y la biomasa, que son recursos subvalorados, representan una alternativa importante para extraer fitoquímicos de alto valor agregado que pueden utilizarse en múltiples industrias, incluida la agricultura, para desarrollar biopesticidas sostenibles y no tóxicos.

Mostrar Figuras y/o Cuadros
Cuadro 1. Subproductos agrícolas y agroindustriales con efecto antibacteriano.
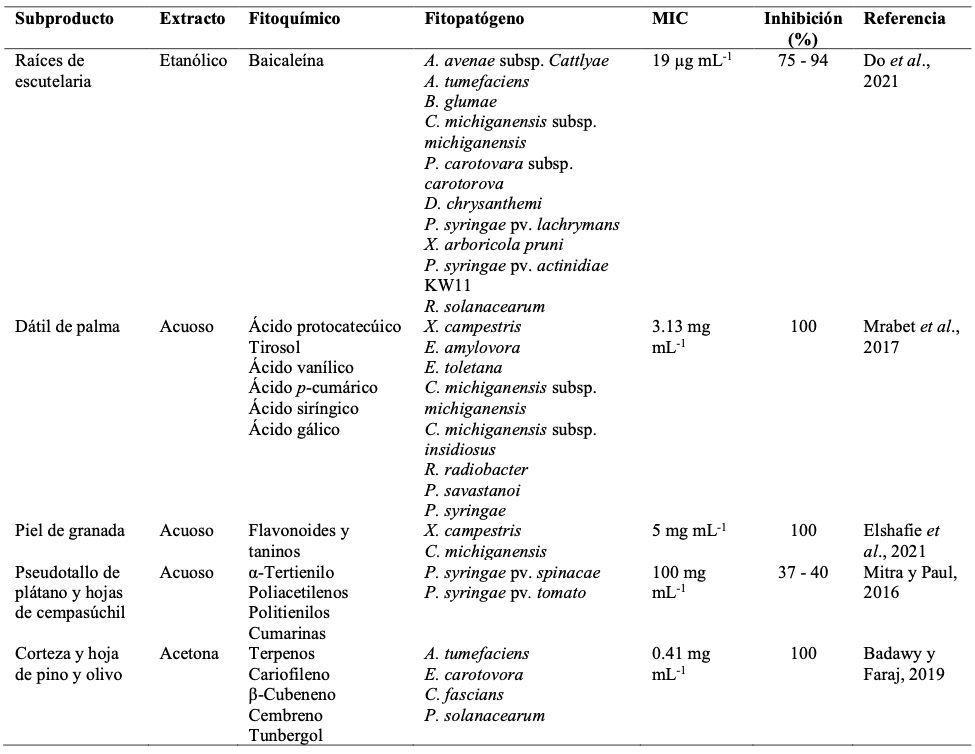
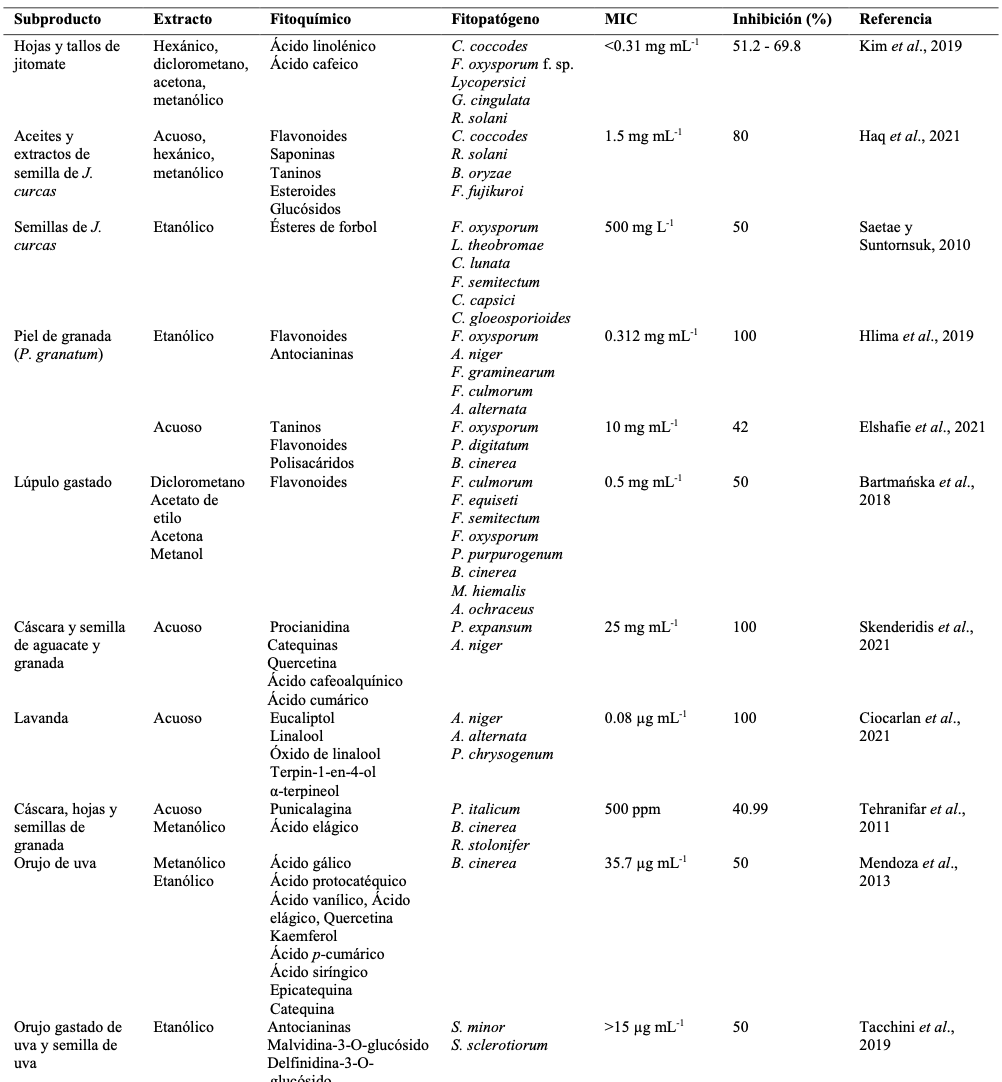
Cuadro 2. Subproductos agrícolas y agroindustriales con efecto antifúngico.
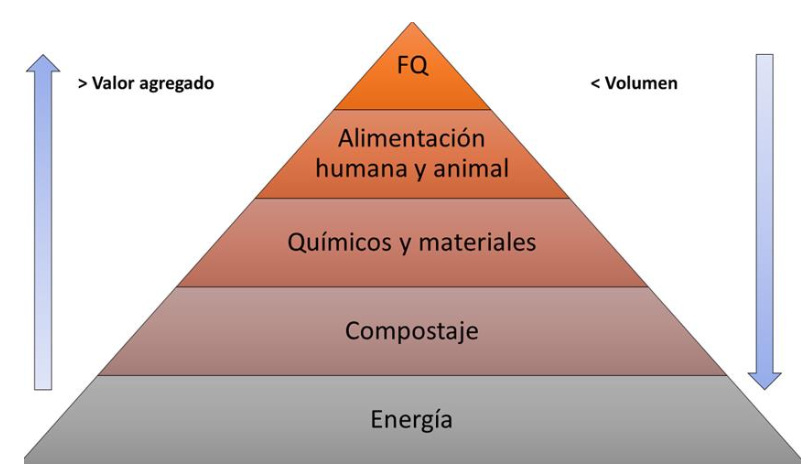
Figura 1. Pirámide de valorización de biomasas y de subproductos agrícolas y agroindustriales. FQ (Fitoquímicos).
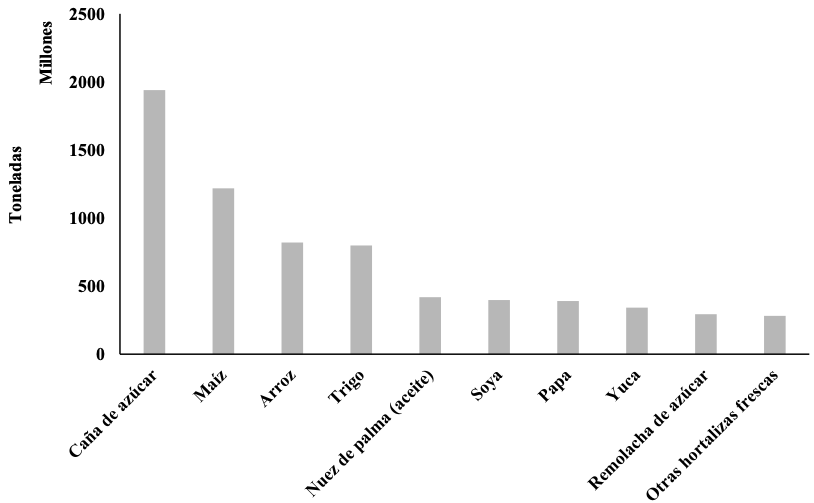
Figura 2. Cultivos de mayor producción en el mundo de acuerdo a la Organización de las Naciones Unidas para la Alimentación y la Agricultura (FAO), en 2024. Datos tomados de la FAO (2026).
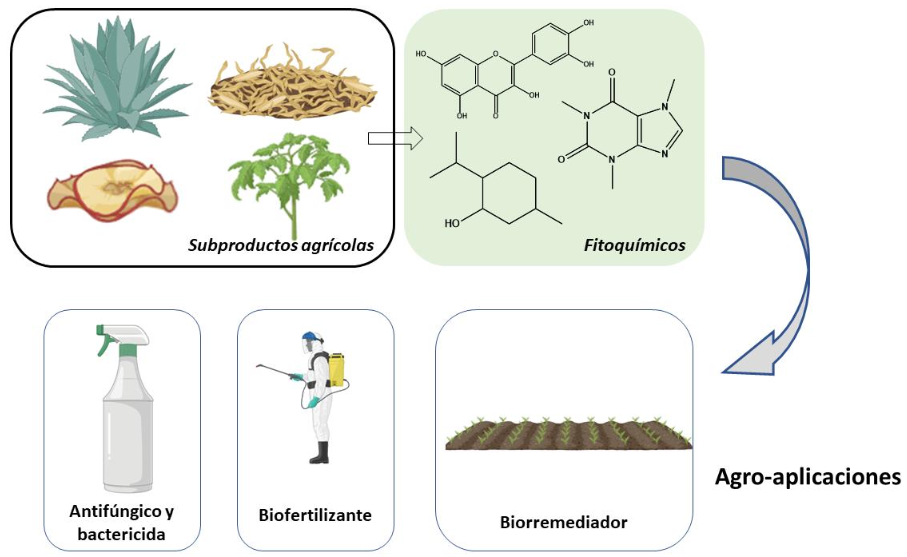
Figura 3. Aplicaciones industriales de fitoquímicos aislados a partir de subproductos agrícolas. Elaborado con BioRender.
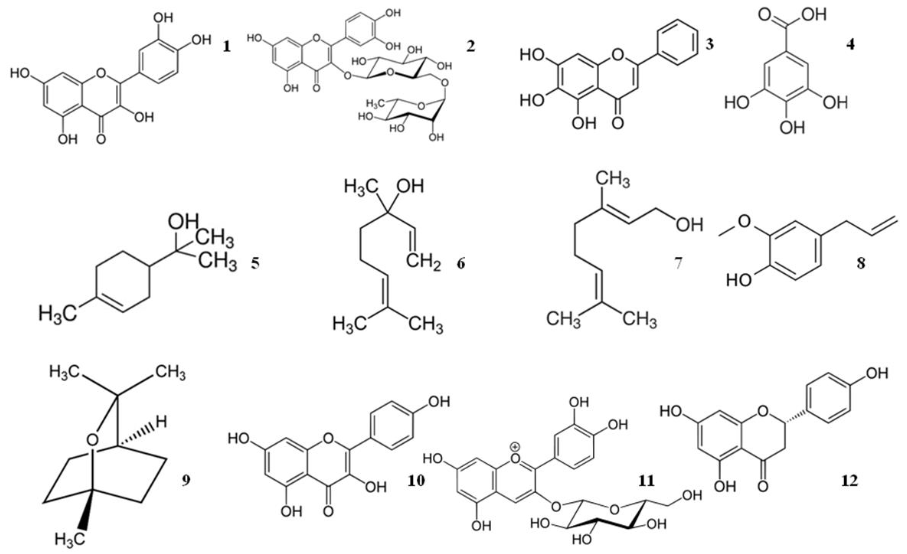
Figura 4. Estructuras moleculares de fitoquímicos antibacterianos y antifúngicos identificados en subproductos agrícolas. 1. Quercetina. 2. Rutina. 3. Baicaleína. 4. Ácido gálico. 5. Terpineol. 6. Linanool. 7. Geraniol. 8. Eugenol. 9. Eucaliptol. 10. Kaempferol. 11. Cianidina 3-O-glucósido. 12. Naringenina.
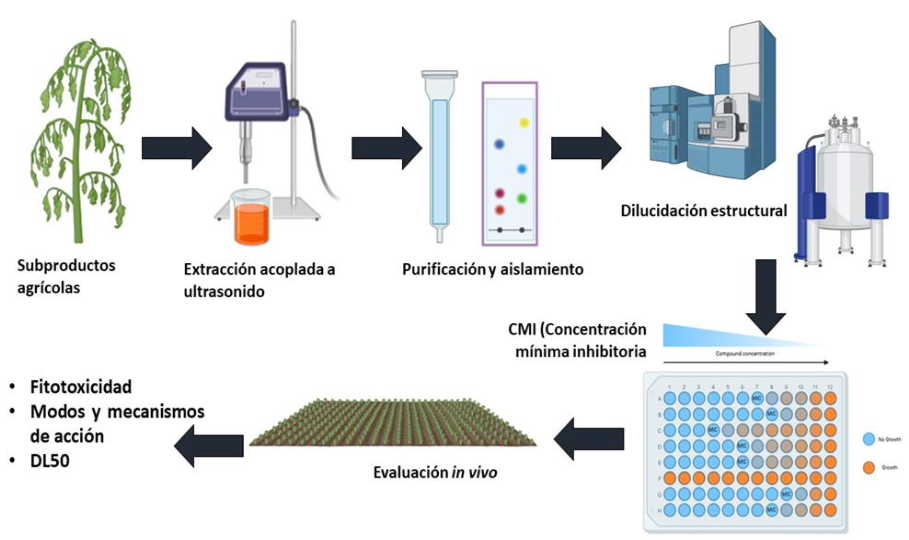
Figura 5. Proceso de obtención de fitoquímicos a partir de biomasas agrícolas y su escalamiento a escala industrial para la generación de bioplaguicidas potencialmente aplicables a los mismos cultivos. Elaborado con BioRender.
  • Vol. 2026, 44(2)
  • Artículo Científico

Control in vitro de Colletotrichum gloeosporioides causante de la antracnosis en toronja (Citrus paradisi) mediante extractos vegetales

PorGuadalupe Reyes García, Santo Ángel Ortega Acosta, Francisco Palemón Alberto*, Juan Elías Sabino López, Oscar Martín Antunez Ocampo, Claudia Martínez Alonso, Anayeli Morales Rosales

Recibido: 01/diciembre/2025 – Publicado: 05/febrero/2026
DOI: https://doi.org/10.18781/R.MEX.FIT.2512-1

Resumen Antecedentes/Objetivo. Anualmente, la producción de cítricos (Citrus spp.) es afectada por la antracnosis, asociada a Colletotrichum spp. Esta enfermedad se puede presentar en precosecha y postcosecha, y generalmente se controla con fungicidas sintéticos. Una alternativa a estos productos es la aplicación de extractos de plantas con propiedades antifúngicas, por lo que el objetivo del presente estudio fue evaluar el efecto de extractos vegetales en condiciones in vitro contra Colletotrichum gloeosporioides causante de antracnosis en toronja (Citrus paradisi).

Materiales y Métodos. Los extractos se obtuvieron de 17 especies de plantas colectadas de diferentes zonas de Guerrero. La evaluación de la efectividad de los extractos se realizó mediante la técnica de cultivo PDA envenenado (PDA + extracto vegetal al 10 %), en el cual se sembraron discos de 5 mm de diámetro del hongo en cajas Petri. Como control positivo se utilizó el fungicida Benomyl al 10 %, y el control negativo fue PDA puro. Se usó el diseño experimental completamente al azar con 19 tratamientos y tres repeticiones. El porcentaje de inhibición del crecimiento micelial de C. gloeosporioides, se registró cuando el control negativo cubrió totalmente la superficie de la caja Petri. Los datos fueron analizados con el programa estadístico SAS Ver. 9.0.

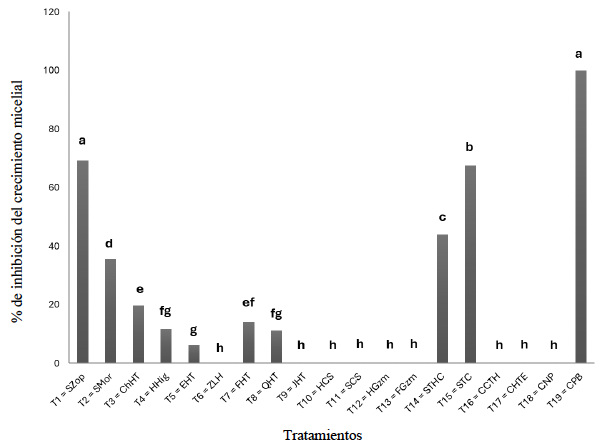
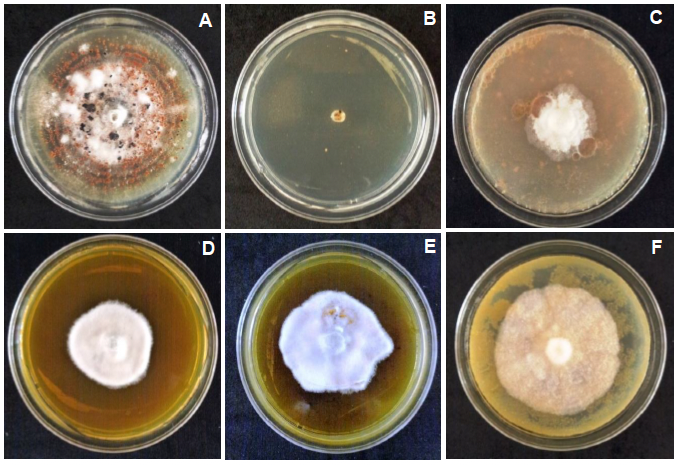
Resultados. Los mejores extractos fueron semilla de zopilote (Swietenia macrophylla), corteza de sangre de toro (Bocconia arborea), hoja-tallo de sangre de toro (B. arborea) y semilla de moringa (Moringa oleifera), al inhibir el crecimiento de C. gloeosporioides en 69.2, 67.5, 44.1 y 35.6 %, respectivamente. El control positivo Benomyl inhibió un 100 % el crecimiento de C. gloeosporioides.

Conclusión. El mejor efecto inhibitorio in vitro de Colletotrichum gloeosporioides, se obtuvo con los extractos de semillas de Swietenia macrophylla (69.2 %), seguido corteza de Bocconia arborea (67.5 %), hoja-tallo de B. arborea (44.1 %) y Moringa oleifera. (35.6 %).

Mostrar Figuras y/o Cuadros
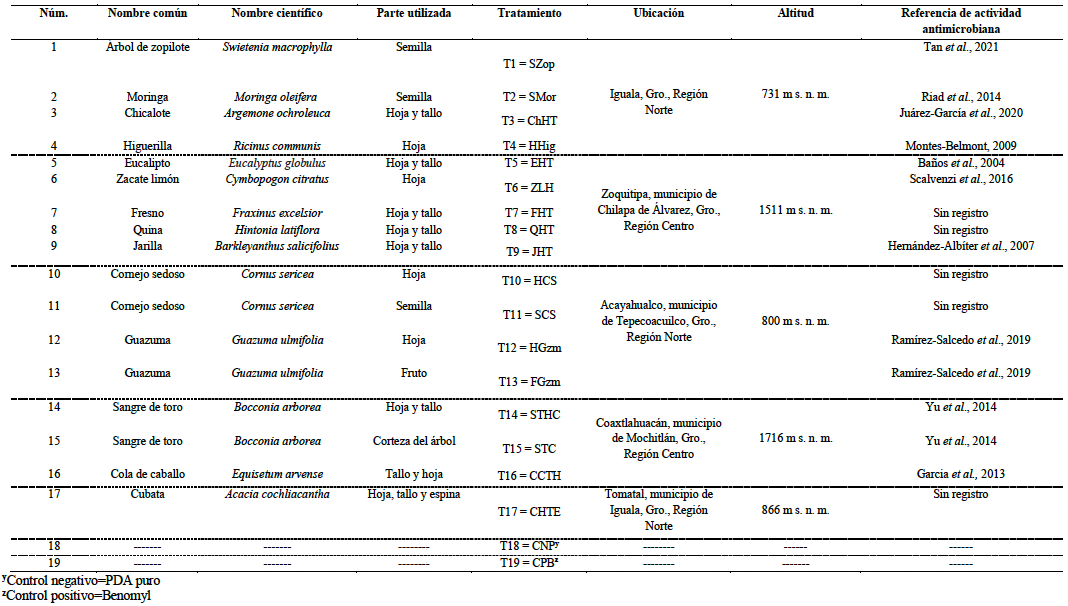
Cuadro 1. Colecta del material vegetal en la Región Centro y Norte de Guerrero y tratamientos.
Figura 1. Efecto de los extractos de 17 especies de plantas sobre el crecimiento micelial de <em>Colletotrichum gloeosporioides</em> aislamiento COLTOR1. Medias con la misma letra no son diferentes estadísticamente según la prueba LSD (p ≤ 0.5).
Figura 1. Efecto de los extractos de 17 especies de plantas sobre el crecimiento micelial de Colletotrichum gloeosporioides aislamiento COLTOR1. Medias con la misma letra no son diferentes estadísticamente según la prueba LSD (p ≤ 0.5).
Figura 2. Efecto de extractos botánicos contra <em>Colletotrichum gloeosporioides</em>. A= Control negativo (PDA) (T18); B= Control positivo (T=19) (Benomyl); C= Semilla de zopilote (<em>Swietenia macrophylla</em>) (T1 = SZop); D= Corteza de sangre de toro (<em>Bocconia arborea</em>) (T15 = STC); E= Tallo-hoja de sangre de toro (<em>B. arborea</em>) (T14 = STHC) y F= Semilla de moringa (<em>Moringa oleifera</em>) (T2 = SMor).
Figura 2. Efecto de extractos botánicos contra Colletotrichum gloeosporioides. A= Control negativo (PDA) (T18); B= Control positivo (T=19) (Benomyl); C= Semilla de zopilote (Swietenia macrophylla) (T1 = SZop); D= Corteza de sangre de toro (Bocconia arborea) (T15 = STC); E= Tallo-hoja de sangre de toro (B. arborea) (T14 = STHC) y F= Semilla de moringa (Moringa oleifera) (T2 = SMor).
  • Vol. 2026, 44(1)
  • Artículo Científico

Patogenicidad, agresividad y carga de inóculo inducidos por dos haplotipos-ITS de Neopestalotiopsis rosae, aislados de fresa (Fragaria x ananassa) y zarzamora (Rubus sp.)

PorCitlalmina Erandy Montes Hernández, Gustavo Mora Aguilera*, María Elizabeth Morales Cortés, Gerardo Acevedo Sánchez, Ángel López Zárate

Recibido: 14/junio/2024 – Publicado: 31/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2406-5

Resumen Antecedentes/Objetivo. En fresa (Fragaria x ananassa), principal frutilla-rosácea en México, se reportó recientemente en Michoacán la ocurrencia de Neopestalotiopsis rosae (Ascomycota: Sporocadaceae). El objetivo fue analizar, con un enfoque etiológico-epidemiológico, la implicación de dos haplotipos-ITS de N. rosae, asociados a cinco aislados de fresa y zarzamora (Rubus sp.) seleccionados por prevalencia regional, en la patogénesis, agresividad y carga de inóculo en fresa cv. San Andreas.

Materiales y Métodos. Tres aislados del Haplotipo 1 / Fresa (H1): F142P40S, F6P35R, F17P34R, y dos del Haplotipo 2 (H2) / Zarzamora: F142D93R y Z13P27R se cultivaron en V8 / 25° / 14 d hasta conidiomas, y en PDA / 25° / 7 d para obtención de inóculo líquido y sólido, respectivamente. Por aislado se evaluaron ochos plantas de fresa cv. San Andreas de tres meses de edad; se inocularon dos hojas trifoliadas / 4 plantas con 4 mL aspersión 1 x 10⁶ conidios mL-1, y 4 plantas con bloques de micelio 5 x 5 mm por herida en corona. En 8 plantas testigo se asperjó agua estéril. Las plantas se mantuvieron en invernadero semicubierto. A partir de 72 hdi, cada 3 d / 3 meses se midió: Número de lesiones (NL), Diámetro de lesión (DL), Núm. Lesiones esporulantes (LE), Altura planta, Diámetro de corona, y Unidades clorofila SPAD 502 (UC). Por Haplotipo se estimó el Periodo de Incubación (Pi), Periodo de Latencia (Pl), y Periodo de Generación (Pg). Cada 30 min se registró T° y HR con HOBO U23. La patogenicidad de validó con postulados de Koch. Los reaislados H1 y H2 se confirmaron culturalmente y por ITS1/ITS4. ANOVA, en Parcelas Divididas, y Tukey (p = 0.05) se ejecutó en RStudio.

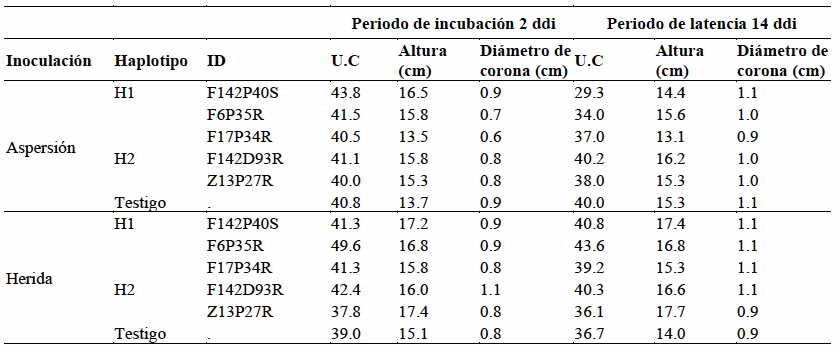
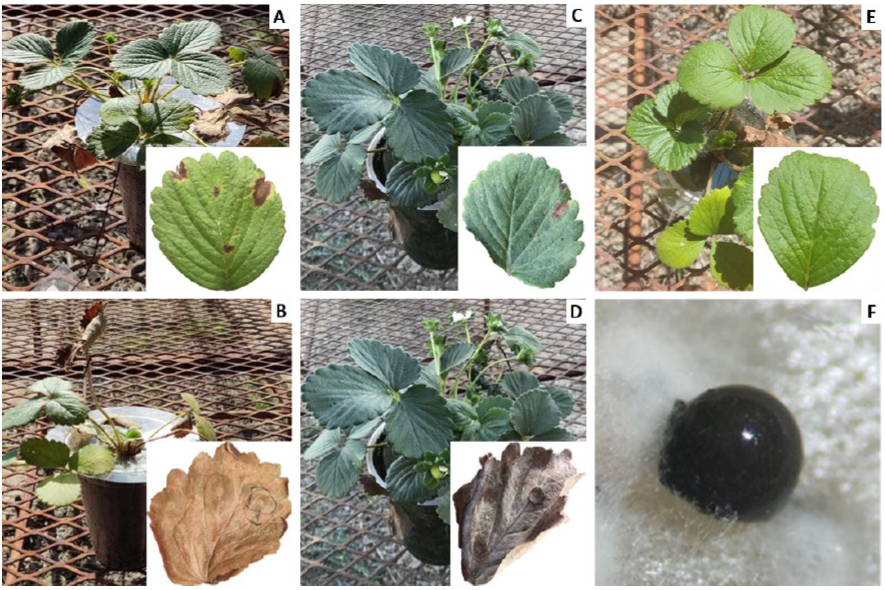
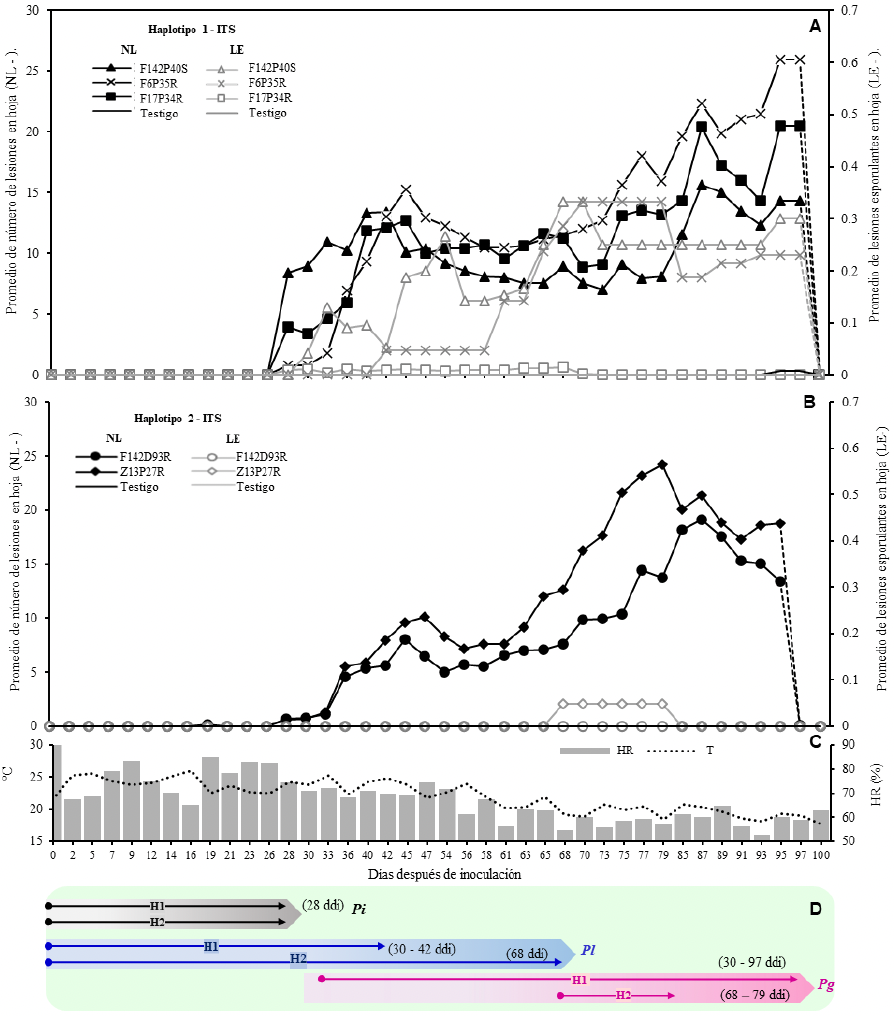
Resultados. Los cinco aislados de N. rosae fueron más infectivos en hoja (p = 0.0001), pero exhibieron agresividad variable y significativa (p = 0.0001) en NL, LE, y DL, con expresión de lesiones foliares circulares de color café claro, borde oscuro y halo rojizo en haz y envés. Aislados de H1 fueron más patogénicos respecto a H2 (p.e. 3504 vs 270 NL / planta), siendo H1 - F142P40S más agresivo (p = 0.05), con promedio de NL = 187.5 y LE = 8.45 a 2 y 26 días después de la inoculación (ddi), respectivamente. En contraste, H2 - F142D93R y H2 – Z13P27R tuvieron NL = 20 y 25 a 87 y 95 ddi, respectivamente, con máximo rango promedio de 0.19 - 0.37 LE > 73 ddi. Análogamente, en corona todos los aislamientos fueron patogénicos, pero con menor agresividad y sin diferencia estadística. Se presentó coloración rojiza - oscura y pudrición necrótica interna en corona y menor densidad de raíz. Sobresalió H1 - F17P34R con máximo NL = 20 y LE < 0.1 a 85 ddi. En hoja, la velocidad de expresión sintomática y tasa de esporulación, aunque variable, fue mayor en aislados H1 vs H2, determinados, respectivamente, por 2 vs 4 ddi Pi, 14 -16 (3 d) vs 33 – 40 (7 d) ddi Pl, y 14 – 73 (59 d) vs 33 – 56 (23 d) ddi Pg. La infección en corona fue más lenta con 28 d Pi con ambos haplotipos. La agresividad contrastante entre aislados no tuvo efecto significativo en altura - planta y diámetro – corona, pero sí en reducción de UC con máximo de 14.5 en H1 - F142P40S respecto al testigo. ITS de 33 reaislados permitieron confirmar la patogenicidad de H1 y H2.

Conclusión. A través de NL, LE, UC, Pi, Pl, y Pg, significativamente contratantes, se demostró la variabilidad patogénica de dos haplotipos-ITS de N. rosae prevalentes en Michoacán obtenidos de fresa y zarzamora. Se aborda una novel comprensión mecanística de la patogénesis, y se reporta por primera vez a N. rosae asociado a zarzamora con capacidad patogénica en fresa, pero con menor agresividad. Un manejo regional sostenible debe considerar la capacidad variable del hongo y la interacción con otros patógenos con capacidad vascular.

Mostrar Figuras y/o Cuadros
Cuadro 1. Promedio de Unidades clorofila (UC), altura de planta y diámetro de corona en plantas de fresa cv. San Andreas inoculadas por aspersión y herida con cinco aislados de <em>N. rosae.</em>
Cuadro 1. Promedio de Unidades clorofila (UC), altura de planta y diámetro de corona en plantas de fresa cv. San Andreas inoculadas por aspersión y herida con cinco aislados de N. rosae.
Figura 1. Expresión de lesiones y lesiones esporulantes en hoja de fresa cv. San Andreas inoculadas por aspersión con aislados de <em>N. rosae</em>. <strong>A</strong> y <strong>B</strong>. NL y LE a 21 días después de la inoculación (ddi) con F142P40S. <strong>C</strong> y <strong>D</strong>. Número de lesiones (NL) y Lesiones esporulantes (LE) a 77 ddi con el aislado Z13P27R <strong>E</strong>. Testigo absoluto, <strong>F</strong>. Conidioma de <em>N. rosae</em> en PDA.
Figura 1. Expresión de lesiones y lesiones esporulantes en hoja de fresa cv. San Andreas inoculadas por aspersión con aislados de N. rosae. A y B. NL y LE a 21 días después de la inoculación (ddi) con F142P40S. C y D. Número de lesiones (NL) y Lesiones esporulantes (LE) a 77 ddi con el aislado Z13P27R E. Testigo absoluto, F. Conidioma de N. rosae en PDA.
Figura 2. Corte longitudinal de corona de plantas de fresa cv. San Andreas a los 115 ddi inoculadas con <em>N. rosae</em>, F142P40S (H1) y F142D93R (H2). En inoculación por herida (B), H1 causó necrosis total. La corona muestra predominantemente cambios en la coloración de café claro a café oscuro-rojizo. En plantas testigo no se detectó cambio de coloración.
Figura 2. Corte longitudinal de corona de plantas de fresa cv. San Andreas a los 115 ddi inoculadas con N. rosae, F142P40S (H1) y F142D93R (H2). En inoculación por herida (B), H1 causó necrosis total. La corona muestra predominantemente cambios en la coloración de café claro a café oscuro-rojizo. En plantas testigo no se detectó cambio de coloración.
Figura 3. Progreso de lesión en lámina foliar de plantas de fresa cv. San Andreas inoculadas por aspersión con cinco aislados de <em>N. rosae</em> correspondientes del haplotipo H1 y H2 a los 2, 19, 40, 63 y 95 ddi. Los guiones representan pérdida de las hojas por deterioro total del tejido causado por la agresividad asociada a cada aislado. Por ejemplo, en F6P35R la perdida de hojas se alcanza en 40 ddi.
Figura 3. Progreso de lesión en lámina foliar de plantas de fresa cv. San Andreas inoculadas por aspersión con cinco aislados de N. rosae correspondientes del haplotipo H1 y H2 a los 2, 19, 40, 63 y 95 ddi. Los guiones representan pérdida de las hojas por deterioro total del tejido causado por la agresividad asociada a cada aislado. Por ejemplo, en F6P35R la perdida de hojas se alcanza en 40 ddi.
Figura 4. Análisis de varianza (Tukey, p < 0.05) en parcelas divididas, donde parcela grande es el método de inoculación y la parcela chica el aislado para las variables número de lesiones (<strong>A</strong>) y lesiones esporulantes (<strong>B</strong>). Letras diferentes muestran diferencias significativas con α = 0.05.
Figura 4. Análisis de varianza (Tukey, p < 0.05) en parcelas divididas, donde parcela grande es el método de inoculación y la parcela chica el aislado para las variables número de lesiones (A) y lesiones esporulantes (B). Letras diferentes muestran diferencias significativas con α = 0.05.
Figura 5. Dinámica de número de lesiones (NL) y lesiones esporulantes (LE) en hojas de fresa cv. San Andreas hasta 95 días por aspersión con cinco aislados de <em>N. rosae</em> obtenidos de fresa (F) y zarzamora (Z), <strong>A</strong>. Promedio absoluto de NL y LE de tres aislados del Haplotipo 1 (H1). <strong>B</strong>. Promedio absoluto de NL y LE en dos aislados del Haplotipo 2 (H2), <strong>C</strong>. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días <strong>D</strong>. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de <em>N. rosae</em>.
Figura 5. Dinámica de número de lesiones (NL) y lesiones esporulantes (LE) en hojas de fresa cv. San Andreas hasta 95 días por aspersión con cinco aislados de N. rosae obtenidos de fresa (F) y zarzamora (Z), A. Promedio absoluto de NL y LE de tres aislados del Haplotipo 1 (H1). B. Promedio absoluto de NL y LE en dos aislados del Haplotipo 2 (H2), C. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días D. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de N. rosae.
Figura 6. Dinámica de lesiones (NL) y lesiones esporulantes (LE) en hoja hasta 95 ddi por herida en corona con cinco aislados de <em>N. rosae</em> obtenidos de fresa (F) y zarzamora (Z), <strong>A</strong>. Promedio absoluto de NL y LE de tres aislados del H1, <strong>B</strong>. Promedio absoluto de NL y LE de dos aislados del H2, <strong>C</strong>. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días, <strong>D</strong>. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de <em>N. rosae.</em>
Figura 6. Dinámica de lesiones (NL) y lesiones esporulantes (LE) en hoja hasta 95 ddi por herida en corona con cinco aislados de N. rosae obtenidos de fresa (F) y zarzamora (Z), A. Promedio absoluto de NL y LE de tres aislados del H1, B. Promedio absoluto de NL y LE de dos aislados del H2, C. Asociación de HR y T °C con el comportamiento del hongo sobre tejido hasta 100 días, D. Estimación de periodo de incubación (Pi), periodo de latencia (Pl) y periodo de generación (Pg) por haplotipo de N. rosae.
  • Vol. 2026, 44(1)
  • Artículo Científico

Distribución de Candidatus Liberibacter asiaticus en dosel y raíz de Citrus sinensis en una condición asintomática

PorGustavo Mora Aguilera*, Gerardo Acevedo Sánchez, Verónica Martínez Bustamante, Viridiana López Bautista, Ma. Alejandra Gutiérrez Espinosa, Pedro Robles García

Recibido: 20/junio/2025 – Publicado: 27/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2506-2

Resumen Antecedentes/Objetivo. El presente estudio analizó por primera vez la condición asintomática inducida por CLas en Citrus sinensis / C. aurantium a partir de primeros reportes en la región Centro Golfo de México. El objetivo fue analizar con un enfoque mecanístico la concentración espacio-temporal de CLas a nivel planta en condición de huertos comerciales para demostrar la posible implicación de un prolongado periodo de incubación (PI) en la expresión asintomática de HLB.

Materiales y Métodos. Se confinaron dos de tres árboles (A1-A3) (>30 años) de naranjo dulce Valencia asintomáticos positivos a CLas, identificados mediante protocolos oficiales de diagnóstico en San José Acateno, Puebla. En los árboles A2 y A3 se marcaron 13 y 16 ramas secundarias, con un total de 112 y 108 muestras follaje/colecta, respectivamente (total 1540 muestras), obtenidas de la parte distal y proximal de cada rama. Se realizaron siete muestreos mensuales de material vegetal entre mayo-diciembre. A nivel raíz se muestrearon tres categorías por diámetro/función y por combinación de seis sectores distales del tronco (0-280 cm) por 4 de profundidad (0 x 110 cm) con un total de 111 muestras. La extracción de ADN se realizó con CTAB 2 % y cuantificación por qPCR (oligos, HLBp/HLBas).

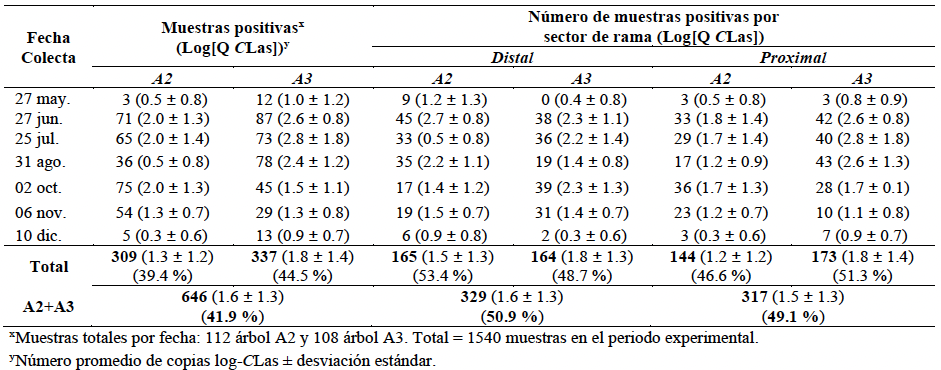
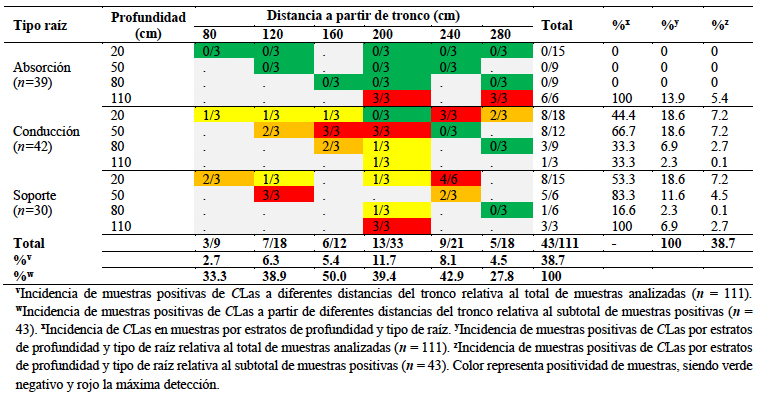
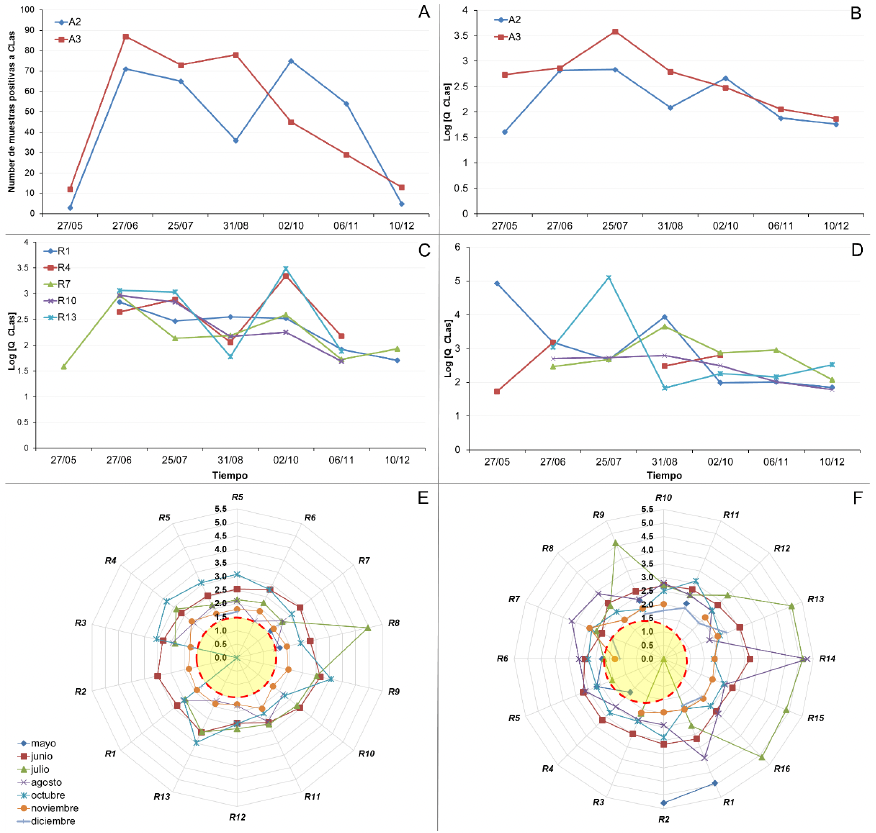
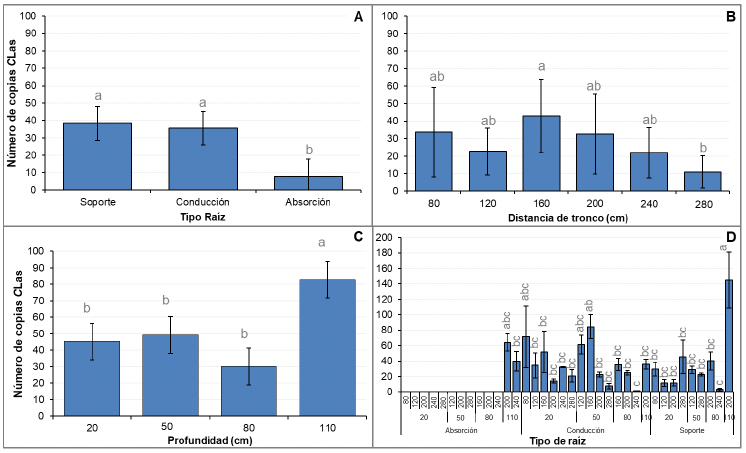
Resultados. En dosel, la incidencia/ramas en A3 fue 52.2 % (Ct = 22.7 – 34.9) y A2 47.8 % (Ct = 23.4 – 35) sin diferencia estadística (p = 0.48). La carga de inóculo fue 1.6 (±1.3) log-CLas, equivalente a 109 copias/reacción en 100 mL (rango en número de copias 6.3 a 68 870.7). CLas no fue diferente entre muestras distales (1.6 log) y proximales (1.5 log) (p = 0.33). Se encontró fluctuación temporal entre junio – octubre de muestras positivas (37 – 87, p < 0.0001) y de concentración de CLas (1.6 - 3.5 log-CLas, p > 0.72). La distribución de CLas por rama tuvo efecto temporal (p = 0.0001) y por sectores (p = 0.07) evidenciando alta movilidad y estacionalidad. La concentración máxima (Ymax) se encontró asociada al sector medio-superior del dosel, y de alta movilidad hacia sectores inferior y superior en Yinicial y Yfinal. En raíz, se encontró 38.7 % de positividad. La detectabilidad de CLas fue homogénea entre los tipos de raíz (p < 0.0001) pero variable en concentración (p = 0.04). El 47.6, 15.4 y 38.7 % de incidencia en raíz se asoció con 38.3, 43.4 y 9.5 promedio de copias CLas para soporte, conducción y absorción, respectivamente (p = 0.0001). Dos secciones de mayor intensidad-concentración de CLas (80 – 144 copias) se asociaron a raíz en zona media de goteo (160 - 240 cm) y estratos de profundidad medios (50 - 80 cm).

Conclusión. CLas se detectó significativa y consistentemente en tejido vegetal y raíz durante todo el periodo experimental, pero a concentraciones fluctuantes, no incrementales, y análoga entre árboles A2 y A3. La amplia distribución en dosel-raíz sugiere un efecto crónico sistémico. En consecuencia, el periodo de incubación no determina la condición asintomática en el sistema productivo naranjo dulce/naranjo agrio investigado. Otros factores, p.e. inherentes a la variabilidad del patógeno, podrían estar implicados. Estos resultados contribuyen a optimizar un sistema de vigilancia-monitoreo considerando estacionalidad, zona-rama, sector-dosel y tipo de tejido, con mayor probabilidad de detección de CLas aun en una eventual condición asintomática y generan nuevas perspectivas de manejo de CLas. Este es el primer trabajo que analiza PI mecanísticamente, a nivel dosel – raíz, las detecciones iniciales de HLB-asintomático en México en árboles productivos adultos de Valencia C. sinensis / C. aurantium en condiciones de campo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Comparación del número de muestras positivas por qPCR en siete muestreos mensuales realizados en árboles HLB-asintomáticos de Valencia <em>C. sinensis</em> (A2 y A3) durante mayo – diciembre y distribución de carga de inóculo (<em>C</em>Las) por sección proximal y distal de ramas seleccionadas y marcadas para monitoreo bacteriano.
Cuadro 1. Comparación del número de muestras positivas por qPCR en siete muestreos mensuales realizados en árboles HLB-asintomáticos de Valencia C. sinensis (A2 y A3) durante mayo – diciembre y distribución de carga de inóculo (CLas) por sección proximal y distal de ramas seleccionadas y marcadas para monitoreo bacteriano.
Cuadro 2. Número y porcentaje de muestras positivas en árbol A3 a <em>Candidatus</em> Liberibacter asiaticus en <em>C. sinensis</em> / <em>C. aurantium</em> respecto al tipo de raíz, cuatro profundidades de suelo y seis distancias a partir de tronco.
Cuadro 2. Número y porcentaje de muestras positivas en árbol A3 a Candidatus Liberibacter asiaticus en C. sinensis / C. aurantium respecto al tipo de raíz, cuatro profundidades de suelo y seis distancias a partir de tronco.
Figura 1. Estructura de Confinamiento por árbol, HLB-asintomático qPCR <em>C</em>Las positivo, de naranja Valencia <em>Citrus sinensis</em> / <em>C. aurantium</em>. <strong>A</strong>. Estructura metálica de confinamiento (8 x 8 x 8 m) con malla antiáfidos. Las estructuras incluyeron una puerta de acceso restringido mediante llaves; <strong>B</strong>. Sensor HOBO U23 Pro V2 de temperatura (°C) y humedad relativa (HR), programado para mediciones a intervalos de 30 min dentro del área confinada; <strong>C</strong>. Estación climática Davis Vantage para medición de variables climáticas complementarias como precipitación, velocidad y dirección de viento, evapotranspiración, etc.
Figura 1. Estructura de Confinamiento por árbol, HLB-asintomático qPCR CLas positivo, de naranja Valencia Citrus sinensis / C. aurantium. A. Estructura metálica de confinamiento (8 x 8 x 8 m) con malla antiáfidos. Las estructuras incluyeron una puerta de acceso restringido mediante llaves; B. Sensor HOBO U23 Pro V2 de temperatura (°C) y humedad relativa (HR), programado para mediciones a intervalos de 30 min dentro del área confinada; C. Estación climática Davis Vantage para medición de variables climáticas complementarias como precipitación, velocidad y dirección de viento, evapotranspiración, etc.
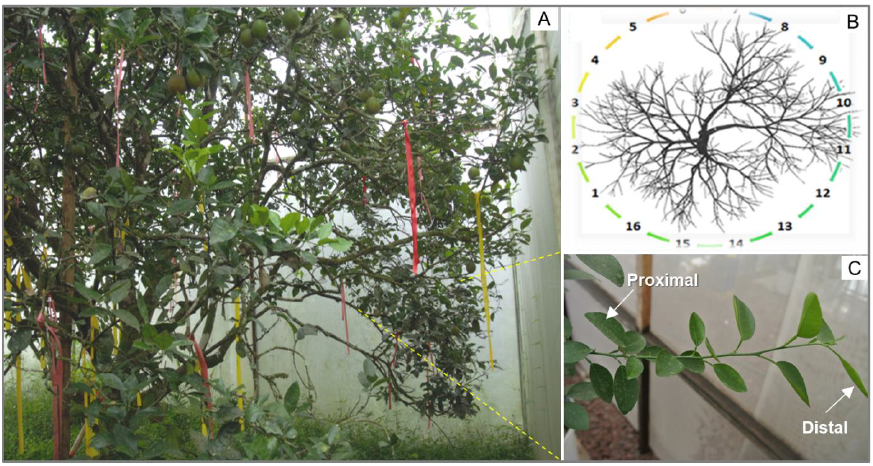
Figura 2. <strong>A</strong>. Árbol Valencia <em>C. sinensis</em> / <em>C. aurantium</em> HLB-asintomático <em>C</em>Las-positivo confinado en jaulas con malla antiáfidos. Los listones rojos y amarillos muestran la selección y marcaje de ramas primarias (rojo) y secundarias (amarillo) para muestreo mensual en sección proximal o distal de mayo a diciembre. <strong>B</strong>. Ejemplificación de método para la numeración de ramas en el orden de las manecillas de reloj. <strong>C</strong>. Estructura de una rama de cítricos para selección de hojas proximales y distales. Se colectaron un total de 1 540 muestras / árboles A2 y A3.
Figura 2. A. Árbol Valencia C. sinensis / C. aurantium HLB-asintomático CLas-positivo confinado en jaulas con malla antiáfidos. Los listones rojos y amarillos muestran la selección y marcaje de ramas primarias (rojo) y secundarias (amarillo) para muestreo mensual en sección proximal o distal de mayo a diciembre. B. Ejemplificación de método para la numeración de ramas en el orden de las manecillas de reloj. C. Estructura de una rama de cítricos para selección de hojas proximales y distales. Se colectaron un total de 1 540 muestras / árboles A2 y A3.
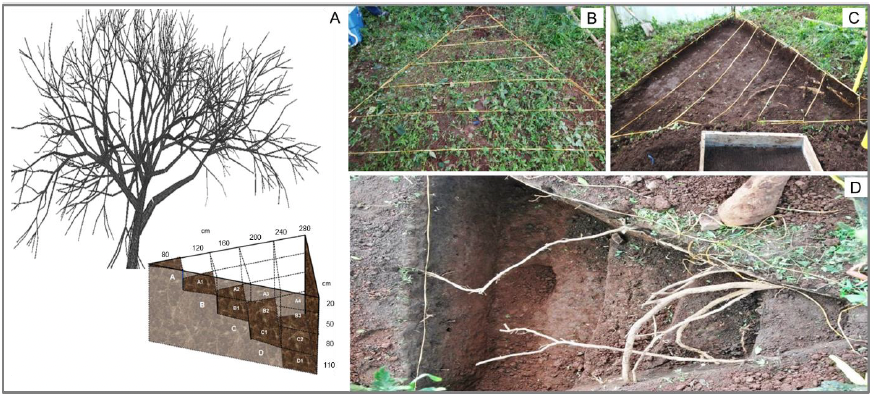
Figura 3. Sistema de muestreo 3D-seccional para la colecta de raíz en árbol A3, HLB-asintomático qPCR positivo, de <em>C. sinensis</em> / <em>C. aurantium</em>. A. Diseño utilizado para colecta de raíz considerando la distancia proximal al tronco y hasta zona de goteo (0 - 280 cm) y cuatro profundidades (0 – 110 cm). B. Diseño y marcado de los estratos de excavación. C. Delimitación de la zona de excavación y cernido de tierra de los distintos estratos. D. Estratos excavados y muestreados para la selección de muestras de tres tipos de raíz para cuantificación de <em>C</em>Las por qPCR. Un total de 24 bloques de suelo fueron muestreadas (6 x 4) y 111 muestras qPCR-analizadas.
Figura 3. Sistema de muestreo 3D-seccional para la colecta de raíz en árbol A3, HLB-asintomático qPCR positivo, de C. sinensis / C. aurantium. A. Diseño utilizado para colecta de raíz considerando la distancia proximal al tronco y hasta zona de goteo (0 - 280 cm) y cuatro profundidades (0 – 110 cm). B. Diseño y marcado de los estratos de excavación. C. Delimitación de la zona de excavación y cernido de tierra de los distintos estratos. D. Estratos excavados y muestreados para la selección de muestras de tres tipos de raíz para cuantificación de CLas por qPCR. Un total de 24 bloques de suelo fueron muestreadas (6 x 4) y 111 muestras qPCR-analizadas.
Figura 4. <strong>A</strong>. Número de muestras qPCR <em>C</em>Las positivas por árbol (A2 y A3) detectadas en siete fechas de muestreo mensuales de Valencia <em>C. sinensis</em> / <em>C. aurantium</em> HLB-asintomáticos. <strong>B</strong>. Fluctuación temporal de la concentración bacteriana en 21 ramas totales de los árboles A2 y A3. <strong>C</strong>-<strong>D</strong>. Fluctuación temporal de <em>C</em>Las a nivel de rama. Se muestra el ejemplo de 5/13 ramas para A2 (<strong>C</strong>) y 5/16 para A3 (<strong>D</strong>). <strong>E</strong>-<strong>F</strong>. Fluctuación temporal de <em>C</em>Las por rama y árbol A2 (<strong>E</strong>) y A3(<strong>F</strong>). Círculo punteado en rojo muestra el umbral (<em>log</em>-<em>C</em>Las) mínimo para cuantificación de copias de <em>C</em>Las en muestras positivas.
Figura 4. A. Número de muestras qPCR CLas positivas por árbol (A2 y A3) detectadas en siete fechas de muestreo mensuales de Valencia C. sinensis / C. aurantium HLB-asintomáticos. B. Fluctuación temporal de la concentración bacteriana en 21 ramas totales de los árboles A2 y A3. C-D. Fluctuación temporal de CLas a nivel de rama. Se muestra el ejemplo de 5/13 ramas para A2 (C) y 5/16 para A3 (D). E-F. Fluctuación temporal de CLas por rama y árbol A2 (E) y A3(F). Círculo punteado en rojo muestra el umbral (log-CLas) mínimo para cuantificación de copias de CLas en muestras positivas.
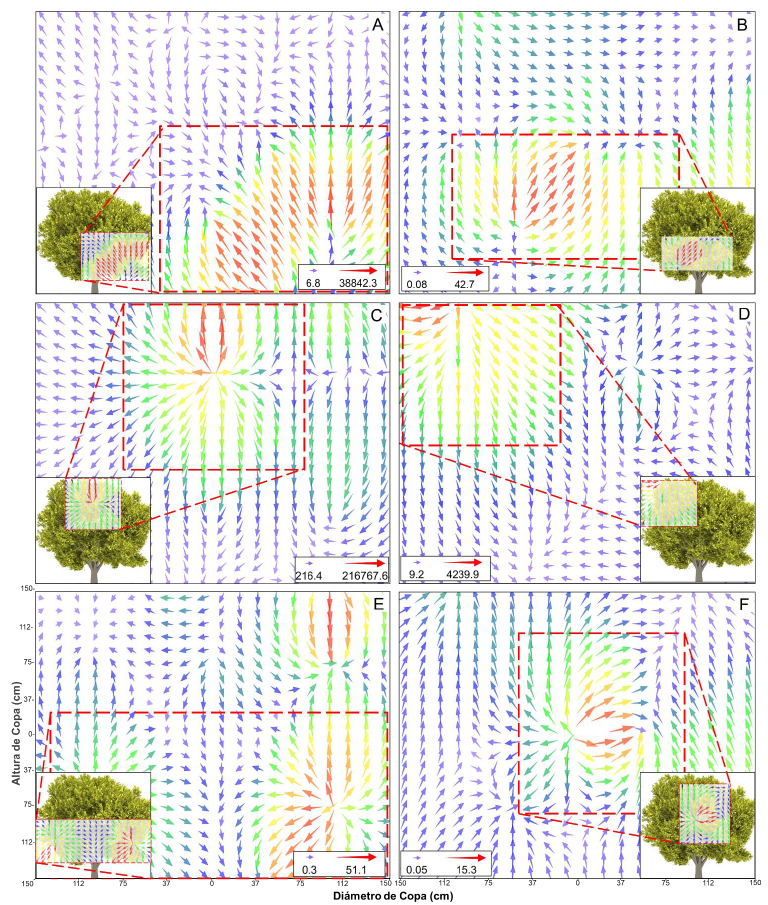
Figura 5. Distribución y movimiento espacial de <em>C</em>Las en dosel de árboles HLB-asintomáticos Valencia <em>C. sinensis</em> / <em>C. aurantium</em>. <strong>A</strong>, <strong>C</strong>, y <strong>E</strong>. Mapa de interpolación vectorial que representa la carga bacteriana y la direccionalidad para tres momentos epidémicos: <strong><em>Y<sub>i</sub></em> </strong>(mayo), <strong><em>Y<sub>max</sub></em> </strong>(julio) e <strong><em>Y<sub>f</sub> </em></strong>(diciembre), respectivamente, en <strong>árbol</strong> <strong>A3</strong>; y <strong>B</strong>, <strong>D</strong>, y<strong> F</strong> para el <strong>árbol</strong> <strong>A2</strong>. El tamaño y color de los vectores muestran la tendencia espacial y direccional de carga de inóculo. En cuadros inferiores, el número de copias se relaciona con el tamaño y el color de las flechas como medida de referencia. La direccionalidad del vector simula el movimiento bacteriano en dosel. Los recuadros punteados resaltan mayor concentración espacial de <em>C</em>Las.
Figura 5. Distribución y movimiento espacial de CLas en dosel de árboles HLB-asintomáticos Valencia C. sinensis / C. aurantium. A, C, y E. Mapa de interpolación vectorial que representa la carga bacteriana y la direccionalidad para tres momentos epidémicos: Yi (mayo), Ymax (julio) e Yf (diciembre), respectivamente, en árbol A3; y B, D, y F para el árbol A2. El tamaño y color de los vectores muestran la tendencia espacial y direccional de carga de inóculo. En cuadros inferiores, el número de copias se relaciona con el tamaño y el color de las flechas como medida de referencia. La direccionalidad del vector simula el movimiento bacteriano en dosel. Los recuadros punteados resaltan mayor concentración espacial de CLas.
Figura 6. <strong>A</strong>. Cuantificación de <em>C</em>Las por tipo de raíz: <em>soporte</em>, <em>conducción</em> y <em>absorción</em> en árbol A3 HLB-asintomático <em>C. sinensis</em> / <em>C. aurantium</em>. <strong>B</strong>. Cuantificación de <em>C</em>Las en seis distancias seccionales del tronco entre 80 y 240 cm. <strong>C</strong>. Cuantificación de <em>C</em>Las en cuatro profundidades seccionales de suelo entre 20 – 110 cm. <strong>D</strong>. Cuantificación de <em>C</em>Las integrando los tres factores tipo de raíz, distancia y profundidad. Barras de desviación estándar con letras distintas fueron estadísticamente diferentes mediante ANOVA y comparación de medias <em>Tukey</em> (<em>p</em> = 0.05).
Figura 6. A. Cuantificación de CLas por tipo de raíz: soporte, conducción y absorción en árbol A3 HLB-asintomático C. sinensis / C. aurantium. B. Cuantificación de CLas en seis distancias seccionales del tronco entre 80 y 240 cm. C. Cuantificación de CLas en cuatro profundidades seccionales de suelo entre 20 – 110 cm. D. Cuantificación de CLas integrando los tres factores tipo de raíz, distancia y profundidad. Barras de desviación estándar con letras distintas fueron estadísticamente diferentes mediante ANOVA y comparación de medias Tukey (p = 0.05).
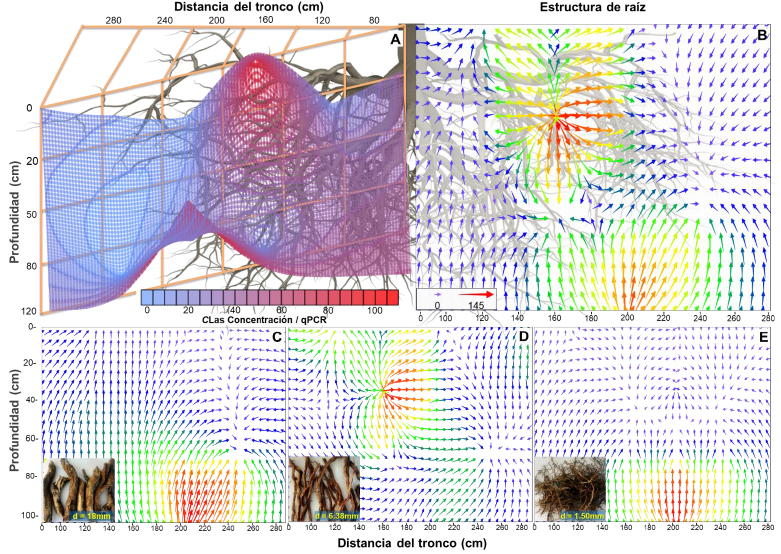
Figura 7. <strong>A</strong>. Análisis geoestadístico <em>3D wireframe</em> de la cuantificación de <em>C</em>Las asociado a un sistema de muestreo 3D-seccional en raíces de <em>soporte</em> (d = 18 mm), <em>conducción</em> (d = 6.3 mm) y <em>absorción</em> (d = 1.5 mm) en árbol A3 Valencia <em>C. sinensis</em> / <em>C. aurantium</em>. <strong>B</strong>-<strong>E</strong>. Análisis geoestadístico <em>Grid Vector</em> Map para representar la movilidad de la carga bacteriana de <em>C</em>Las en muestras de raíces totales (<strong>B</strong>), <em>soporte</em> (<strong>C</strong>), <em>conducción</em> (<strong>D</strong>) y <em>absorción</em> (<strong>E</strong>). Los vectores muestran en tamaño y color la carga de inóculo por región del tipo de raíz analizada. La direccionalidad y magnitud (tamaño) del vector simula la movilización e intensidad de movilidad de <em>C</em>Las a nivel de la estructura de raíz. En el cuadro inferior (B), el número de copias de bacterias se relaciona con el tamaño y el color de flechas como medida de referencia.
Figura 7. A. Análisis geoestadístico 3D wireframe de la cuantificación de CLas asociado a un sistema de muestreo 3D-seccional en raíces de soporte (d = 18 mm), conducción (d = 6.3 mm) y absorción (d = 1.5 mm) en árbol A3 Valencia C. sinensis / C. aurantium. B-E. Análisis geoestadístico Grid Vector Map para representar la movilidad de la carga bacteriana de CLas en muestras de raíces totales (B), soporte (C), conducción (D) y absorción (E). Los vectores muestran en tamaño y color la carga de inóculo por región del tipo de raíz analizada. La direccionalidad y magnitud (tamaño) del vector simula la movilización e intensidad de movilidad de CLas a nivel de la estructura de raíz. En el cuadro inferior (B), el número de copias de bacterias se relaciona con el tamaño y el color de flechas como medida de referencia.
  • Vol. 2026, 44(1)
  • Artículo de Revisión

Alternaria en México: Caracterización morfológica y molecular, enfermedades asociadas y estrategias de manejo

PorNahomy Monserrat Escalera Mares, Juan Daniel Lira Morales, Edith Salazar Villa, Lorena Molina Cárdenas, Indira Rojo Báez*

Recibido: 10/julio/2024 – Publicado: 27/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2024-32

Resumen Justificación. En el género Alternaria destacan especies fitopatógenas que ocasionan enfermedades como la mancha y tizón foliar en hospedantes como frutales, cereales, hortalizas, plantas ornamentales, cuya consecuencia son las pérdidas económicas. A pesar de esta problemática, la información acerca del género Alternaria en México es limitada y se encuentra dispersa. Por lo que el objetivo de esta revisión fue describir la situación actual del género Alternaria en México mediante una recopilación de estudios publicados acerca de la caracterización de especies patógenas reportadas, las enfermedades que causan en plantas y las diversas estrategias de control.

Marco teórico y experimental. La identificación tradicional del género Alternaria se basa en características morfológicas observadas en cultivos, aunque la variabilidad intra e interespecífica limita su precisión. Por ello, se emplean herramientas moleculares como PCR, secuenciación y análisis filogenéticos que han permitido diferenciar especies y establecer relaciones evolutivas más precisas. En México, este género afecta más de 20 hospederos agrícolas y ornamentales en 15 estados, causando enfermedades en crisantemo, papayo, cactáceas, brócoli, chile y tomate, con incidencias que superan el 40 % en algunos cultivos. Su manejo requiere un enfoque integrado que combine diagnóstico preciso, uso racional de fungicidas, estrategias basadas en la fenología del cultivo y la densidad del inóculo, además de alternativas sostenibles como el control biológico, extractos vegetales, microalgas y nanopartículas, que han mostrado alta eficacia y menor impacto ambiental.

Conclusiones y Perspectivas. En México se han reportado nueve especies que afectan a 23 hospederos cultivables, aunque aún existen vacíos de información en especies ornamentales, forestales y nativas. Las principales dificultades para su control se deben al diagnóstico incorrecto de las enfermedades, lo que limita la aplicación de estrategias efectivas.

Mostrar Figuras y/o Cuadros
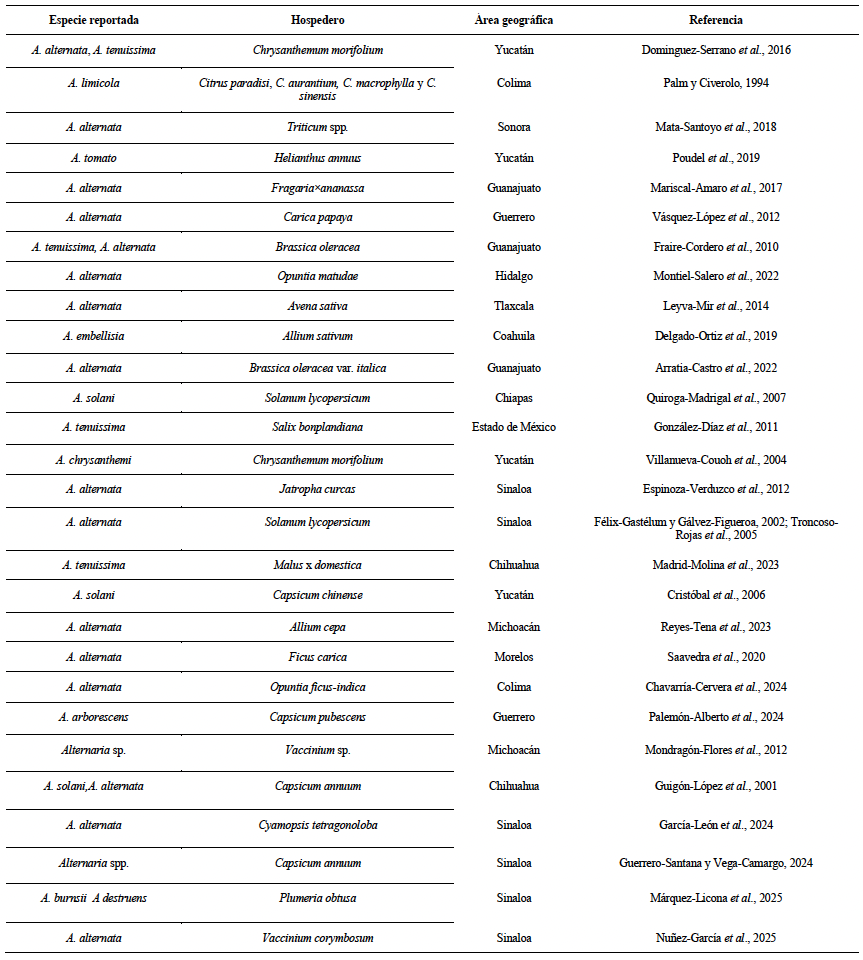
Cuadro 1. Especies fitopatógenas de <em>Alternaria</em> reportadas en cultivos en México.
Cuadro 1. Especies fitopatógenas de Alternaria reportadas en cultivos en México.
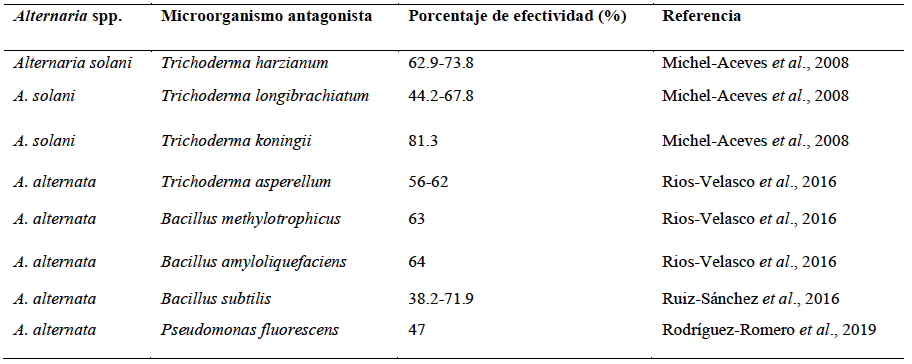
Cuadro 2. Efectividad <em>in vitro</em> de microorganismos antagonistas contra <em>Alternaria</em> spp.
Cuadro 2. Efectividad in vitro de microorganismos antagonistas contra Alternaria spp.
Figura 1. Conidios de <em>Alternaria alternata</em>. Tomado de Montiel-Salero <em>et al</em>. (2022).
Figura 1. Conidios de Alternaria alternata. Tomado de Montiel-Salero et al. (2022).
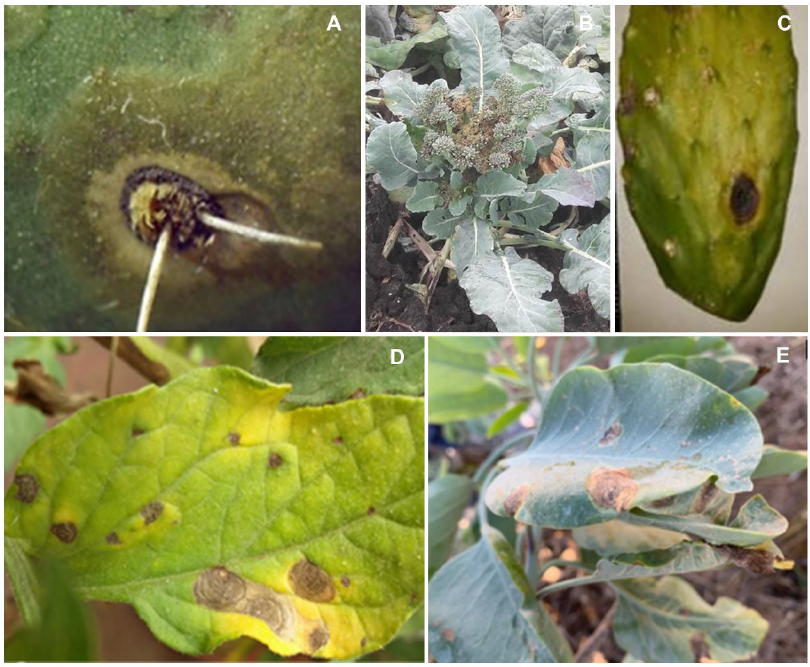
Figura 2. Diversidad de enfermedades asociadas a <em>Alternaria</em> spp. A) Síntomas de mancha dorada en <em>Opuntia matudae</em> causadas por <em>A. alternata</em> (Tomado de Montiel-Salero <em>et al</em>., 2022); B) Síntoma de pudrición del florete de brócoli por <em>A. alternata</em> (Tomado de Arratia-Castro <em>et al</em>., 2022); C) Síntoma de mancha negra en <em>Opuntia ficus-indica</em> por <em>A. alternata</em> (Tomado de Chavarría-Cervera <em>et al.</em>, 2024); D) Síntomas causados por <em>Alternaria</em> sp. en tabaco silvestre y E) en tabaco (<em>Nicotiana glauca</em>) (Tomado de Félix-Gastélum <em>et al</em>., 2023).
Figura 2. Diversidad de enfermedades asociadas a Alternaria spp. A) Síntomas de mancha dorada en Opuntia matudae causadas por A. alternata (Tomado de Montiel-Salero et al., 2022); B) Síntoma de pudrición del florete de brócoli por A. alternata (Tomado de Arratia-Castro et al., 2022); C) Síntoma de mancha negra en Opuntia ficus-indica por A. alternata (Tomado de Chavarría-Cervera et al., 2024); D) Síntomas causados por Alternaria sp. en tabaco silvestre y E) en tabaco (Nicotiana glauca) (Tomado de Félix-Gastélum et al., 2023).
Figura 3. Mecanismos de acción de los principales agentes de control biológico (PK: Policétidos; NRPS: moléculas peptídicas de síntesis no ribosomal).
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Actividad antimicrobiana y cuantificación de ricinina en Ricinus communis frente a bacterias fitopatógenas

PorMiguel Angel Angulo Escalante, Isabel Cruz Lachica, Edith Salazar Villa, Indira Rojo Báez, Federico Soto Landeros, Isidro Márquez Zequera, Karla Marina Báez Parra*

Recibido: 16/octubre/2024 – Publicado: 22/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2410-3

Resumen Antecedentes/Objetivo. Los metabolitos de higuerilla o ricino (Ricinus communis), como el alcaloide ricinina, tienen propiedades antibacterianas con potencial para combatir bacterias fitopatógenas como Xanthomonas perforans, Acidovorax citrulli, Clavibacter michiganensis y Ralstonia solanacearum, convirtiéndolo en una alternativa natural a los químicos convencionales. Por ello, el objetivo de este trabajo fue evaluar la actividad antimicrobiana de extractos metanólicos de hojas de accesiones de ricino y cuantificar la ricinina mediante HPTLC para determinar su efectividad como agente bactericida.

Desarrollo experimental. Las hojas de nueve accesiones de higuerilla fueron molidas y tamizadas para preparar extractos metanólicos codificados como: clave 1+, 2+, 4+, 5+, 6+, 7+, 8+, 9+ y 10+. La ricinina en los extractos se cuantificó por HPTLC. Para determinar la actividad antibacteriana se reactivaron y cultivaron en medio selectivo las bacterias fitopatógenas Xanthomonas perforans, Acidovorax citrulli, Clavibacter michiganensis subsp. michiganensis, y Ralstonia solanacearum con concentraciones de los extractos al 100, 75, 50 y 25 % y un control químico Finalbacter® (Sulfato de Gentamicina y Clorhidrato de Oxitetraciclina), el análisis se realizó por triplicado.

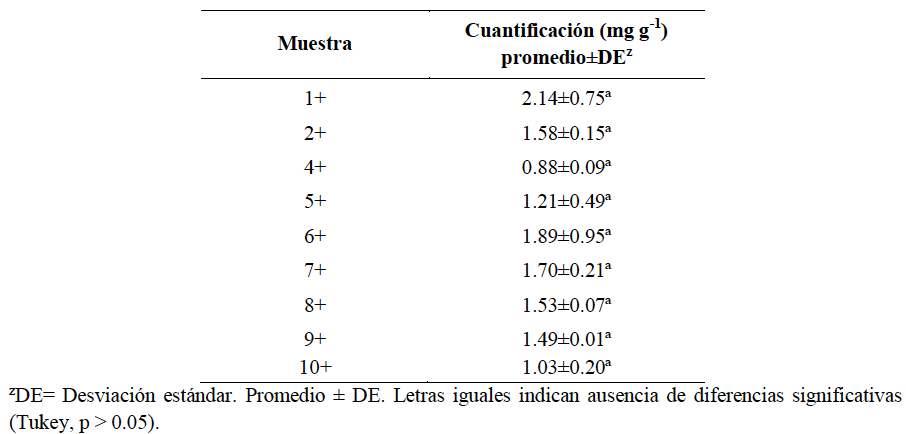
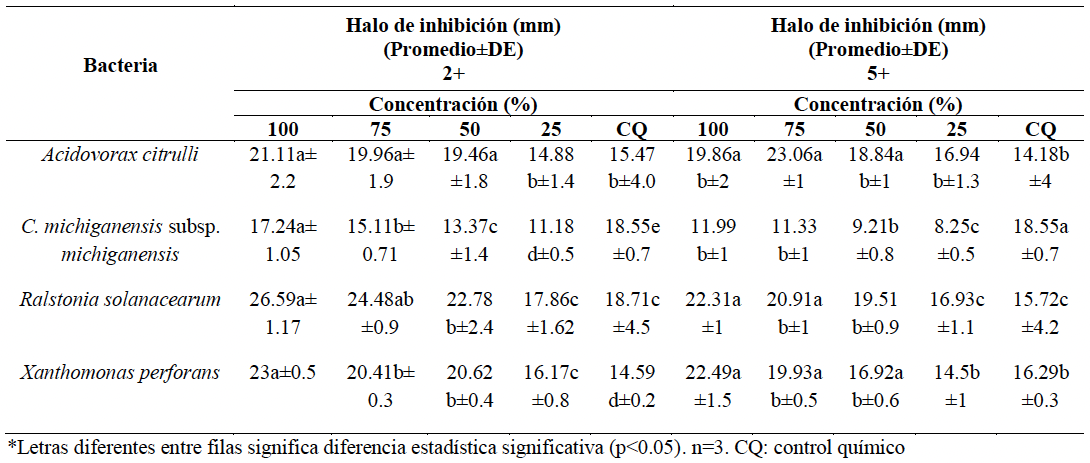
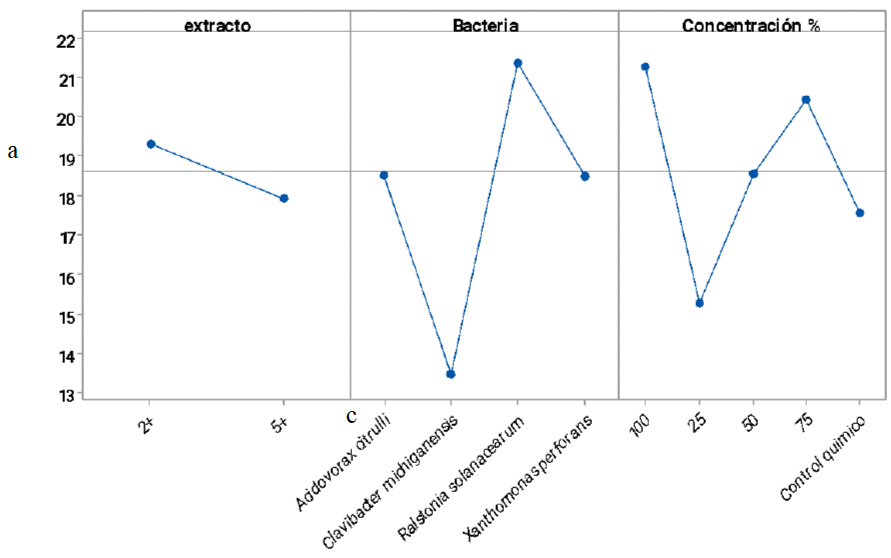
Resultados. Los extractos identificados como 2+ y 5+ demostraron ser los más efectivos, con un halo de inhibición de 18.94 mm y 17.23 mm, respectivamente. Ralstonia solanacearum mostró la mayor inhibición (21.6 mm), seguido por A. citrulli y X. perforans (19.26 mm cada uno) y C. michiganensis subsp. michiganensis (12.21 mm). Las concentraciones del 100 y 75 % presentaron los mayores halos de inhibición (20.6 mm y 19.8 mm), en comparación con las concentraciones más bajas y el control químico. Se cuantificaron concentraciones de ricinina de 0.88 a 2.14 mg g⁻¹.

Conclusión. Las accesiones 2+ y 5+ de Ricinus communis, mostraron potencial como una opción natural para el control de bacterias fitopatogénicas, con un promedio de 19.31 mm y 17.92 mm de halo de inhibición respectivamente.

Mostrar Figuras y/o Cuadros
Cuadro 1. Cuantificación de ricinina en extractos metanólicos de hojas de nueve accesiones de higuerilla.
Cuadro 2. Actividad antimicrobiana de extractos metanólicos de las accesiones 2+ y 5+ de <em>Ricinus communis</em> sobre bacterias asociadas a enfermedades en plantas.
Cuadro 2. Actividad antimicrobiana de extractos metanólicos de las accesiones 2+ y 5+ de Ricinus communis sobre bacterias asociadas a enfermedades en plantas.
Figura 1. Gráfica de efectos principales de los extractos metanólicos de hojas de higuerilla, bacterias (<em>Xanthomonas perforans</em>, <em>Acidovorax citrulli</em>, <em>Clavibacter michiganensis</em> subsp. <em>michiganensis</em> y <em>Ralstonia solanacearum</em>) y concentraciones de los extractos. Letras diferentes entre secciones significa diferencia estadística.
Figura 1. Gráfica de efectos principales de los extractos metanólicos de hojas de higuerilla, bacterias (Xanthomonas perforans, Acidovorax citrulli, Clavibacter michiganensis subsp. michiganensis y Ralstonia solanacearum) y concentraciones de los extractos. Letras diferentes entre secciones significa diferencia estadística.
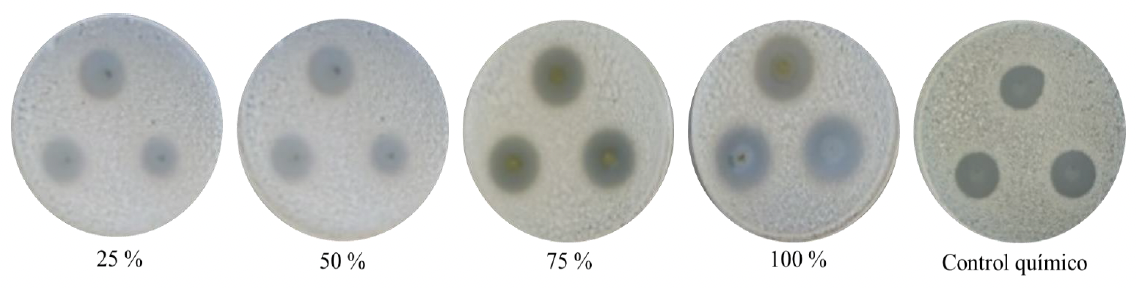
Figura 2. Actividad antibacteriana del extracto 2+ contra <em>Ralstonia solanacearum</em>. Se observaron zonas claras de inhibición a diferentes concentraciones del extracto (25, 50, 75 y 100 %), en comparación con el control químico.
Figura 2. Actividad antibacteriana del extracto 2+ contra Ralstonia solanacearum. Se observaron zonas claras de inhibición a diferentes concentraciones del extracto (25, 50, 75 y 100 %), en comparación con el control químico.
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Comportamiento espacial de mancha de hierro (Mycosphaerella coffeicola) en café, en Amatepec, Estado de México

PorJosé Francisco Ramírez Dávila, Fidel Lara Vázquez*, Dulce Karen Figueroa Figueroa, María Teresa Lugo Coyote

Recibido: 14/marzo/2025 – Publicado: 20/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2212-5

Resumen Antecedentes/Objetivo. La producción de café en el Estado de México, particularmente en el municipio de Amatepec, es amenazada por diferentes enfermedades como la mancha de hierro (Mycosphaerella coffeicola), esta enfermedad foliar impacta negativamente en la calidad y rendimiento. El objetivo fue modelar la distribución espacial de la mancha de hierro en cafetales de Amatepec mediante estadística clásica y geoestadística, estimando la superficie infectada para evaluar económicamente las estrategias de manejo.

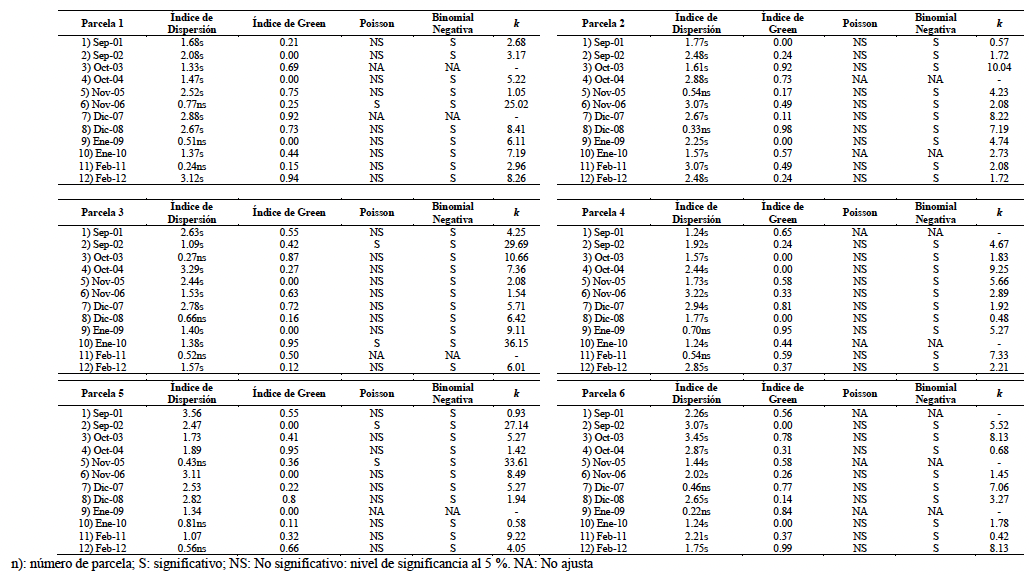
Desarrollo experimental. En seis parcelas de café de los cultivares Caturra y Típica, se georreferenciaron 100 plantas por parcela, en un muestreo por cuadrantes y se muestrearon catorcenalmente durante seis meses. Por planta se muestrearon 36 hojas, considerando los puntos cardenales y por estratos (alto, medio y bajo). Con los datos se realizó estadística clásica (índices de dispersión y Green, distribuciones de Poisson y binomial negativa) y geoestadística (semivariogramas teóricos y Krigeado Ordinario).

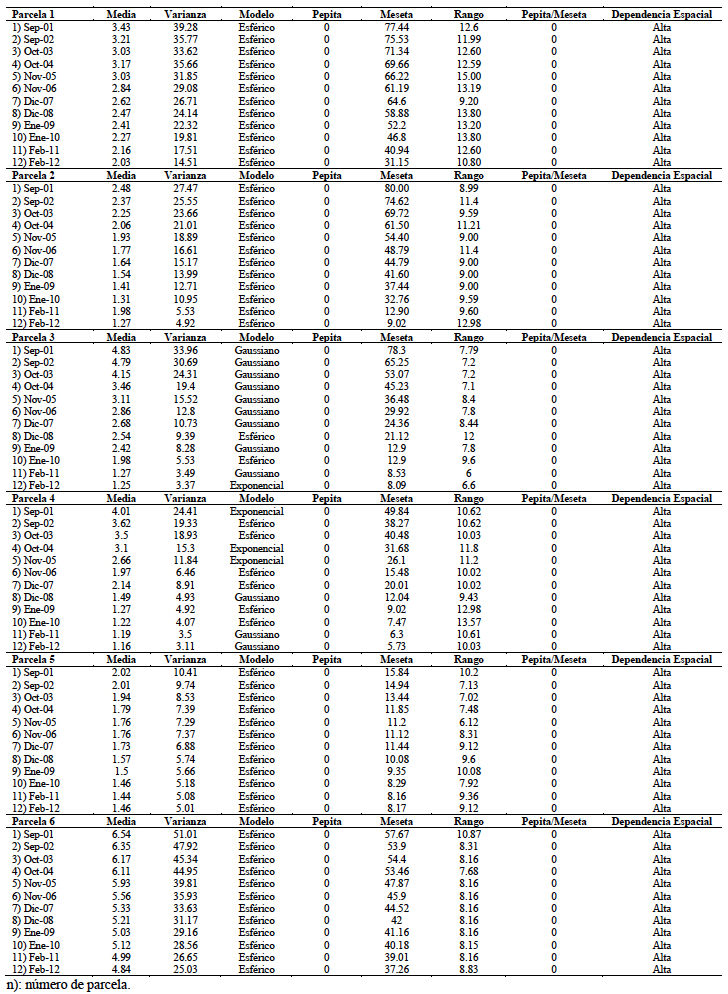
Resultados. La estadística clásica identificó agregación, pero requiere mayor precisión espacial, la geoestadística generó semivariogramas teóricos (Gaussiano, Esférico y Exponencial) y mapas con Krigeado Ordinario, visualizando la distribución de la enfermedad, esta herramienta es fundamental para la identificación de focos de infección y la estimación confiable de la superficie infectada para un manejo de precisión.

Conclusión. La geoestadística superó a la estadística clásica en la precisión del análisis espacial de la enfermedad, los mapas con Krigeado Ordinario identificó áreas con presencia y libres de la enfermedad, lo cual permitiría dirigir de manera eficaz acciones de manejo.

Mostrar Figuras y/o Cuadros
Cuadro 1. Índices de dispersión y distribución estadística de mancha de hierro (<em>Mycosphaerella coffeicola</em>), en parcelas de café en el municipio de Amatepec, Estado de México. Muestreo realizado de septiembre de 2021 a febrero de 2022.
Cuadro 1. Índices de dispersión y distribución estadística de mancha de hierro (Mycosphaerella coffeicola), en parcelas de café en el municipio de Amatepec, Estado de México. Muestreo realizado de septiembre de 2021 a febrero de 2022.
Cuadro 2. Parámetros (Efecto pepita, meseta y rango) de modelos ajustados a los semivariogramas de <em>Mycosphaerella coffeicola</em>, en parcelas de café en el municipio de Amatepec, Estado de México de septiembre de 2021 a febrero de 2022.
Cuadro 2. Parámetros (Efecto pepita, meseta y rango) de modelos ajustados a los semivariogramas de Mycosphaerella coffeicola, en parcelas de café en el municipio de Amatepec, Estado de México de septiembre de 2021 a febrero de 2022.
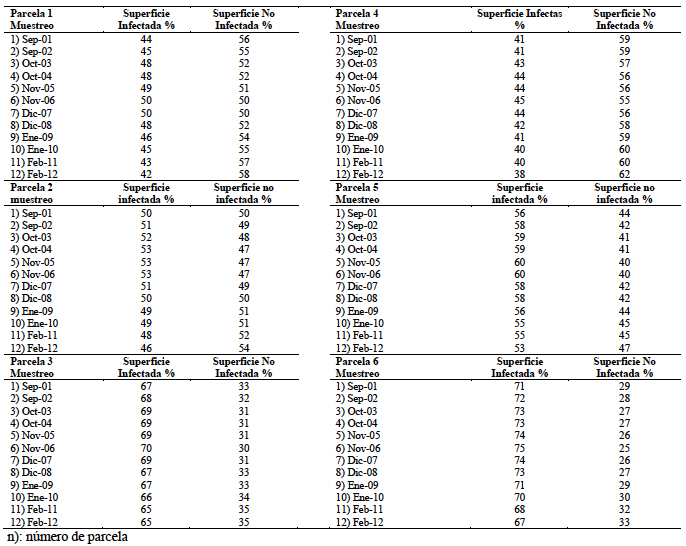
Cuadro 3. Porcentaje de superficie infectada y no infectada por la mancha de hierro en parcelas de café en el municipio de Amatepec, Estado de México de septiembre de 2021 a febrero de 2022.
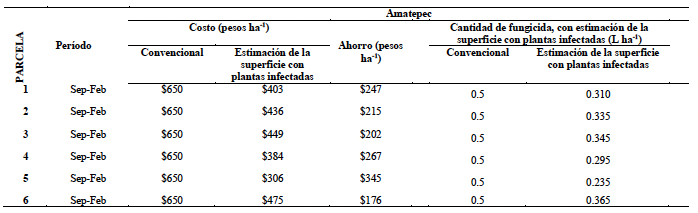
Cuadro 4. Costos asociados a la aplicación de flutriafol en parcelas de café en el municipio de Amatepec, Estado de México.
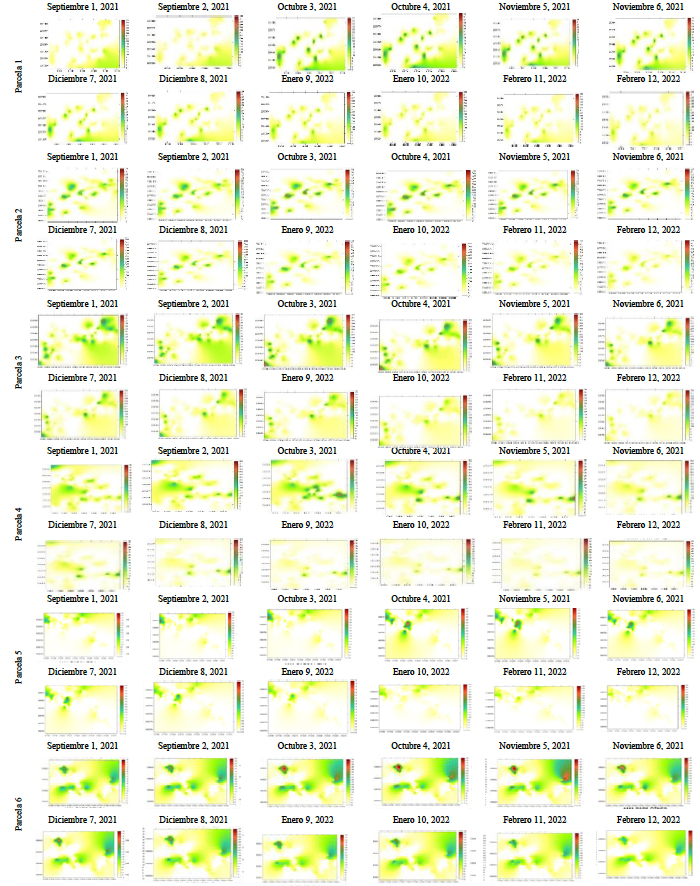
Figura 1. Distribución espacial de la proporción de unidades de muestreo con síntomas de mancha de hierro en parcelas de café del municipio de Amatepec, Estado de México, durante los muestreos de septiembre de 2021 a febrero de 2022.
  • Vol. 2026, 44(1)
  • Nota Fitopatológica

Caracterización morfológica y molecular de cepas de Trichoderma aisladas del biofertilizante BioHumisol®

PorKarla Marina Báez Parra, Edith Salazar Villa, Josefina León Félix, Miguel Ángel Angulo Escalante, Indira Rojo Báez*

Recibido: 28/julio/2024 – Publicado: 16/diciembre/2025
DOI: https://doi.org/10.18781/R.MEX.FIT.2407-3

Resumen Antecedentes/Objetivo. Existen biofertilizantes, que contienen microorganismos benéficos para la planta y el ambiente. Sin embargo, algunos productos comerciales proporcionan poca información de las especies que emplean en sus productos; por lo que este trabajo tuvo el objetivo de identificar cultural, morfológica, morfométrica y molecularmente las especies de Trichoderma presentes en el biofertilizante BioHumisol® de uso agrícola en Culiacán y Navolato, Sinaloa, México.

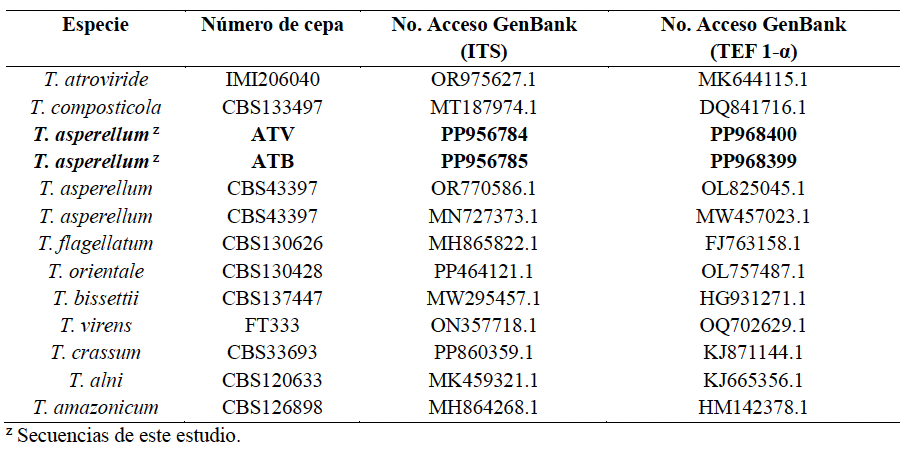
Desarrollo experimental. A partir del biofertilizante líquido BioHumisol® se aislaron y purificaron colonias fúngicas. Para la identificación cultural, morfológica y morfométrica se emplearon tres cajas Petri con crecimiento fúngico por aislado, se registraron las características de color, forma del micelio y disposición en el medio de cultivo, días de esporulación, tamaño y forma de conidios, fiálides y clamidosporas. Además, se registró la tasa de crecimiento micelial. A nivel molecular se amplificó la región ITS y el gen TEF-1 α, las secuencias se registraron en GenBank con los números de acceso: PP956784, PP956785 para ITS; PP968400, PP968399 para TEF-1 α, y se realizó el análisis filogenético de las secuencias concatenadas mediante el método de máxima verosimilitud e inferencia Bayesiana con un bootstrap de 1000 réplicas.

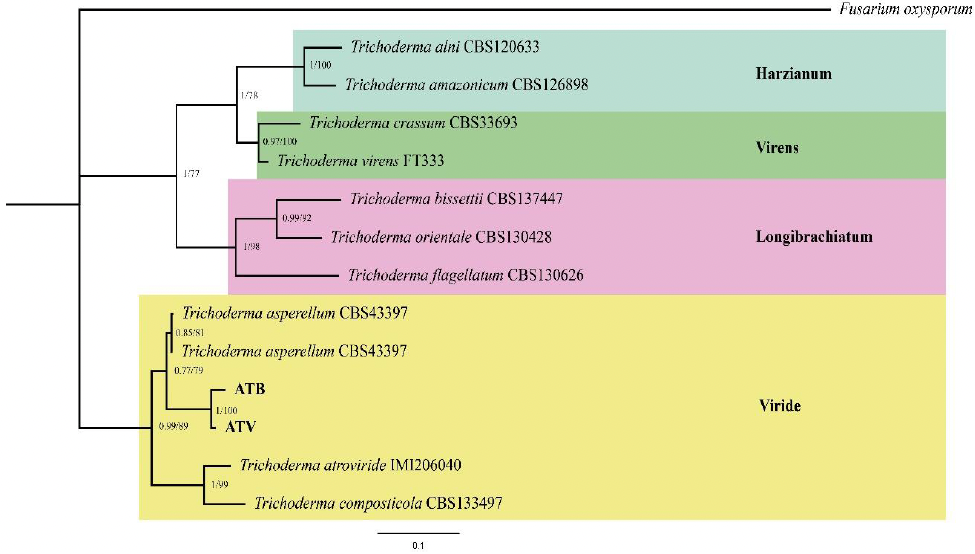
Resultados. Las colonias fúngicas presentaron conidióforos hialinos, ramificados, no verticilados; fiálides simples o en grupos con ramificaciones terminales con medidas promedio de 4.1-6.2 × 9.7-15.3 μm; conidios unicelulares, ovoides con medidas promedio de 3.6-5.09 × 3.27-6.41 μm y clamidosporas subglobosas intercalares y terminales cuyo tamaño fue de 21.41 × 21.72 μm, lo que coincide con Trichoderma. Actualmente, para una correcta identificación se requiere la caracterización cultural, morfológica, morfométrica completada con la caracterización molecular. El análisis BLAST de las secuencias parciales de ITS mostraron una homología del 99 % y del gen TEF -1 α una homología del 100 % con T. asperellum, el análisis filogenético confirma cercanía genética con especies del clado Viride.

Conclusión. De acuerdo con la caracterización cultural, morfológica, morfométrica y molecular la especie que se encuentra en el biofertilizante líquido BioHumisol® es Trichoderma asperellum.

Mostrar Figuras y/o Cuadros
Cuadro 1. Especies y números de acceso de GenBank correspondientes de las secuencias utilizadas en el análisis filogenético.
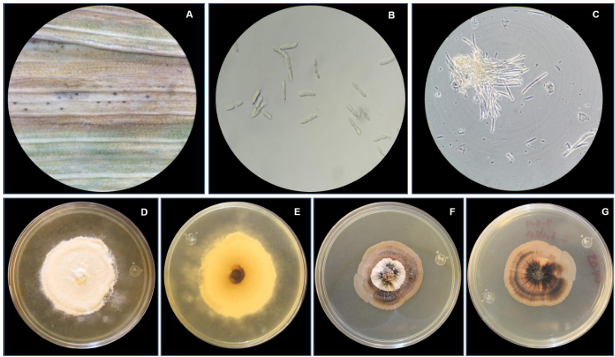
Figura 1. Morfología de aislamientos de <em>Trichoderma asperellum</em>. A) Caja Petri con siete días de crecimiento en PDA-AL a) anverso, b) reverso; B-D) Conidióforos con fiálides y conidios en racimos; E) Hifas y conidios y F) clamidosporas.
Figura 1. Morfología de aislamientos de Trichoderma asperellum. A) Caja Petri con siete días de crecimiento en PDA-AL a) anverso, b) reverso; B-D) Conidióforos con fiálides y conidios en racimos; E) Hifas y conidios y F) clamidosporas.
Figura 2. Árbol filogenético basado en secuencias parciales concatenadas de ITS y TEF 1-α de especies de <em>Trichoderma</em>. El árbol se construyó utilizando el método máxima verosimilitud e inferencia Bayesiana con 1000 réplicas, las probabilidades posteriores bayesianas (PP>0.5) y valores de Bootstrap (BS>50) se muestras en los nodos. Las secuencias de este estudio se encuentran en negrita. Como grupo externo se utilizó <em>Fusarium oxysporum</em> (número de acceso GenBank: OR734798 y ON316841).
Figura 2. Árbol filogenético basado en secuencias parciales concatenadas de ITS y TEF 1-α de especies de Trichoderma. El árbol se construyó utilizando el método máxima verosimilitud e inferencia Bayesiana con 1000 réplicas, las probabilidades posteriores bayesianas (PP>0.5) y valores de Bootstrap (BS>50) se muestras en los nodos. Las secuencias de este estudio se encuentran en negrita. Como grupo externo se utilizó Fusarium oxysporum (número de acceso GenBank: OR734798 y ON316841).

Página 3 de 16